RNA-Typen und ihre Aufgaben
| RNA-Typ | Aufgabe in der Zelle |
|---|---|
| mRNA (Boten-RNA) | Vorlage für die Proteinbildung; im Zellkern gebildet und im Zytoplasma genutzt [3] |
| rRNA (ribosomale RNA) | Teil des Ribosoms: räumliche Organisation und Verknüpfung von Aminosäuren [7] |
| tRNA (Transfer-RNA) | Bei der Translation: verbindet Codonerkennung und Aminosäure [8] |
| snRNA (kleine nukleäre RNA) | Im Spleißosom: Erkennung und Verarbeitung von Prä-mRNA [5] |
| miRNA (microRNA) | Im Argonaute-Komplex: Regulation passender Ziel-RNAs [10] |
| XIST-RNA | Im Zellkern: räumliche Zuordnung zum inaktiven X-Chromosom [12] |
Nukleotide bilden die RNA-Kette
Jedes Ribonukleotid enthält den Zucker Ribose, eine Phosphatgruppe und eine Base. Die Basen heißen Adenin, Guanin, Cytosin und Uracil; ihre Kurzzeichen sind A, G, C und U. Aufeinanderfolgende Nukleotide bilden eine Kette mit einer bestimmten Sequenz. Diese Reihenfolge trägt zur Information und zur Funktion des Moleküls bei. [1]
Die Bezeichnungen 5′-Ende und 3′-Ende beschreiben die Orientierung der Kette anhand der nummerierten Kohlenstoffatome im Zucker. Bei einer RNA-Sequenz gehört deshalb auch die Leserichtung zur eindeutigen Beschreibung. Phosphodiesterbindungen verknüpfen benachbarte Zucker über ihre 3′- und 5′-Positionen. [16]
Am 2′-Kohlenstoff der Ribose liegt eine Hydroxylgruppe. Auch diese chemische Ausstattung beeinflusst die räumlichen Möglichkeiten der RNA. Gepaarte RNA-Abschnitte können eine Doppelhelix bilden; weitere Abschnitte derselben Kette können Schleifen und andere räumliche Verbindungen ausbilden. [16]
Aus einer Sequenz entsteht eine räumliche Form
Abschnitte einer RNA können miteinander Basenpaare bilden. Dadurch entstehen lokal gepaarte Bereiche, Schleifen und komplexere räumliche Faltungen. Die Form beeinflusst, welche anderen Moleküle eine RNA bindet und wie sie ihre Aufgabe erfüllt. Bei einer Transfer-RNA führt die Faltung beispielsweise zwei funktionelle Endbereiche in eine charakteristische räumliche Anordnung. [2]
Zur Beschreibung gehören mehrere Ebenen: die Nukleotidfolge, die Paarung einzelner Abschnitte und die vollständige dreidimensionale Form. RNA-Moleküle können außerdem gemeinsam mit Proteinen große Ribonukleoproteinkomplexe bilden. Ribosom und Spleißosom sind wichtige Beispiele. [2]
Transkription: eine RNA an der DNA-Vorlage bilden
Bei der Transkription nutzt eine RNA-Polymerase einen DNA-Strang als Vorlage. Der DNA-Doppelstrang wird im Arbeitsbereich des Enzyms örtlich geöffnet. Zur Vorlage passende RNA-Bausteine werden zu einer wachsenden RNA verbunden; hinter dem Enzym können sich die DNA-Stränge wieder zusammenlagern. [3]
Die RNA-Sequenz entsteht durch komplementäre Basenpaarung zur Vorlage. Zusammen mit weiteren Proteinen steuert die Polymerase die Bildung des Transkripts. Verschiedene RNA-Produkte gehen auf unterschiedliche, gezielt genutzte DNA-Abschnitte zurück. So verbindet Transkription die gespeicherte Sequenzinformation mit den tatsächlich vorhandenen RNA-Molekülen. [3]
Prä-mRNA wird während ihrer Entstehung verarbeitet
Proteinbildende Gene werden durch RNA-Polymerase II zunächst in Prä-mRNA transkribiert. Bereits früh erhält das 5′-Ende eine Cap-Struktur mit 7-Methylguanosin. Diese Endstruktur bindet Proteine und wirkt bei Schutz, Verarbeitung und späterer Nutzung der RNA mit. [4]
Auch das andere Ende wird gezielt gebildet: Eine Spaltung legt das 3′-Ende fest; bei den meisten Boten-RNAs folgt ein Poly-A-Schwanz aus Adenosinbausteinen. Die Verarbeitung ist eng mit der Transkription verbunden. Ein Teil der Introns wird bereits entfernt, während die Polymerase weiterarbeitet. Andere Abschnitte werden später gespleißt. Die zeitliche Abstimmung beeinflusst, welche reife RNA entsteht. [4]
Spleißen: Introns entfernen und Exons verbinden
Das Spleißosom setzt sich aus kleinen nukleären RNAs und vielen Proteinen zusammen. Seine Bestandteile erkennen die zu verarbeitenden Stellen der Prä-mRNA und ordnen sie räumlich an. Bei der Reaktion wird ein Intron schleifenförmig an eine Verzweigungsstelle gebunden. Anschließend werden benachbarte Exons miteinander verknüpft und das Intron freigesetzt. [5]
Exons sind die Abschnitte, die in der jeweiligen gespleißten RNA verbleiben. Ihre Auswahl kann variieren. Alternatives Spleißen erzeugt dadurch verschiedene RNA-Isoformen eines Gens. Je nach einbezogenen Bereichen ändern sich Eigenschaften der RNA oder die spätere Proteinsequenz. Auch nichttranslatierte Bereiche einer Boten-RNA können Teil von Exons sein. [5]
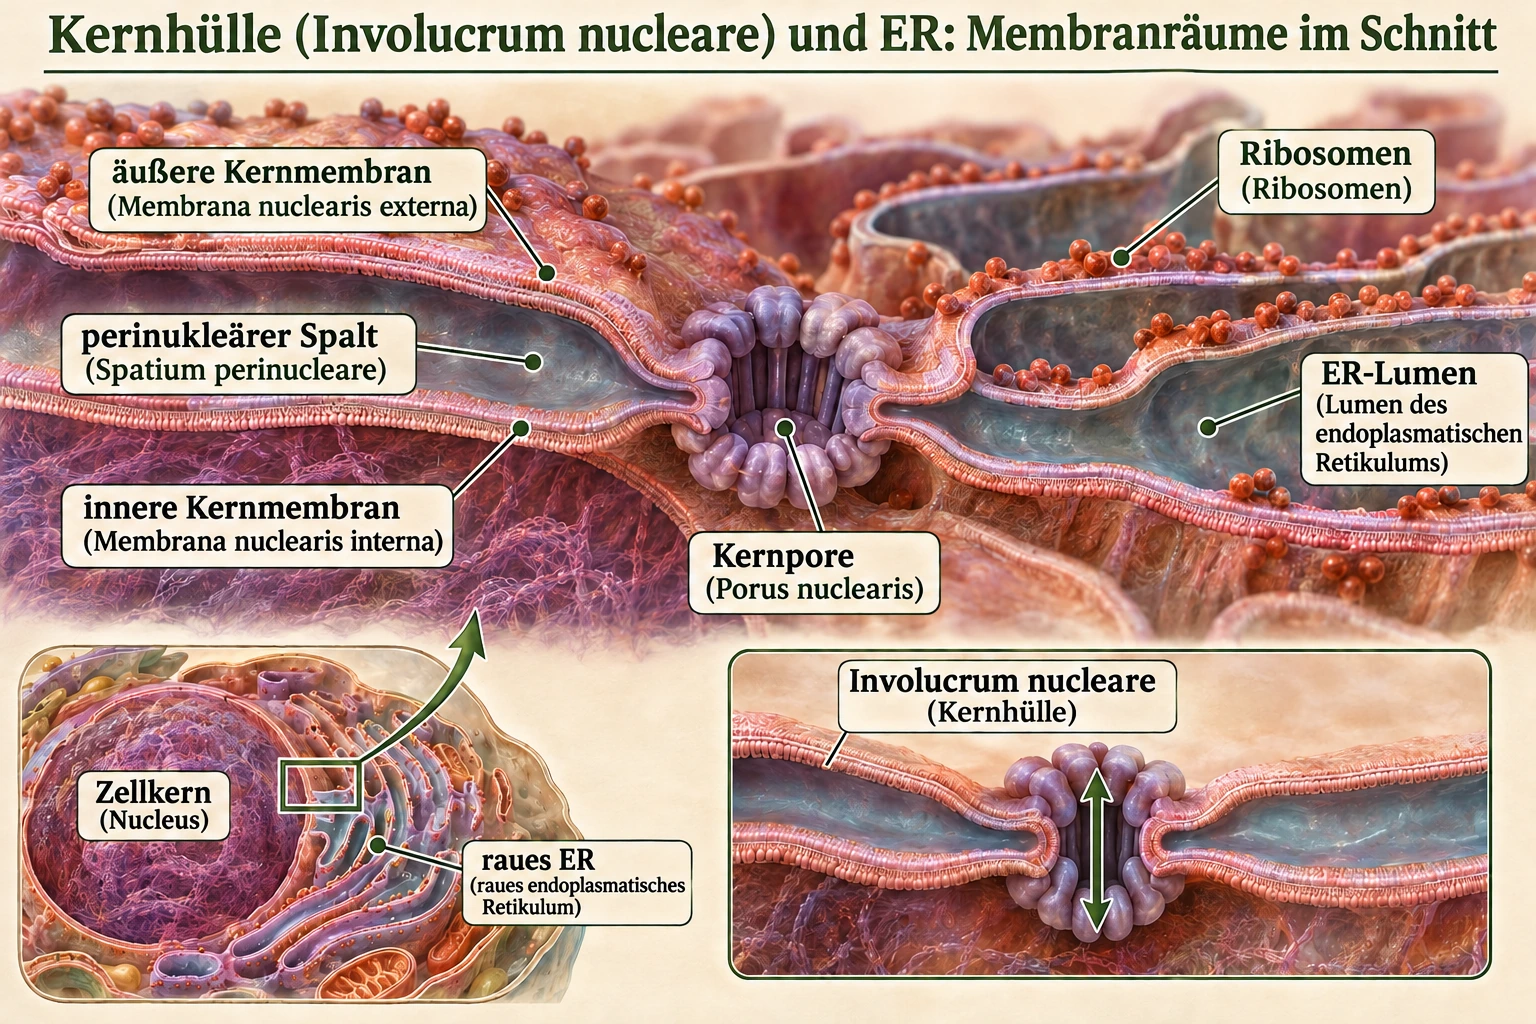
Vom Nucleus cellulae (Zellkern) ins Zytoplasma
Das Involucrum nucleare (Kernhülle) besteht aus zwei Membranen. Kernporenkomplexe schaffen geregelte Verbindungen zwischen Kernraum und Zytoplasma. Boten-RNAs und vorbereitete Ribosomenuntereinheiten verlassen den Kern über diese Wege. Für die spätere Translation treffen damit außerhalb des Kerns RNA-Produkte zusammen, deren Bildung und Verarbeitung im Kern begonnen haben. [6]
Die räumliche Zuordnung hilft beim Lesen eines Zellbildes: Transkription und große Teile der Prä-mRNA-Verarbeitung gehören in den Kernraum. Die Proteinsynthese an zytoplasmatischen Ribosomen findet auf der anderen Seite der Kernhülle statt. [6]
Gesundheitskapitel
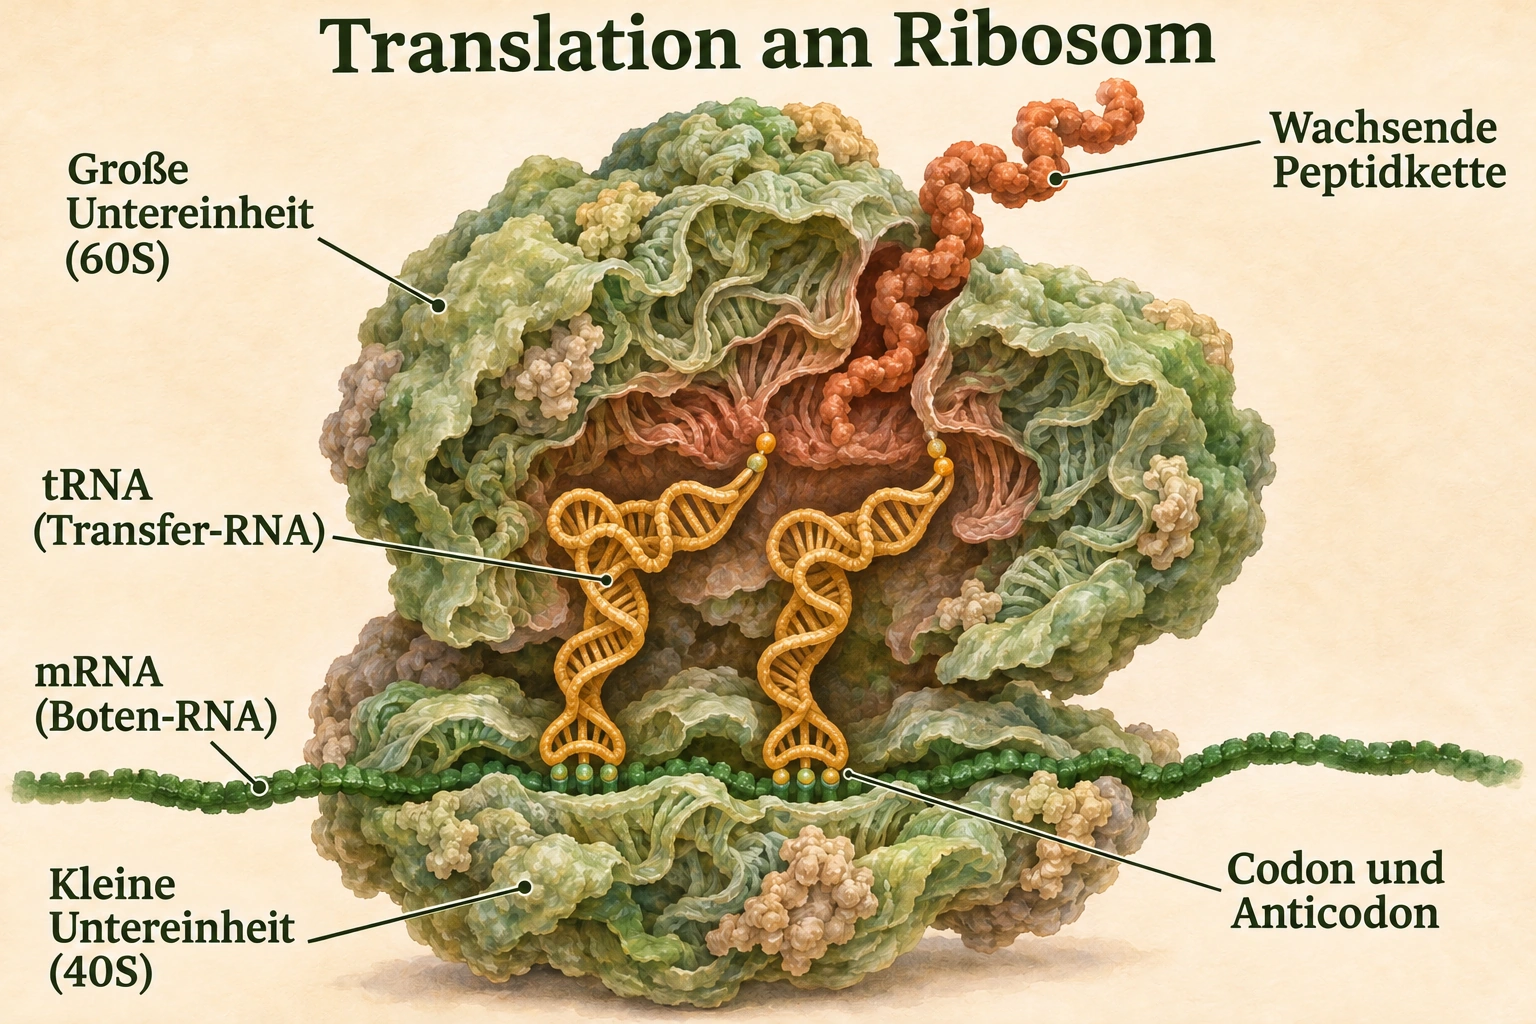
Ribosom: RNA liest Information und ermöglicht Peptidbindungen
Ein zytoplasmatisches 80S-Ribosom besteht aus einer kleinen 40S- und einer großen 60S-Untereinheit. Die kleine Untereinheit ordnet Boten-RNA und die passenden Anticodons der Transfer-RNAs an. Im Reaktionsbereich der großen Untereinheit wirkt ribosomale RNA an der Verknüpfung der Aminosäuren mit. Die wachsende Peptidkette gelangt durch einen Austrittskanal der großen Untereinheit nach außen. [7]
Gesundheitskapitel
Transfer-RNA: Anticodon und Aminosäure an getrennten Endbereichen
Eine typische Transfer-RNA besteht aus einer kurzen RNA-Kette mit gepaarten Stämmen und Schleifen. In der räumlichen Faltung entsteht eine L-Form. Die Anticodonschleife trägt drei Basen für die Zuordnung zu einem Codon der Boten-RNA. Am anderen Endbereich liegt die Bindungsstelle der Aminosäure. [8]
Das Zusammenspiel beider Endbereiche ist für die Translation entscheidend: Die RNA-Sequenz der Vorlage und die chemisch gebundene Aminosäure werden über dasselbe Adaptermolekül miteinander verbunden. Modifikationen einzelner RNA-Bausteine tragen zur Struktur und Funktion der Transfer-RNA bei. [8]
Aminoacyl-tRNA-Synthetasen beladen die Adapter
Vor ihrem Einsatz am Ribosom wird eine Transfer-RNA mit einer passenden Aminosäure beladen. Aminoacyl-tRNA-Synthetasen übernehmen diese Zuordnung. Sie erkennen sowohl Merkmale der Aminosäure als auch Identitätsmerkmale der Transfer-RNA. Dazu können das Anticodon und weitere Abschnitte des Moleküls gehören. [9]
Die richtige Beladung verbindet die spätere Codonerkennung mit der richtigen Aminosäure. Manche Synthetasen besitzen zusätzliche Bereiche zur Korrektur einer Fehlbeladung. So verteilt sich die Genauigkeit der Proteinsynthese auf mehrere Schritte: die Auswahl der Aminosäure, die Erkennung der Transfer-RNA und ihre Zuordnung am Ribosom. [9]
microRNA reguliert die Nutzung von Ziel-RNA
Viele microRNAs entstehen aus längeren Vorläufern mit einer Haarnadelstruktur. Im klassischen Bildungsweg wirken die Enzyme Drosha und Dicer mit. Ein RNA-Leitstrang wird in ein Argonaute-Protein aufgenommen. Seine Sequenz ermöglicht die Erkennung passender Stellen in Ziel-RNAs. [10]
Bei vielen tierischen microRNAs stehen eine verringerte Translation und ein beschleunigter Abbau der Ziel-mRNA im Vordergrund. Dabei können unter anderem Proteine der TNRC6-Familie und Komplexe zur Verkürzung des Poly-A-Schwanzes mitwirken. Eine microRNA kann mehrere Ziel-RNAs beeinflussen; umgekehrt kann eine mRNA von mehreren microRNAs reguliert werden. Welche Wirkung überwiegt, hängt auch vom Entwicklungszustand und vom Zellkontext ab. [10]
RNA-Interferenz als experimentell untersuchter Mechanismus
Fire und Kollegen verglichen 1998 bei Caenorhabditis elegans die Wirkung injizierter RNA-Einzelstränge mit doppelsträngiger RNA. Die doppelsträngige Form löste eine besonders starke und spezifische Hemmung der untersuchten Genfunktion aus. Die Effekte zeigten sich bei behandelten Tieren und ihren Nachkommen. [11]
Die Arbeit begründete einen wichtigen Zugang zur Untersuchung von Genfunktionen: Eine passende RNA-Sequenz kann eine gezielte Hemmung auslösen. Aus dem Verhältnis von eingesetzter RNA-Menge und beobachteter Wirkung ergaben sich Hinweise auf katalytische oder verstärkende Schritte des Prozesses. [11]
Lange nichtcodierende RNA und das Beispiel XIST
Lange nichtcodierende RNAs können die Nutzung und räumliche Organisation genetischer Information beeinflussen. XIST ist ein Beispiel: Die RNA wirkt bei der Regulation eines inaktiven X-Chromosoms mit. [14]
Eine Untersuchung menschlicher Zellen lokalisierte XIST-RNA räumlich gemeinsam mit dem Gebiet des inaktiven X-Chromosoms. Ein großer, bereits gespleißter Anteil blieb im Zellkern und war dort stabil mit diesem Gebiet verbunden. Die Untersuchungen verknüpften RNA- und Chromosomenlokalisation in zwei- und dreidimensionalen Analysen. Damit wurde der räumliche Zusammenhang dieser RNA mit einem bestimmten Chromosomenterritorium sichtbar. [12]
Das Transkriptom beschreibt vorhandene RNA
Das Transkriptom umfasst die RNA-Moleküle einer betrachteten Zelle oder Probe. Zelltypen unterscheiden sich in den verwendeten Genen und in ihrer RNA-Zusammensetzung. Ein Vergleich kann zeigen, welche Transkripte in bestimmten Geweben besonders häufig vorkommen und welche Veränderungen mit einem untersuchten Zustand verbunden sind. [13]
RNA-Sequenzierung macht Muster messbar
Bei einem häufig verwendeten RNA-seq-Verfahren wird RNA aus einer Probe isoliert und durch reverse Transkription in komplementäre DNA (cDNA) umgeschrieben. Die Sequenzierung dieser Moleküle liefert Informationen über die ursprünglichen RNA-Sequenzen und ihre Häufigkeiten. [15]
Für die Interpretation gehören deshalb mehrere Angaben zusammen: Welche Zellen enthält die Probe? Zu welchem Zeitpunkt wurde sie gewonnen? Welche RNA-Moleküle wurden mit dem Verfahren erfasst? Eine RNA-Messung beschreibt die untersuchte Probe unter diesen Bedingungen und hilft, Zelltypen und Veränderungen der Genexpression zu untersuchen. [15]
Häufige Fragen
Wie unterscheiden sich mRNA und tRNA? Die mRNA trägt die Vorlage für die Aminosäurereihenfolge. Eine tRNA koppelt die Erkennung eines Codons an die mitgebrachte Aminosäure. [8]
Was bedeutet alternatives Spleißen? Bei der Verarbeitung eines Transkripts können unterschiedliche Abschnitte miteinander verbunden werden. Dadurch entstehen RNA-Isoformen mit unterschiedlichen Eigenschaften. [5]
Warum sind RNA-Muster von Zelltypen verschieden? Unterschiedliche Zellen nutzen ihre genetische Information in unterschiedlichen Mustern. Die vorhandenen Transkripte spiegeln diese Genexpression und den jeweiligen Zellzustand wider. [13]
Die Zusammenhänge weiterverfolgen
Der Zellkern erschließt Chromatin und Kernorganisation. Die Zellorganellen zeigen die räumliche Zusammenarbeit der Zellbestandteile. Proteinfaltung und Chaperone vertiefen den weiteren Weg einer neu gebildeten Aminosäurekette.
Quellen und Weiterlesen
- NHGRI: Nucleotide Nukleotidbestandteile und Basen. Abgerufen am 10.11.2026.
- RCSB PDB-101: RNA Synthesis RNA-Struktur und Ribonukleoproteinkomplexe. Abgerufen am 10.11.2026.
- Goodsell D: RNA Polymerase Molecule of the Month, April 2003. Abgerufen am 10.11.2026.
- Carrocci TJ, Neugebauer KM (2024): Emerging and Re-emerging Themes in Co-transcriptional pre-mRNA Splicing Molecular Cell 84:3656–3666; RNA-Verarbeitung und zeitliche Kopplung. Abgerufen am 10.11.2026.
- Goodsell D: Spliceosomes Molecule of the Month, Mai 2020. Abgerufen am 10.11.2026.
- The Open University: Nuclear structure and the transport of molecules A tour of the cell, Abschnitt 4.3.3; Kernhülle und Transport. Abgerufen am 10.11.2026.
- Goodsell D: Ribosome Molecule of the Month, Januar 2010; Untereinheiten und Translation. Abgerufen am 10.11.2026.
- Goodsell D: Transfer RNA Molecule of the Month, März 2001. Abgerufen am 10.11.2026.
- Goodsell D: Aminoacyl-tRNA Synthetases Molecule of the Month, April 2001. Abgerufen am 10.11.2026.
- Bartel DP (2018): Metazoan MicroRNAs Cell 173(1):20–51; Biogenese, Zielerkennung und Regulation. Abgerufen am 10.11.2026.
- Fire A et al. (1998): Potent and specific genetic interference by double-stranded RNA in Caenorhabditis elegans Nature 391:806–811. Abgerufen am 10.11.2026.
- Clemson CM et al. (1996): XIST RNA paints the inactive X chromosome at interphase Journal of Cell Biology 132(3):259–275; RNA-Lokalisation. Abgerufen am 10.11.2026.
- NHGRI: Transcriptome Fact Sheet Transkriptom und Gewebevergleiche; Stand 17.08.2020. Abgerufen am 10.11.2026.
- NHGRI: Ribonucleic Acid (RNA) Fact Sheet Regulatorische RNA und XIST; Stand 24.05.2024. Abgerufen am 10.11.2026.
- NHGRI: RNA-seq (RNA Sequencing) RNA-Sequenzierung über cDNA und Vergleich von Zellzuständen. Abgerufen am 10.11.2026.
- Nucleic Acid Knowledgebase: Introduction to Nucleic Acids Nukleotidverknüpfung, Ribose, RNA-Duplexe und Faltung. Abgerufen am 10.11.2026.