Auf einen Blick
- Eine freie Glucose liefert über die Glykolyse zwei Pyruvat, zwei ATP netto und zwei NADH.
- Pyruvattransport und Pyruvatdehydrogenase verbinden den Zytosolweg mit mitochondrialem Acetyl-CoA.
- Der Citratzyklus regeneriert Oxalacetat und stellt Elektronen sowie ein unmittelbar gewonnenes Nukleotid pro Acetylgruppe bereit.
Drei Abschnitte mit klaren Übergängen
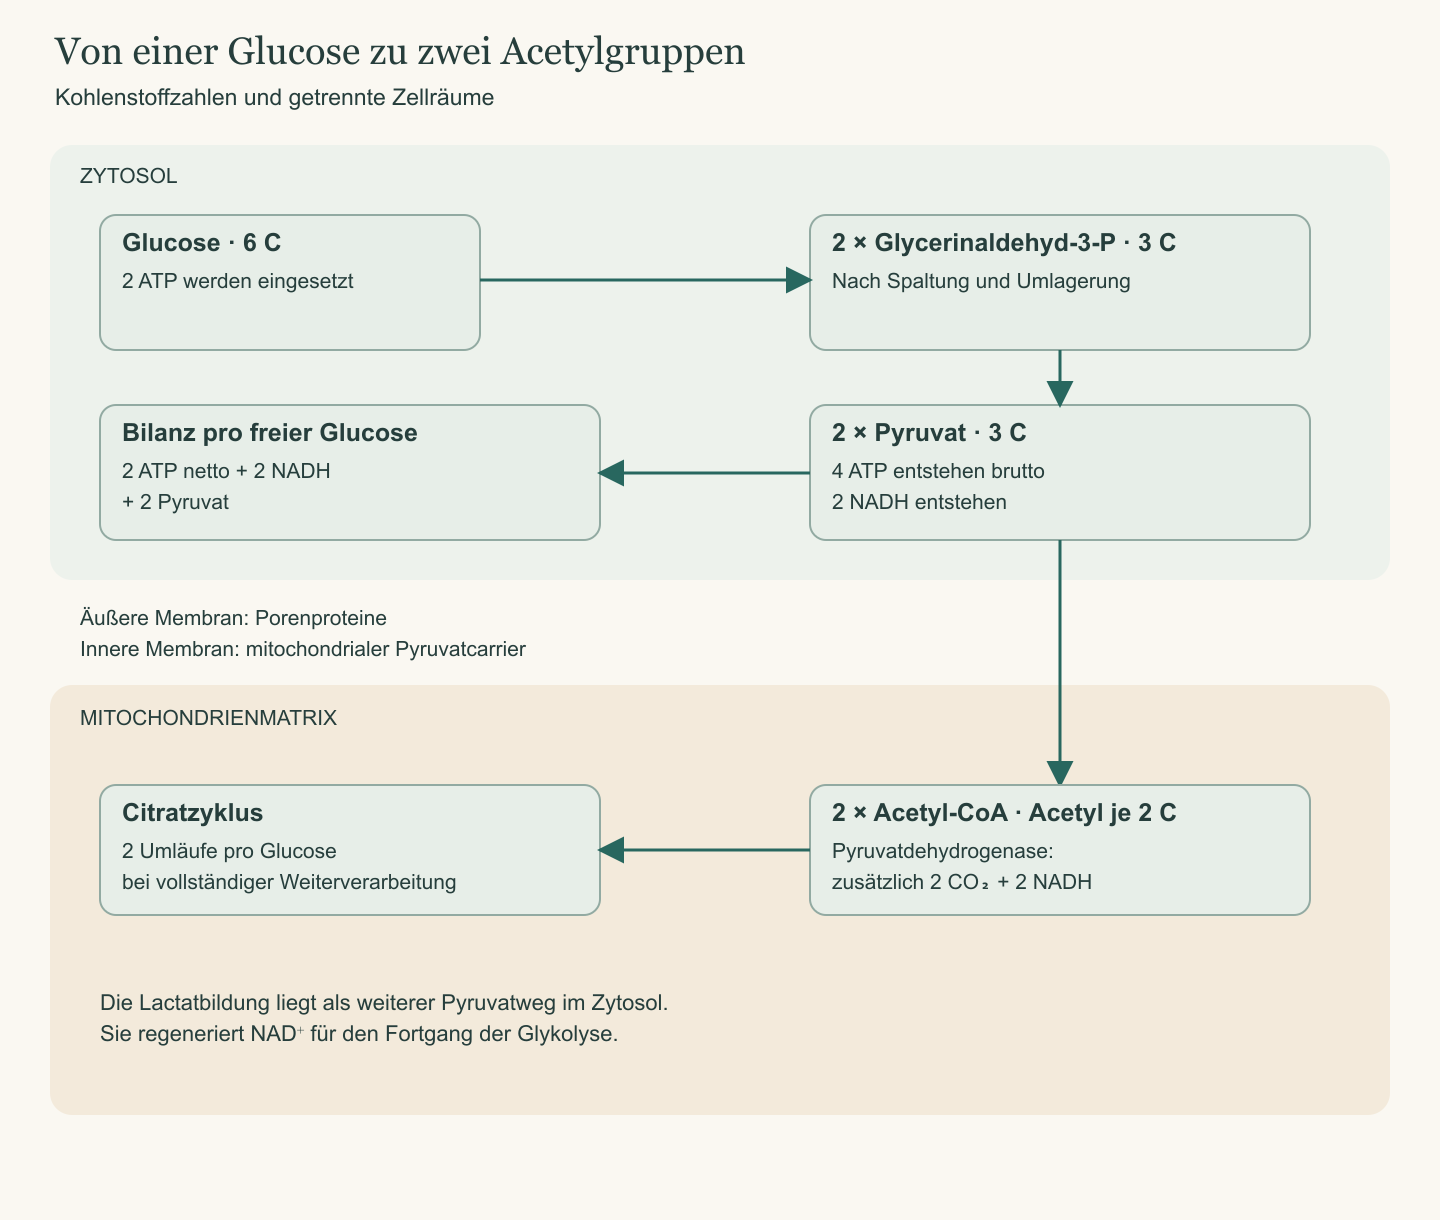
Die Glykolyse verarbeitet Glucose im Zytosol zu Pyruvat. In geeigneten Zellen folgt der Transport von Pyruvat in die Mitochondrienmatrix. Dort bildet der Pyruvatdehydrogenasekomplex Acetyl-CoA. Dessen Acetylgruppe gelangt in den Citratzyklus. Die Übergänge verbinden damit einen zytosolischen Abbau, einen Transport über Membranen und mitochondriale Reaktionen. [2][7][9]
Für die Bilanz sind zwei Spuren hilfreich. Die Kohlenstoffspur verfolgt, welche Stücke eines Moleküls erhalten bleiben oder als CO₂ abgegeben werden. Die Elektronenspur verfolgt die Bildung reduzierter Coenzyme wie NADH. ATP kann unmittelbar in einzelnen Reaktionen entstehen oder später über Atmungskette und ATP-Synthase bereitgestellt werden. [2][6][7]
Gesundheitskapitel
Erstes ATP: Glucose wird vorbereitet
Am Anfang wird Glucose unter ATP-Verbrauch zu Glucose-6-phosphat phosphoryliert. Die folgende Umwandlung ergibt Fructose-6-phosphat. Eine weitere ATP-abhängige Phosphorylierung führt zu Fructose-1,6-bisphosphat. Bis hier besitzt das Molekül weiterhin sechs Kohlenstoffatome; zwei ATP wurden investiert. [2][7][8]
Die Phosphofructokinase bildet dabei einen wichtigen Regulationspunkt. Die Geschwindigkeit dieses Schritts reagiert auf den Energiezustand und weitere Signale. An solchen stark gerichteten Reaktionen lässt sich der Stofffluss wirksam beeinflussen. Der Gesamtweg setzt sich aus unterschiedlich regulierten Enzymschritten zusammen. [2][7][18]
Sechs Kohlenstoffatome werden aufgeteilt
Das doppelt phosphorylierte Sechskohlenstoffmolekül wird in zwei Dreikohlenstoffverbindungen gespalten. Zunächst entstehen Glycerinaldehyd-3-phosphat und Dihydroxyacetonphosphat. Letzteres lässt sich in die erste Verbindung umwandeln. Pro Ausgangsglucose laufen dadurch zwei Glycerinaldehyd-3-phosphatmoleküle durch den weiteren Weg. [2][7][8]
Diese Verdopplung ist entscheidend für die Rechnung. Was in der zweiten Hälfte pro Dreikohlenstoffmolekül einmal geschieht, geschieht pro Glucose zweimal. Dazu gehören die Reduktion von NAD⁺ und die folgenden ATP-bildenden Schritte. Eine grafische Darstellung sollte deshalb die Zahl zwei ab der Aufteilung durchgehend sichtbar halten. [2][7][8]
ATP entsteht unmittelbar aus Zwischenprodukten
Glycerinaldehyd-3-phosphat wird oxidiert und unter Beteiligung anorganischen Phosphats weiterverarbeitet. NAD⁺ nimmt dabei Elektronen auf und wird zu NADH. Das entstehende Zwischenprodukt ermöglicht im nächsten Schritt die Übertragung einer Phosphatgruppe auf ADP. Eine weitere direkte ATP-Bildung erfolgt später beim Übergang von Phosphoenolpyruvat zu Pyruvat. [2][7][8]
Beide ATP-bildenden Reaktionen finden pro Ausgangsglucose zweimal statt. Vier ATP entstehen brutto; nach Abzug der beiden anfänglich eingesetzten bleiben zwei ATP netto. Hinzu kommen zwei NADH und zwei Pyruvat. Der Begriff Substratkettenphosphorylierung beschreibt hier die direkte ATP-Bildung durch Übertragung aus einem chemischen Zwischenprodukt. [2][7]
NAD⁺ verbindet Glykolyse und weitere Wege
Damit die Glykolyse fortgesetzt werden kann, muss ausreichend NAD⁺ verfügbar bleiben. Die Lactatdehydrogenase kann Pyruvat zu Lactat reduzieren und dabei NADH zu NAD⁺ oxidieren. Auf diesem Weg wird der benötigte oxidierte Elektronenträger zurückgewonnen. Die Reaktion stellt die Voraussetzung für die entsprechende glykolytische Elektronenaufnahme wieder her. [2][7][9]
Lactat kann eine Zelle verlassen und andernorts weiterverarbeitet werden. Im menschlichen Organismus wird es auch oxidiert und als Vorstufe für Glucoseneubildung verwendet. Diese Weiterverwendung erklärt, weshalb ein lokales Reaktionsprodukt zugleich Transportstoff zwischen Geweben sein kann. [2][14][20]
Pyruvat überwindet zwei Membranen
Der Eintritt in die Matrix erfordert einen Weg durch äußere und innere Mitochondrienmembran. Die äußere Membran besitzt unter anderem Porenproteine. Den Übergang durch die innere Membran vermittelt der mitochondriale Pyruvatcarrier. Der Transport führt Pyruvat an den Ort, an dem unter anderem der Pyruvatdehydrogenasekomplex arbeitet. [9][13]
Dieser Komplex entfernt pro Pyruvat ein Kohlenstoffatom als CO₂ und bindet den verbleibenden Zweikohlenstoffrest an Coenzym A. Dabei entsteht ein NADH. Aus den beiden Pyruvat einer Glucose entstehen somit zwei Acetyl-CoA, zwei CO₂ und zwei NADH. Coenzym A trägt die Acetylgruppe in reaktionsfähiger Form weiter. [2][7][9]
Der Eintritt in den Citratzyklus
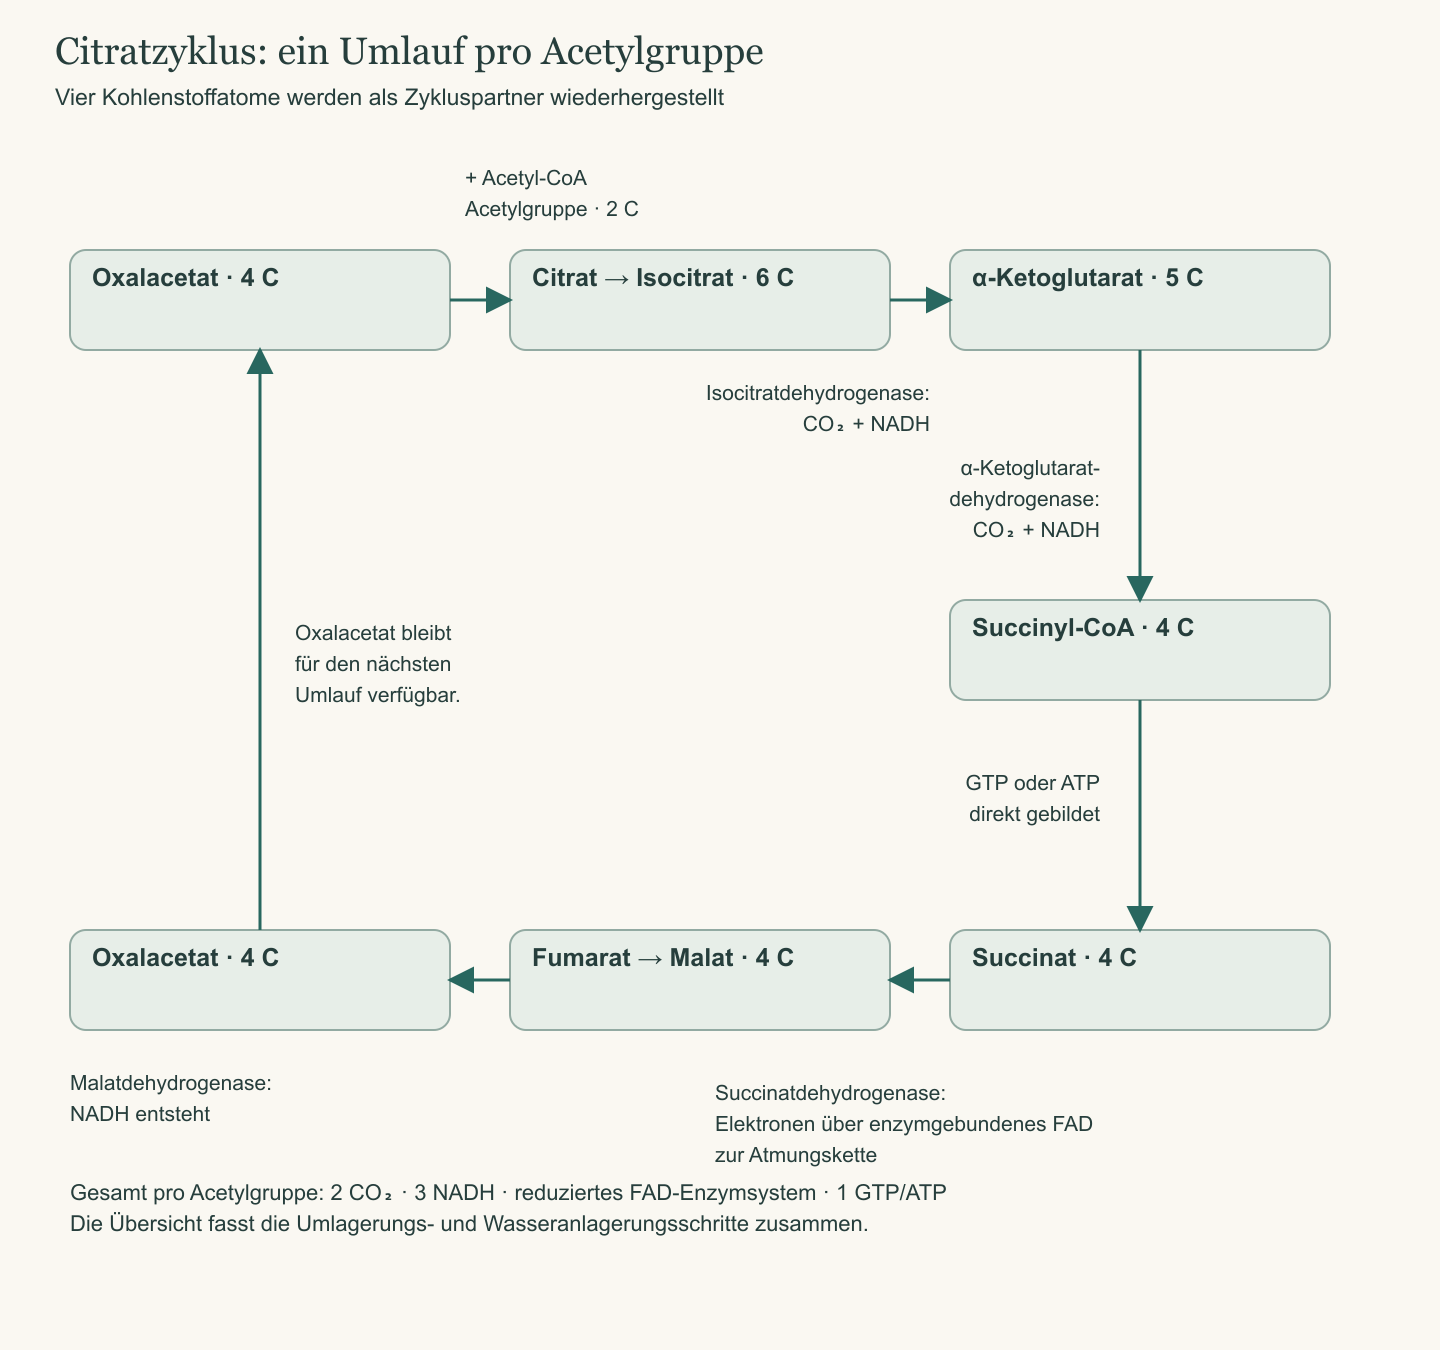
Die Citratsynthase verbindet die Acetylgruppe mit Oxalacetat. Aus zwei und vier Kohlenstoffatomen entsteht das Sechskohlenstoffmolekül Citrat. Nach der Umlagerung zu Isocitrat folgen Reaktionen, bei denen CO₂ abgegeben und NAD⁺ reduziert wird. Zunächst entstehen α-Ketoglutarat mit fünf und anschließend Succinyl-CoA mit vier Kohlenstoffatomen. [2][10][17]
Der Vierkohlenstoffabschnitt regeneriert den Ausgangspartner
Succinyl-CoA wird zu Succinat verarbeitet. Dabei ermöglicht die Reaktion die unmittelbare Bildung von GTP oder ATP, je nach beteiligter Enzymvariante. Über Fumarat und Malat entsteht anschließend wieder Oxalacetat. Der ursprüngliche Vierkohlenstoffpartner steht damit für einen neuen Umlauf bereit. [10][17]
Bei der Succinatoxidation wirkt die Succinatdehydrogenase an der inneren Mitochondrienmembran. Ihr enzymgebundenes FAD nimmt Elektronen auf; die Weiterleitung verbindet diesen Schritt mit dem Ubichinonpool der Atmungskette. Beim Übergang von Malat zu Oxalacetat entsteht ein weiteres NADH. Die Membranlage eines einzelnen Zyklusenzyms ist somit funktionell bedeutsam. [10][17]
Gesundheitskapitel
Eine Runde und zwei Runden sauber zählen
Pro Acetylgruppe umfasst die Hauptbilanz des Citratzyklus zwei CO₂, drei NADH, einen auf FAD beruhenden reduzierten Enzymweg und ein GTP beziehungsweise ATP. Da eine Glucose zwei Acetylgruppen liefern kann, verdoppelt sich diese Bilanz bei ihrer vollständigen Weiterverarbeitung über beide Umläufe. [2][10][17]
Die vorgeschaltete Pyruvatdehydrogenase und die Glykolyse besitzen eigene Bilanzen. Ihre Produkte werden für eine Gesamtbetrachtung zusätzlich gezählt. Auf diese Weise bleiben Ort und Herkunft der Elektronen sowie die direkt entstandenen energiereichen Nukleotide nachvollziehbar. Für die gesamte ATP-Ausbeute werden zusätzlich Transportwege, Membrankopplung und die Übertragung zytosolischer Elektronen berücksichtigt. [2][6][7]
Elektronen treiben einen Membranprozess an
NADH gibt seine Elektronen an die Atmungskette weiter. Die Übertragungen sind mit dem Aufbau eines Protonenunterschieds über der inneren Mitochondrienmembran gekoppelt. Sauerstoff nimmt am Ende Elektronen auf und wird zu Wasser reduziert. Die ATP-Synthase nutzt anschließend den Protonenrückstrom zur Matrix für ATP-Bildung. [41][44]
Die NADH-Moleküle aus dem Zytosol und aus der Matrix befinden sich dabei in getrennten Räumen. Ihre Elektronen müssen über geeignete Transfersysteme in die mitochondriale Energieübertragung eingebunden werden. Diese räumliche Organisation ist ein wesentlicher Grund, Reaktionsort und Membrantransport ausdrücklich mitzuzeichnen. [6][7]
Der Zyklus liefert auch Baustoffe
Zwischenprodukte werden für Aufbauwege entnommen. α-Ketoglutarat steht mit Glutamat und weiteren Aminosäurewegen in Verbindung; Oxalacetat kann in weitere Synthesen eingehen. Citrat vermittelt unter anderem Kohlenstoff für den Fettsäureaufbau außerhalb der Matrix. Die Zyklusgeschwindigkeit hängt deshalb auch von der verfügbaren Menge seiner Zwischenprodukte ab. [2][3][10][17][23]
Anaplerotische Reaktionen füllen diese Verbindungen nach. Ein wichtiges Beispiel ist die ATP-abhängige Carboxylierung von Pyruvat zu Oxalacetat durch die Pyruvatcarboxylase. Der Glucosestrom kann dadurch sowohl Acetylgruppen als auch erneuerte Zykluspartner bereitstellen. Entnahme und Ergänzung verbinden Energiegewinnung mit Wachstum, Erneuerung und anderen laufenden Zellaufgaben. [9][17]
Eine Bilanz braucht ihren Ausgangspunkt
Für freie Glucose beginnt die Glykolyserechnung mit zwei ATP Investition und endet bei zwei ATP netto. Für eine bereits phosphoryliert aus Glykogen bereitgestellte Einheit liegt der Eintritt anders. Auch ein reifer Erythrozyt und eine mit Mitochondrien ausgestattete Leberzelle führen die Produkte unterschiedlich weiter. Die betrachtete Zelle, das Ausgangsmolekül und der verfolgte Abschnitt gehören daher immer zur Rechnung. [2][7]
Der Gesamtweg lässt sich als zusammenhängende Folge lesen: Kohlenstoff wird aufgeteilt, Acetylgruppen werden gebildet, Zykluspartner regeneriert und Elektronen an die Membran übertragen. Die Zelle koppelt diese Schritte an ihren aktuellen Bedarf und entnimmt zugleich Bausteine für andere Aufgaben. So entsteht aus einer Abfolge chemischer Namen ein räumlich und funktionell gegliedertes Netzwerk. [1][2][7][10]
Bilanz ab einer freien Glucose
| Weg oder Struktur | Funktion und Zusammenhang |
|---|---|
| Glykolyse | Zwei Pyruvat, zwei ATP netto und zwei NADH. Zuvor werden zwei ATP eingesetzt und vier ATP gebildet. [7][8] |
| Pyruvatweg | Pyruvatdehydrogenase: Aus zwei Pyruvat entstehen zwei Acetyl-CoA, zwei CO₂ und zwei NADH. [9] |
| Zwei Zyklusumläufe | Zwei Acetylgruppen liefern zusammen vier CO₂, sechs NADH, zwei reduzierte FAD-gebundene Enzymsysteme und zwei GTP beziehungsweise ATP. [10][17] |
| Oxalacetat | Wird im Zyklus regeneriert; zusätzliche Auffüllreaktionen gleichen die Entnahme von Zwischenprodukten aus. [10][23] |
| Innere Membran | Überträgt die Elektronen weiter und koppelt Protonentransport an ATP-Bildung. [41][44] |
Wichtige Begriffe
- MPC
- Transportkomplex der inneren Mitochondrienmembran, über den Pyruvat die Matrix erreicht. [13]
- Acetyl-CoA
- An Coenzym A gebundene Acetylgruppe mit zwei Kohlenstoffatomen. [9][10]
- Anaplerose
- Auffüllung von Zwischenprodukten eines Stoffwechselzyklus durch zusätzliche Reaktionen. [9][10]
- Oxalacetat
- Vierkohlenstoffverbindung, die im Citratzyklus eine Acetylgruppe aufnimmt und im Umlauf regeneriert wird. [10]
Häufige Fragen
Warum wird die Glykolyse mit zwei ATP netto angegeben?
Beim Start ab freier Glucose werden zunächst zwei ATP eingesetzt. Später entstehen vier ATP durch Substratkettenphosphorylierung. Die Differenz beträgt zwei ATP; zugleich entstehen zwei Pyruvat und zwei NADH. [7][8]
Wie bleibt Oxalacetat verfügbar?
Der vollständige Zyklus bildet Oxalacetat aus Malat zurück. Werden Zwischenprodukte für andere Synthesen entnommen, ergänzen Auffüllreaktionen den Bestand. Die Pyruvatcarboxylase kann beispielsweise aus Pyruvat und Hydrogencarbonat unter ATP-Verbrauch Oxalacetat bilden. [9][10]
Im Gesundheitswissen weiterlesen
Quellen und Weiterlesen
- Naturheilpraxis Heute: Energiehaushalt Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.1. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Kohlenhydrate und Kohlenhydratstoffwechsel Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.2. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Fette und Fettstoffwechsel Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.3. Abgerufen am 07.11.2026.
- Alberts et al.: Catalysis and the Use of Energy by Cells Molecular Biology of the Cell, 4. Ed., Garland, 2002. Abgerufen am 07.11.2026.
- Cooper: Metabolic Energy The Cell: A Molecular Approach, 2. Ed., Sinauer, 2000. Abgerufen am 07.11.2026.
- Reactome: Glycolysis Homo sapiens, kuratierter Signalweg; Review 02.06.2025. Abgerufen am 07.11.2026.
- Reactome: Pyruvate metabolism Homo sapiens, DOI 10.3180/R-HSA-70268.9. Abgerufen am 07.11.2026.
- Reactome: Citric acid cycle Homo sapiens, DOI 10.3180/R-HSA-71403.5; Review 15.02.2024. Abgerufen am 07.11.2026.
- Bricker et al.: A mitochondrial pyruvate carrier required for pyruvate uptake in yeast,Drosophila,and humans Science, 2012;337:96–100. DOI 10.1126/science.1218099. Abgerufen am 07.11.2026.
- Bergman et al.: Active muscle and whole body lactate kinetics after endurance training in men J Appl Physiol1999;87:1684–1696. DOI 10.1152/jappl.1999.87.5.1684. Abgerufen am 07.11.2026.
- Haddad/Mohiuddin: Biochemistry,Citric Acid Cycle StatPearls, aktualisiert01.05.2023. Abgerufen am 07.11.2026.
- Chaudhry/Varacallo: Biochemistry,Glycolysis StatPearls, aktualisiert08.08.2023. Abgerufen am 07.11.2026.
- Chourpiliadis/Mohiuddin: Biochemistry,Gluconeogenesis StatPearls, aktualisiert05.06.2023. Abgerufen am 07.11.2026.
- Reactome: Glutamate and glutamine metabolism Homo sapiens, kuratierteReaktionen. Abgerufen am 07.11.2026.
- Alberts et al.: Electron-Transport Chains and Their Proton Pumps Alberts et al., Molecular Biology of the Cell, 4.Auflage, 2002. Abgerufen am 07.11.2026.
- Reactome: Formation of ATP by chemiosmotic coupling Reactome, R-HSA-163210, Homo sapiens. Abgerufen am 07.11.2026.