Auf einen Blick
- Membranrezeptoren koppeln Hormone an G-Proteine, eigene Kinasen oder angelagerte Kinasen.
- Nukleäre Rezeptoren verbinden die Hormonbindung mit regulatorischen Proteinen und DNA.
- Transporter, Rezeptorzahl und Rückstellmechanismen verändern die Empfindlichkeit der Zielzelle.
Vom Botenstoff zur veränderten Funktion
Ein Hormonrezeptor ist ein Protein mit einer passenden Bindungsstelle für einen Botenstoff. Das gebundene Molekül heißt Ligand. Seine Bindung verschiebt die räumliche Form oder den Aktivitätszustand des Rezeptors. Dadurch werden auf der Innenseite einer Membran weitere Proteine angesprochen oder im Zellkern regulatorische Komplexe verändert. Die empfangende Zelle kann dann vorhandene Enzyme beeinflussen, Transportproteine umverteilen, Sekrete abgeben oder ihre Genaktivität anpassen. Rezeptoren bilden die Verbindung zwischen der ankommenden chemischen Information und der jeweils möglichen Zellarbeit. [1][37]
Die Konzentration des Hormons, seine Bindungseigenschaften und die Zahl zugänglicher Rezeptoren beeinflussen, wie stark der Signalweg angeregt wird. Im Blut gebundene Hormone müssen außerdem in die freie Fraktion übergehen; für manche Signale sind passende Transporter zum Zellinneren nötig. Hinter einem Laborwert liegen daher weitere Stationen der Verteilung und Verarbeitung. Besonders anschaulich ist der Weg von T4 über den Zelltransport und örtliche Deiodierung bis zum nukleären T3-Rezeptor. [1][3][17][32]
Wo die Rezeptoren liegen
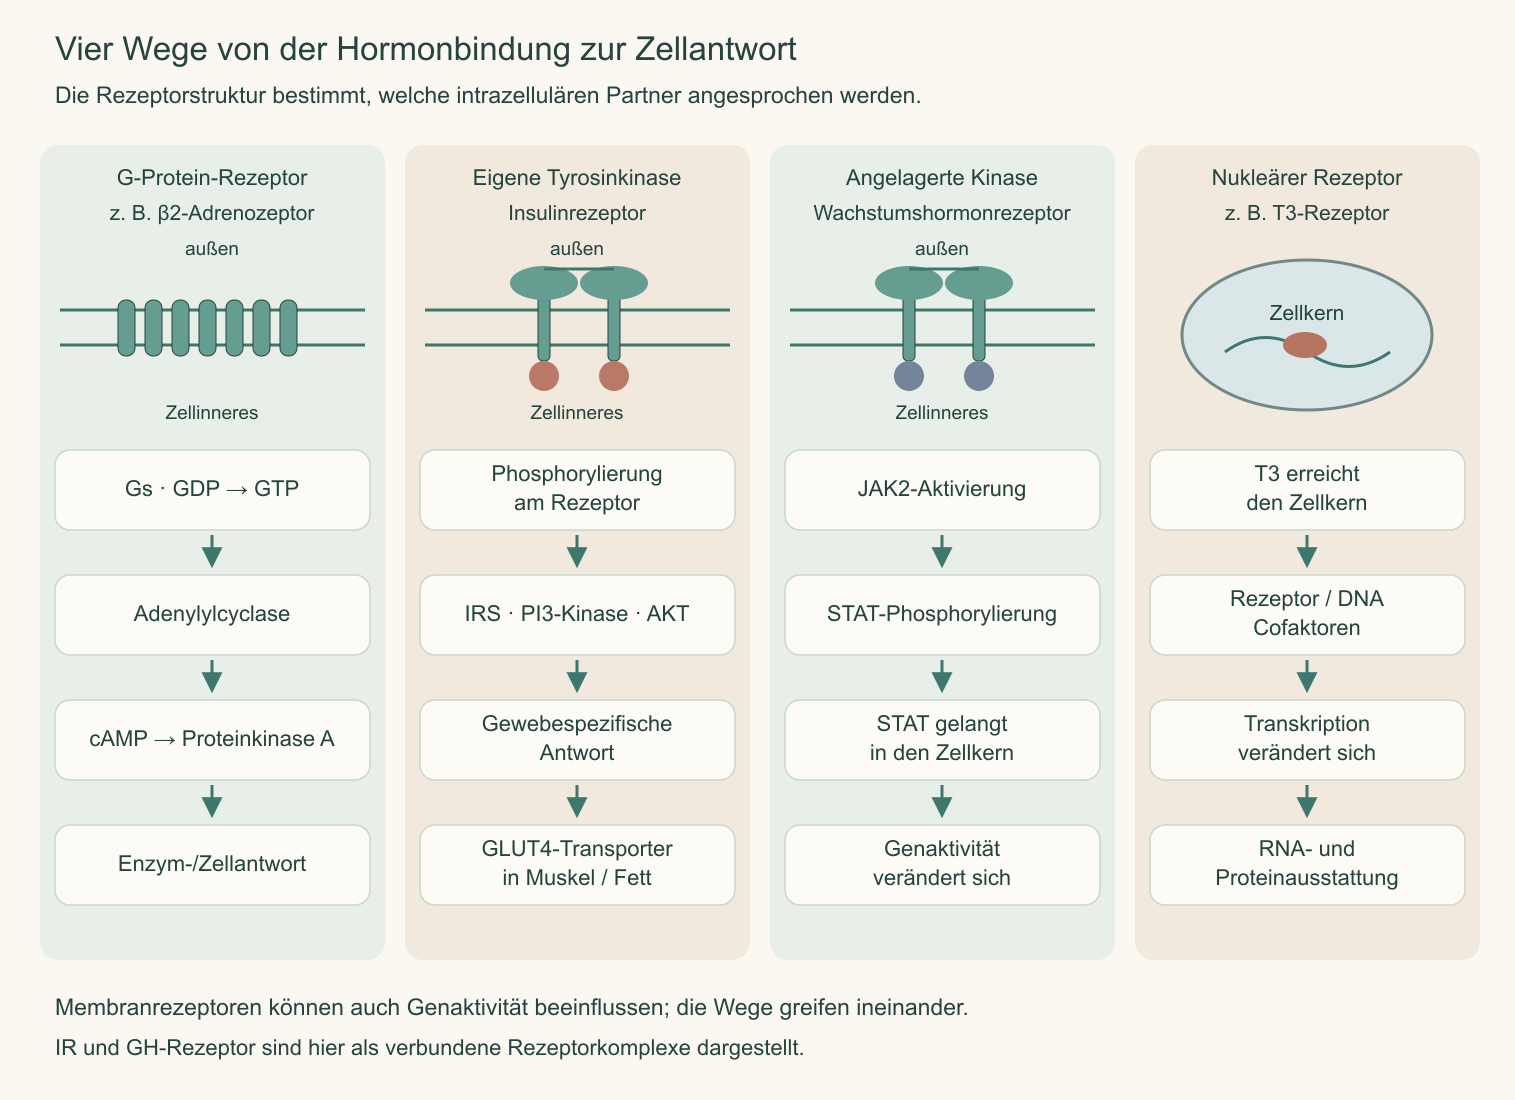
Peptid- und Proteinhormone sowie Katecholamine binden überwiegend an Rezeptoren der Zellmembran. Der außen liegende Teil erkennt das Signal. Der durch die Membran verlaufende und der innere Anteil koppeln es an die intrazelluläre Antwort. Das Hormon kann so eine Reaktion auslösen, während es zunächst im Extrazellularraum bleibt. Viele solcher Rezeptoren besitzen mehrere Membrandurchgänge, andere nur einen je Proteinkette. Die Struktur bestimmt mit, welche Partner auf der Innenseite angesprochen werden. [1][31][34][37]
Die klassischen Rezeptoren für Steroidhormone und Schilddrüsenhormone liegen dagegen im Cytoplasma oder Zellkern. Steroide erreichen ihr Zellinneres aufgrund ihrer lipophilen Eigenschaften; Schilddrüsenhormone nutzen Membrantransporter. Anschließend wird das Signal mit Chromatin und regulatorischen Proteinen verknüpft. Diese Anordnung ermöglicht eine direkte Verbindung zur Transkriptionskontrolle. Die entstehenden Veränderungen von RNA und Proteinen wirken mit den bereits vorhandenen Stoffwechselwegen der Zelle zusammen. [1][17][36]
G-Protein-gekoppelte Rezeptoren übersetzen Signale an der Membran
G-Protein-gekoppelte Rezeptoren, GPCR, durchqueren die Membran mit sieben Helices. Nach Aktivierung können sie ein benachbartes heterotrimeres G-Protein beeinflussen, das aus einer Alpha-, Beta- und Gamma-Untereinheit besteht. An der Alpha-Untereinheit wird GDP gegen GTP ausgetauscht. Dadurch verändert sich die Zusammenarbeit der Untereinheiten, und Effektorproteine werden reguliert. Die beteiligten Komponenten liegen an der inneren Membranseite. Unterschiedliche G-Proteintypen führen zu unterschiedlichen nachgeschalteten Wegen. [34][57]
Ein gut untersuchtes Beispiel ist der Beta2-Adrenozeptor. Er kann über Gs die Adenylylcyclase aktivieren. Die Struktur eines Komplexes aus aktiviertem Rezeptor und Gs wurde experimentell aufgeklärt. Sie zeigte, wie die Bindung auf der Außenseite mit veränderten Kontaktflächen auf der Innenseite zusammenhängt. Für die Physiologie ist dabei wesentlich: Der Rezeptor übermittelt die Information über eine Formänderung an ein eigenes intrazelluläres Partnerprotein. [34]
Gesundheitskapitel
cAMP und Calcium als zweite Botenstoffe
Die Adenylylcyclase bildet aus ATP den zweiten Botenstoff cAMP. Dieser kann Proteinkinase A aktivieren. Kinasen übertragen Phosphatgruppen auf geeignete Proteine; dadurch ändern sich deren Aktivität und Wechselwirkungen. Eine solche Kaskade kann aus wenigen aktivierten Rezeptoren viele nachgeschaltete Reaktionen entstehen lassen. cAMP wird durch Phosphodiesterasen abgebaut. Zusammen mit weiteren abschaltenden Prozessen begrenzt das die Antwort zeitlich. Hormone wie Glukagon oder TSH nutzen solche Signalwege in ihren jeweiligen Zielzellen. [1][37]
Andere GPCR koppeln über Gq an Phospholipase C. Diese spaltet das Membranlipid PIP2 in die Signalprodukte IP3 und Diacylglycerol. IP3 erreicht Calciumkanäle des endoplasmatischen Retikulums und fördert die Freisetzung gespeicherter Calciumionen ins Cytosol. Diacylglycerol verbleibt in der Membran und wirkt an weiteren Signalkomponenten mit. Calcium bindet beispielsweise an Calmodulin und beeinflusst dadurch Enzyme und andere Zellprozesse. Die Zielantwort ergibt sich aus den jeweils vorhandenen Effektoren und Proteinen. [37][57]
Der Insulinrezeptor besitzt eine eigene Kinase
Der Insulinrezeptor gehört zu den Rezeptor-Tyrosinkinasen. Er besteht bereits vor der Hormonbindung aus miteinander verbundenen Rezeptorhälften. Außen liegen insulinbindende Anteile, innen die Tyrosinkinasedomänen. Insulin stabilisiert eine für die Aktivierung geeignete Anordnung. Die inneren Domänen phosphorylieren einander und weitere Proteine. Phosphorylierte Rezeptorbereiche und Insulin-Rezeptor-Substrate, IRS, bilden Anlagerungsstellen für weitere Signalmoleküle. Der Empfänger besitzt damit selbst die Enzymaktivität, die den Anfang der Kaskade ermöglicht. [31][61]
Eine Kryo-Elektronenmikroskopie-Studie untersuchte einen vollständig mit Ligand besetzten gereinigten menschlichen Insulinrezeptorkomplex. Die Struktur machte eine charakteristische aktive Gesamtanordnung und verschiedene Insulinbindungsstellen sichtbar. Solche Untersuchungen erklären die räumlichen Grundlagen der Aktivierung. Sie zeigen zugleich, weshalb eine Zeichnung des Insulinrezeptors die bereits miteinander verbundenen Hälften und ihre getrennten äußeren und inneren Aufgaben berücksichtigen sollte. [31]
Ein Signalweg mit gewebespezifischen Ergebnissen
Vom aktivierten Insulinrezeptor führt ein wichtiger Weg über IRS, PI3-Kinase und die Kinase AKT. In Muskel- und Fettzellen unterstützt er, dass GLUT4-haltige Vesikel mit der Zellmembran verschmelzen. Mehr Glucosetransporter stehen dann für die Aufnahme von Glucose bereit. In der Leber beeinflusst Insulin unter anderem Glucoseproduktion und Glykogenspeicherung. Die jeweiligen Zelltypen übersetzen das gemeinsame Signal somit über verschiedene vorhandene Transporter, Enzyme und Stoffwechselaufgaben. [61]
Insulinresistenz bezeichnet eine verminderte Antwort auf Insulin, besonders in Muskel, Fettgewebe und Leber. Sie kann mehrere Stationen der Signalverarbeitung und deren Stoffwechselumgebung betreffen. Die Bauchspeicheldrüse kann darauf zunächst mit einer veränderten Ausschüttung reagieren. Für die klinische Beurteilung werden Stoffwechselbefunde und Gesamtzusammenhang betrachtet. Der Begriff beschreibt eine funktionelle Antwort auf das Signal und führt die Aufmerksamkeit auf die Empfängerseite des hormonellen Netzes. [60]
Manche Rezeptoren arbeiten mit angelagerten Kinasen
Der Wachstumshormonrezeptor besitzt keine eigene Tyrosinkinasedomäne. Er arbeitet mit einer angelagerten Januskinase, JAK2, zusammen. Nach geeigneter Aktivierung werden Rezeptorbereiche und Signalproteine phosphoryliert. Dazu gehören STAT-Proteine, die sich verbinden und in den Zellkern gelangen können. Dort beeinflussen sie die Genaktivität. Dieser JAK-STAT-Weg verbindet eine Hormonbindung an der Oberfläche mit einer Antwort der Transkription. [21]
Am Beispiel von GH wird auch die Begrenzung innerhalb der Signalkette sichtbar. SOCS-Proteine können die JAK-gekoppelte Weiterleitung bremsen. Die Zelle bildet so regulatorische Partner, die ihre Antwort auf weitere Stimulation verändern. Anregung und Begrenzung gehören zum selben System. Solche Rückmeldungen erlauben eine veränderliche Empfindlichkeit, während sich Hormonkonzentration und physiologischer Zustand ändern. [21]
Nukleäre Rezeptoren verändern die Transkriptionskontrolle
Der Glukokortikoidrezeptor bindet Cortisol und verändert die Zusammenarbeit mit regulatorischen Proteinen und dem Chromatin. Abhängig vom Zielgen und vom Zelltyp kann die Transkription steigen oder sinken. Zugänglichkeit der DNA, Cofaktoren und weitere Signale bestimmen die Antwort mit. Dadurch wirkt dasselbe Hormon in Leber, Immunzellen oder anderen Geweben auf unterschiedliche Programme. Die räumliche Struktur des Rezeptors verbindet die Ligandenbindung mit veränderlichen Kontaktflächen für diese Partner. [36]
Schilddrüsenhormonrezeptoren befinden sich vielfach bereits an regulatorischen DNA-Bereichen. T3 verändert dort die Zusammensetzung und Funktion der gebundenen Proteinkomplexe. Die Zelle passt dadurch ihre Expression von Zielgenen an. Für das Verständnis sind deshalb zwei Schritte hilfreich: Zunächst muss genügend T3 am Rezeptor verfügbar sein; anschließend muss die regulatorische Umgebung des betreffenden Gens eine passende Antwort ermöglichen. Transport, örtliche Aktivierung und Transkription greifen ineinander. [17][32]
Wie die Zelle ihre Empfindlichkeit verändert
Rezeptoren werden fortlaufend hergestellt, verändert, in die Membran eingebaut und wieder aufgenommen. Bei Beta2-Adrenozeptoren können spezielle Rezeptorkinasen nach Aktivierung Phosphatgruppen anlagern. Beta-Arrestine binden an den passend aktivierten und phosphorylierten Rezeptor und verändern dessen weitere Kopplung. Es können sich Prozesse der Internalisierung anschließen. Experimentelle Untersuchungen in lebenden Zellen zeigen, wie wiederholte Aktivierung und veränderte Phosphorylierungsmuster diese Bindungen beeinflussen. [58][59]
Nach der Aufnahme in intrazelluläre Kompartimente kann ein Teil der Rezeptoren wieder zur Oberfläche gelangen. Andere werden abgebaut. Auch zweite Botenstoffe, Enzyme und regulatorische Proteine besitzen eigene Abbau- und Rückstellvorgänge. Die aktuelle Empfindlichkeit einer Zelle entsteht deshalb aus ihrer jüngsten Signalgeschichte und ihrer vorhandenen Ausstattung. Die Forschung unterscheidet dabei einzelne Rezeptormechanismen, Zellmodelle und die komplexe Antwort eines ganzen Organs. [1][58][59]
Drei Fragen machen Hormonsignale verständlich
Bei einem Hormon lassen sich zunächst Bildungsort und Transportweg verfolgen. Danach folgt die Frage nach dem Rezeptor und seinem Zellkompartiment. Schließlich wird betrachtet, welche konkrete Arbeit im Zielgewebe verändert wird: ein Transportvorgang, eine Sekretion, ein Enzymweg oder die Herstellung von Proteinen. Diese Reihenfolge verbindet Moleküle mit Organfunktionen. Sie erklärt zugleich, weshalb Hormonsignale über verschiedene Zeiträume wirken und weshalb Gewebe auf dieselbe Konzentration unterschiedlich antworten können. [1][17][21][31]
Im Gesundheitswissen weiterlesen
Die wichtigsten Wege im Vergleich
| Struktur oder Weg | Aufbau und Funktion |
|---|---|
| G-Protein-gekoppelt | Sieben Membrandurchgänge; G-Protein als eigener Partner Beispiel β2: Gs, Adenylylcyclase, cAMP und Proteinkinase A. [34][37][57] |
| Eigene Tyrosinkinase | Insulinrezeptor mit verbundenen Hälften und intrazellulären Kinasedomänen Phosphorylierung, IRS/PI3-Kinase/AKT; GLUT4-Umverteilung in Muskel/Fett. [31][61] |
| Angelagerte Kinase | GH-Rezeptor arbeitet mit JAK2 STAT-Proteine koppeln die Aktivierung an Veränderungen der Genaktivität. [21] |
| Nukleärer Rezeptor | Rezeptor, Chromatin und regulatorische Partner T3- beziehungsweise Cortisolbindung verändert zielgen- und zellabhängige Transkription. [17][36] |
Wichtige Begriffe
- Ligand
- Molekül, das eine passende Bindungsstelle eines Rezeptors besetzt.
- Kinase
- Enzym, das Phosphatgruppen auf geeignete Substrate überträgt.
- Transkription
- Herstellung einer RNA anhand einer DNA-Vorlage; regulierter Schritt der Genexpression.
Häufige Fragen
Was ist ein zweiter Botenstoff?
Ein innerhalb der Zelle verändertes Signalmolekül, das die Rezeptoraktivierung weitergibt. cAMP entsteht beispielsweise nach Aktivierung der Adenylylcyclase und kann Proteinkinase A beeinflussen. Auch Calcium übernimmt solche intrazellulären Signalaufgaben. [1][37][57]
Wie verändert eine Zelle ihre Hormonempfindlichkeit?
Sie verändert Rezeptorzahl, Membranverteilung und regulatorische Partner. Phosphorylierung, Arrestinbindung und Internalisierung können GPCR-Antworten neu einstellen. Abbau und Rücktransport von Rezeptoren sowie der Zustand nachgeschalteter Proteine tragen gemeinsam zur aktuellen Empfindlichkeit bei. [1][58][59]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- Naturheilpraxis Heute: Funktion und Arbeitsweise der Hormone 7. Auflage, Elsevier 2024, 19.2.1. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Schilddrüse und Schilddrüsenhormone 7. Auflage, Elsevier 2024, 19.2.4. Abgerufen am 07.11.2026.
- Sinha RA, Yen PM: Cellular Action of Thyroid Hormone Endotext, 2018. Abgerufen am 07.11.2026.
- Olarescu NC et al.: Normal Physiology of Growth Hormone in Normal Adults Endotext, aktualisiert 18.04.2025. Abgerufen am 07.11.2026.
- Uchikawa E et al.: Activation mechanism of the insulin receptor revealed by cryo-EM structure of the fully liganded receptor–ligand complex eLife 2019;8:e48630. DOI 10.7554/eLife.48630. Abgerufen am 07.11.2026.
- Dumitrescu AM et al.: A novel syndrome combining thyroid and neurological abnormalities is associated with mutations in a monocarboxylate transporter gene Am J Hum Genet 2004;74:168–175. DOI 10.1086/380999. Abgerufen am 07.11.2026.
- Rasmussen SGF et al.: Crystal structure of the β2 adrenergic receptor–Gs protein complex Nature 2011;477:549–555. DOI 10.1038/nature10361. Abgerufen am 07.11.2026.
- Weikum ER et al.: Glucocorticoid receptor control of transcription: precision and plasticity via allostery Nat Rev Mol Cell Biol 2017;18:159–174. DOI 10.1038/nrm.2016.152. Abgerufen am 07.11.2026.
- OpenStax: Hormones Institutionelle anatomische und physiologische Fachinformation. Abgerufen am 07.11.2026.
- Purves D et al.: G-Proteins and Their Molecular Targets Institutionelle anatomische und physiologische Fachinformation. Abgerufen am 07.11.2026.
- Krasel C et al.: Beta-arrestin binding to the beta2-adrenergic receptor requires both receptor phosphorylation and receptor activation J Biol Chem 2005;280:9528–9535. DOI 10.1074/jbc.M413078200. Abgerufen am 07.11.2026.
- Zindel D et al.: Engineered hyperphosphorylation of the β2-adrenoceptor prolongs arrestin-3 binding and induces arrestin internalization Mol Pharmacol 2015;87:349–362. DOI 10.1124/mol.114.095422. Abgerufen am 07.11.2026.
- NIDDK: Insulin Resistance and Prediabetes Institutionelle anatomische und physiologische Fachinformation. Abgerufen am 07.11.2026.
- De Meyts P: The Insulin Receptor and Its Signal Transduction Network Endotext, 2016. Abgerufen am 07.11.2026.