Auf einen Blick
- Prä- und postganglionäre Neurone bilden den typischen autonomen Organweg.
- Ganglion und Zielgewebe besitzen unterschiedliche Rezeptororganisationen.
- Am Baroreflex lässt sich die Abstimmung sympathischer und kardial-vagaler Ausgänge verfolgen.
Zwei Neurone bilden den typischen efferenten Organweg
Gesundheitskapitel
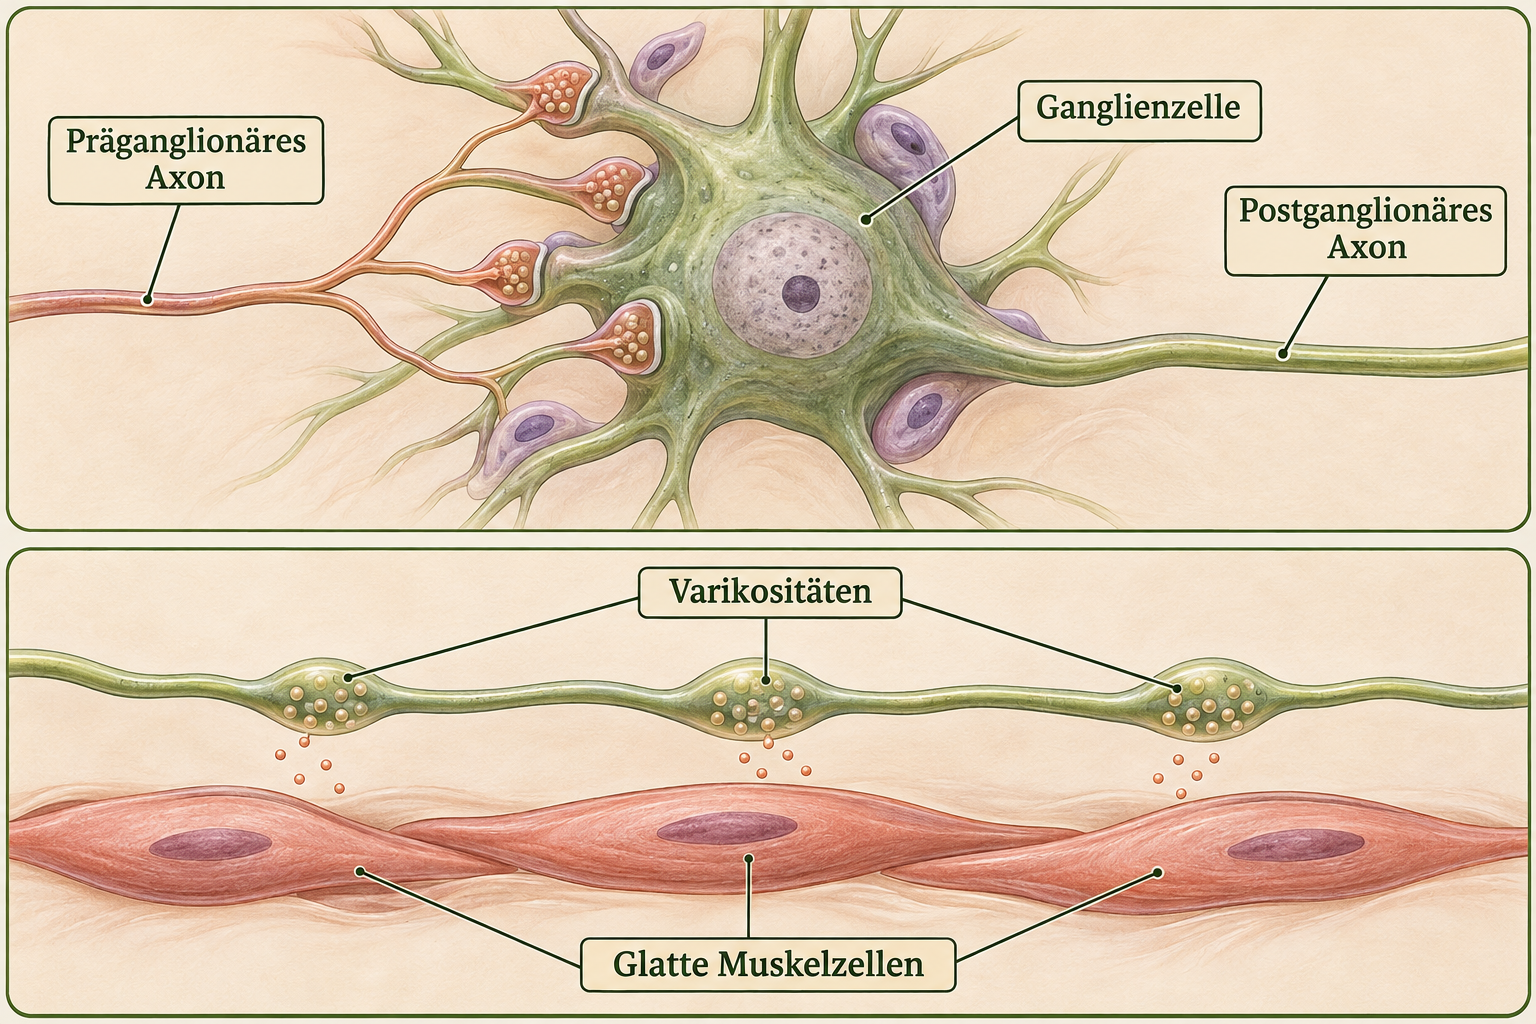
Der Zellkörper des präganglionären Neurons liegt im Hirnstamm oder Rückenmark. Sein Axon verlässt das ZNS und erreicht ein autonomes Ganglion. Dort entstehen Synapsen auf nachgeschalteten Nervenzellen. Deren postganglionäre Axone ziehen weiter zum Organ. Die zwei neuronalen Zellkörper liegen damit auf verschiedenen Seiten der ZNS-PNS-Grenze; das Ganglion enthält die periphere Umschaltstelle. [4] [41]
Präganglionäre Axone sind gewöhnlich dünn myelinisiert, postganglionäre Axone meist unmyelinisiert. Beide bleiben eigenständige Fortsätze mit eigener Membran. Im Ganglion liegt eine chemische Synapse zwischen den beteiligten Zellen. Die Aktivität der ersten Zelle wird über Botenstofffreisetzung und Rezeptoren in einen Einfluss auf die nächste Zelle übersetzt. [4]
Das räumliche Verhältnis kann unterschiedlich sein. Liegt das Ganglion nahe an der Wirbelsäule, folgt häufig eine längere postganglionäre Strecke. Liegt es nahe am Ziel oder in seiner Wand, kann die präganglionäre Strecke lang und die nachgeschaltete kurz sein. Die Begriffe vor und nach dem Ganglion bezeichnen dabei die Reihenfolge im efferenten Weg. [4] [41]
Der Grenzstrang verteilt thorakolumbale Fasern über mehrere Höhen
Sympathische präganglionäre Fasern entspringen überwiegend im thorakolumbalen Rückenmark, typischerweise T1 bis L2. Sie ziehen über die Vorderwurzel in den kurzen Spinalnerv und dessen ventralen Anschlussbereich. Weiße Rami communicantes führen sie zum Grenzstrang. Die weiße Farbe hängt mit dem Myelin zahlreicher präganglionärer Fasern zusammen. Der Grenzstrang liegt beidseits seitlich der Wirbelsäule. [40] [41] [42]
Eine Faser kann im ersten erreichten Ganglion umgeschaltet werden. Sie kann auch im Grenzstrang nach oben oder unten ziehen und erst an einer anderen Höhe enden. Nach der Umschaltung gelangen manche Axone über graue Rami zurück in Spinalnerven. Sie erreichen auf diesem Weg unter anderem Hautgefäße, Haarbalgmuskeln und ekkrine Schweißdrüsen in verschiedenen Körperregionen. [4] [40] [42]
Andere postganglionäre Fasern verlassen die Ganglien als Organäste oder ziehen mit Gefäßgeflechten weiter. Kardiopulmonale Äste führen postganglionäre sympathische Fasern zu Brustorganen. Bei vielen abdominopelvinen Splanchnikuswegen bleibt die präganglionäre Faser zunächst erhalten und durchquert den Grenzstrang bis zu prävertebralen Ganglien. Erst dort schließt sich der postganglionäre Weg an. [40] [42]
Die Lage der Umschaltung wird deshalb für jeden benannten Weg eigens verfolgt. Ein Geflecht kann Fasern unterschiedlicher Herkunft und Richtung enthalten. Bei der Betrachtung einer Faser bleibt entscheidend, wo ihr Zellkörper liegt, ob sie bereits ein Ganglion durchlaufen hat und welches Ziel erreicht wird. Diese drei Angaben machen komplexere Nervenzeichnungen lesbar. [40] [41] [42]
Parasympathische Ausgänge nutzen organnahe Umschaltungen
Kraniale parasympathische Axone ziehen mit bestimmten Hirnnerven zu ihren Ganglien. Ein Beispiel führt aus dem Mittelhirn mit dem N. oculomotorius zum Ganglion ciliare. Von dort ziehen kurze nachgeschaltete Fasern zu glatten Muskeln des Auges. Andere kraniale Wege erreichen Tränen- und Speicheldrüsen oder verlaufen mit dem Vagus zu Brust- und Bauchorganen. [4] [11] [41]
Die sakralen präganglionären Neurone liegen typischerweise in S2 bis S4. Ihre Axone erreichen über Beckensplanchnikuswege Ganglien im Umfeld oder in den Wänden entsprechender Organe. Die nachgeschalteten Fasern beeinflussen unter anderem Darm- und Harnblasenfunktionen. Dieser sakrale Ausstrom gehört zur Rückenmarksorganisation, obwohl die zentrale Verarbeitung auch Hirnstamm und höhere Regionen einbezieht. [2] [3] [41]
Acetylcholin vermittelt die schnelle ganglionäre Übertragung
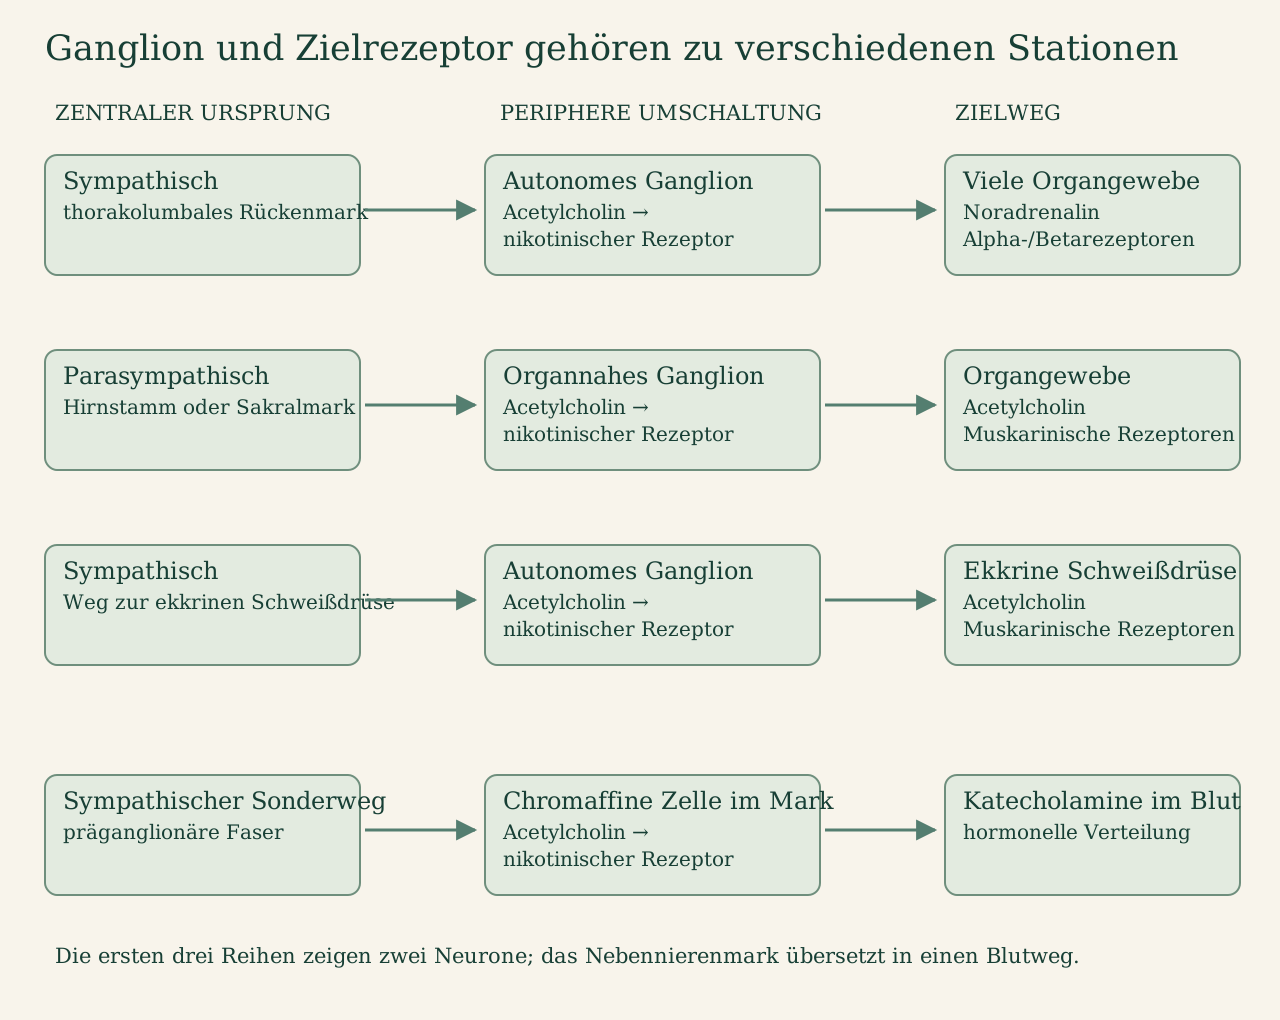
Sympathische und parasympathische präganglionäre Endigungen setzen Acetylcholin frei. An typischen schnellen ganglionären Synapsen bindet es an neuronale nikotinische Rezeptoren. Diese Rezeptoren sind ligandengesteuerte Kationenkanäle. Ihre Aktivierung verändert die Leitfähigkeit der postsynaptischen Membran und kann das Ganglionneuron zur weiteren Impulsbildung anregen. Der chemische Schritt liegt zwischen zwei räumlich getrennten Nervenzellen. [4]
Ein Ganglionneuron erhält synaptische Eingänge an Zellkörper und Dendriten. Die Eingänge werden mit den übrigen Membranbedingungen verrechnet; sein Axon führt die resultierende Aktivität zum Ziel. Die Grundregel präganglionäres Acetylcholin beschreibt den typischen schnellen Übertragungsweg. Unterschiedliche Verschaltungen und zusätzliche modulierende Einflüsse können die Weiterverarbeitung innerhalb des Ganglions ergänzen. [4] [11]
Am Organ wird die Wirkung über andere Rezeptoren umgesetzt
Gesundheitskapitel
Parasympathische postganglionäre Fasern setzen überwiegend Acetylcholin frei, das an muskarinische Zielrezeptoren bindet. Diese wirken über G-Proteine und nachgeschaltete intrazelluläre Prozesse. Viele sympathische postganglionäre Fasern verwenden Noradrenalin und erreichen adrenerge Alpha- oder Betarezeptoren. Auch diese Rezeptoren sind an G-Proteine gekoppelt. Der Übergang Nerv-Organ besitzt somit eine andere Rezeptororganisation als die schnelle ganglionäre Synapse. [4]
Die Antwort folgt der Ausstattung des Zielgewebes. An Schrittmacherzellen des Herzens beeinflussen autonome Signale die zeitlichen Bedingungen der Erregungsbildung. An glatten Muskelzellen werden unter anderem Kontraktionsbedingungen verändert, an Drüsenzellen die Sekretion. Rezeptor, Zelltyp und aktueller Zustand bestimmen gemeinsam die konkrete Organantwort. [4] [5] [41]
Eine wichtige sympathische Sonderverbindung führt zu ekkrinen Schweißdrüsen. Ihre postganglionären Fasern verwenden Acetylcholin, das muskarinische Rezeptoren aktiviert. Der sympathische Ursprung bleibt durch den anatomischen Weg bestimmt. Die Schweißdrüsenverbindung verbindet damit eine sympathische Faserorganisation mit einer cholinergen neuroeffektorischen Übertragung. [4] [5]
| Organisation | Anatomischer Zusammenhang |
|---|---|
| Präganglionär → autonomes Ganglion | Acetylcholin aktiviert bei der typischen schnellen Übertragung neuronale nikotinische Kationenkanäle. Dies gilt für sympathische und parasympathische Wege. [4] [5] [41] |
| Parasympathisch → Zielgewebe | Postganglionäres Acetylcholin beeinflusst überwiegend muskarinische Rezeptoren. Deren intrazelluläre Wirkung hängt von Rezeptortyp und Zielzelle ab. [4] [5] [41] |
| Sympathisch → viele Zielgewebe | Postganglionäres Noradrenalin aktiviert adrenerge Alpha- und Betarezeptoren. Der konkrete Gewebeeffekt wird organbezogen beschrieben. [4] [5] [41] |
| Sympathisch → ekkrine Schweißdrüse | Acetylcholin wirkt an muskarinischen Rezeptoren. Der sympathische Ursprung und die cholinerge Zielübertragung gehören zum selben benannten Weg. [4] [5] [41] |
| Präganglionär → Nebennierenmark | Acetylcholin aktiviert chromaffine Zellen. Sie geben Katecholamine ins Blut ab und übersetzen so neuronale Aktivität in hormonelle Verteilung. [4] [5] [41] |
Varikositäten verteilen die Freisetzung entlang des Zielwegs
Viele postganglionäre Endverzweigungen tragen entlang ihres Verlaufs Auftreibungen, die Varikositäten. Sie enthalten Vesikel und Freisetzungsstellen. Der Botenstoff gelangt aus diesen Bereichen in den Extrazellulärraum nahe den Zielzellen. Mehrere Freisetzungsorte können dadurch einen größeren Gewebeverband beeinflussen. Die axonale Membran und die Membranen der Zielzellen bleiben jeweils getrennte Grenzflächen. [4]
Die Abbildung zeigt den vorbeiziehenden Nervenfortsatz, seine vesikelhaltigen Auftreibungen und darunter die langgestreckten glatten Muskelzellen. Der Stoffweg führt von der Nervenendigung über den Zwischenraum zur Rezeptorseite. Die anatomische Verbindung schafft den Ort der Wirkung; deren zeitlicher Verlauf hängt von Freisetzung, Rezeptorsignal und Entfernung des Botenstoffs ab. [4]
Das Nebennierenmark verbindet präganglionäre Aktivität mit dem Blutweg
Ein besonderer sympathischer Weg zieht direkt zu chromaffinen Zellen des Nebennierenmarks. Die ankommende Faser ist präganglionär und verwendet Acetylcholin. Die chromaffine Zielzelle setzt Katecholamine in ihre Gefäßumgebung und damit ins Blut frei. Anstelle eines langen nachgeschalteten Axons folgt hier eine hormonelle Verteilung zu weiter entfernten Geweben. [4] [41]
Diese Organisation erklärt, warum nervale und hormonelle Antworten an derselben anatomischen Schnittstelle zusammenkommen können. Der zentrale Ursprung und die präganglionäre Leitung gehören zum sympathischen Ausgang. Die weitere Verteilung richtet sich nach Bluttransport und erreichbaren Rezeptoren. Die Nebennierenseite ordnet Mark und Rinde als verschiedene Gewebe innerhalb desselben Organs ein. [4] [41]
Der Baroreflex verbindet Afferenz und zwei autonome Ausgänge
Gesundheitskapitel
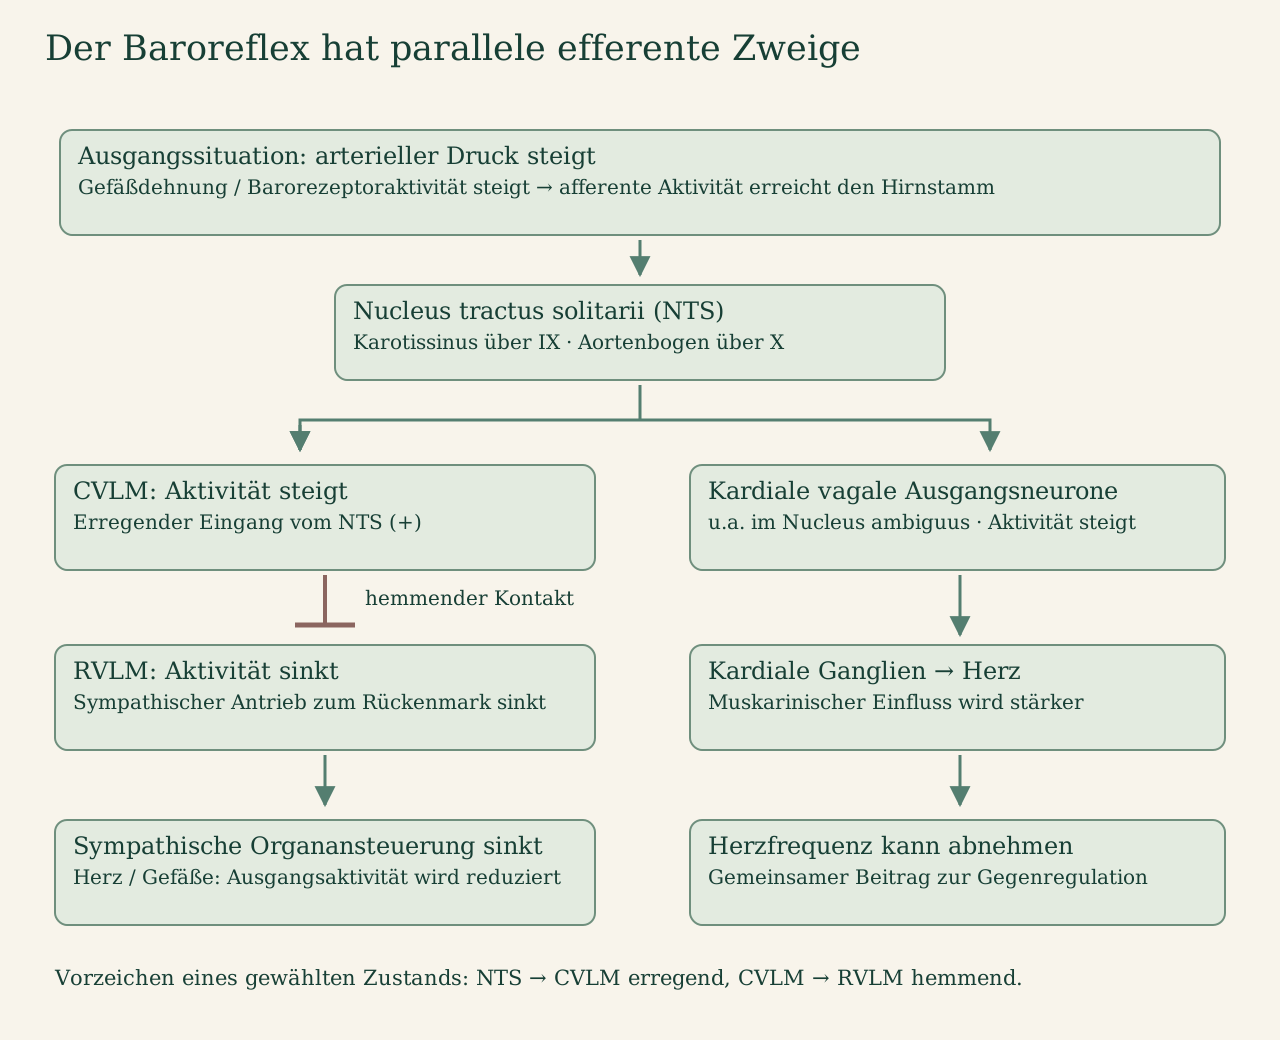
Arterielle Barorezeptoren reagieren auf Dehnung in Gefäßwänden. Afferenzen aus dem Karotissinus laufen mit dem N. glossopharyngeus, solche aus dem Aortenbogen mit dem Vagus. Beide erreichen den Nucleus tractus solitarii im Hirnstamm. Dort wird die mechanische Rückmeldung mit weiteren Eingängen in medulläre Verarbeitung übersetzt. Der sensible Schenkel liegt vor den sympathischen und parasympathischen efferenten Antworten. [5] [26]
Bei stärkerer Barorezeptoraktivierung erregt ein Zweig aus dem NTS Neurone der kaudalen ventrolateralen Medulla. Diese hemmen sympathisch aktive Netzwerke der rostralen ventrolateralen Medulla. Dadurch sinkt der antreibende Einfluss auf präganglionäre sympathische Neurone im Rückenmark. Die Folge kann eine verminderte sympathische Ansteuerung von Herz und Gefäßen sein. Die Zeichen der Zwischenkontakte erklären die Richtung der Gesamtantwort. [26]
Parallel werden kardiale vagale Ausgangsneurone beeinflusst, besonders im Zusammenhang von Nucleus ambiguus und weiteren vagalen Zellgruppen. Über präganglionäre Fasern und nachgeschaltete kardiale Ganglien steigt die vagale Wirkung am Herzen. Unter den betrachteten Bedingungen kann die Herzfrequenz abnehmen. Sympathischer und parasympathischer Zweig erreichen damit unterschiedliche Stationen eines gemeinsamen kreislaufbezogenen Regelzusammenhangs. [26] [44]
Bei einer sinkenden Dehnung verändert sich die Aktivität der afferenten Seite in die andere Richtung. Die daraus entstehende Anpassung wird mit dem aktuellen zentralen Zustand und weiteren Eingangssignalen verbunden. Beim Aufstehen hilft sie, Blutdruck und Organversorgung an die veränderte Verteilung anzupassen. Das Funktionsschema zeigt dafür die Strecke und die Vorzeichen der Verbindungen in einer gewählten Ausgangssituation. [5] [26] [41]
Ein konkreter Weg wird vom Zellkörper bis zum Ziel gelesen
Für die Zuordnung einer vegetativen Verbindung helfen vier Angaben: Ursprung des zentralen Neurons, Lage der peripheren Umschaltung, freigesetzter Botenstoff und Rezeptor des Zielgewebes. Viszerale Afferenzen werden als eigener Informationsweg ergänzt. Die autonome Übersicht ordnet diese Verbindungen in die Organregulation ein; die Synapsenseite erklärt die einzelnen chemischen Kontakte. [4] [5] [41]
Häufige Fragen
Wo findet die typische autonome Umschaltung statt?
Das präganglionäre Neuron liegt im ZNS. Sein Axon erreicht ein peripheres autonomes Ganglion und bildet dort Kontakte zu postganglionären Neuronen. Deren Axone erreichen das Zielgewebe. [4][41]
Wie führt ein Blutdruckanstieg zu einer langsameren Herzfrequenz?
Stärkere arterielle Dehnung erhöht die Barorezeptoraktivität. Medulläre Verbindungen vermindern sympathische und verstärken kardial-vagale Einflüsse. Über kardiale Ganglien und muskarinische Rezeptoren kann dadurch die Herzfrequenz abnehmen. [5][26][44]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- UTHealth Houston, Neuroscience Online: S2 Chapter 3 – Anatomy of the Spinal Cord Nachum Dafny. Abschnitte 3.1–3.10: Lage, Segmente, innere Struktur, Wurzeln und Faserstränge. Abgerufen am 07.11.2026.
- UTHealth Houston, Neuroscience Online: S4 Chapter 3 – Central Control of the Autonomic Nervous System and Thermoregulation Patrick Dougherty. Abschnitte 3.1–3.3: zentrale autonome Netzwerke und ihre Verbindungen. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 15.1 Divisions of the Autonomic Nervous System Betts et al., 2022. Sympathische und parasympathische Ursprünge, Ganglien und chemische Übertragung. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 15.2 Autonomic Reflexes and Homeostasis Betts et al., 2022. Aufbau viszeraler Reflexe, Afferenzen und organbezogene Rezeptorwirkungen. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 13.4 The Peripheral Nervous System Betts et al., 2022. Ganglia, Nerves und Spinal Nerves. Abgerufen am 07.11.2026.
- Biaggioni I et al.: Blood Pressure Management in Afferent Baroreflex Failure: JACC Review Topic of the Week J Am Coll Cardiol. 2019. DOI: 10.1016/j.jacc.2019.10.027. Grundverschaltung des arteriellen Baroreflexes und zentrale Illustration. Abgerufen am 07.11.2026.
- University of Arkansas for Medical Sciences: Nerves of the Thorax Anatomische Tabelle: Wurzeln und Hauptäste, Grenzstrang, weiße und graue Rami, Organplexus und Vagus. Abgerufen am 07.11.2026.
- Benarroch EE: Anatomy and Function of the Peripheral Autonomic System In: Autonomic Neurology. Oxford University Press, 2014. Kapitel 2, S. 15–30. DOI: 10.1093/med/9780199920198.003.0002. Anatomischer Überblick im Kapitelabstract. Abgerufen am 07.11.2026.
- StatPearls: Anatomy, Autonomic Nervous System Structure and Function: Sympathetic Nervous System. Präganglionäre Wege, Grenzstrang, Splanchnikusäste und prävertebrale Ganglien. Abgerufen am 07.11.2026.
- Gourine AV, Ackland GL: Cardiac Vagus and Exercise Physiology (Bethesda). 2019;34(1):71–80. DOI: 10.1152/physiol.00041.2018. Kardiale vagale Neuronenpopulationen. Abgerufen am 07.11.2026.