Auf einen Blick
- Chemische Synapsen koppeln Calcium-Einstrom an Vesikelfreisetzung.
- Rezeptor und Zielzelle bestimmen die elektrische oder biochemische Antwort.
- Zeit, Ort und Vorgeschichte verändern die Wirksamkeit einer Verbindung.
Eine Kontaktstelle mit einer klaren räumlichen Ordnung
Gesundheitskapitel
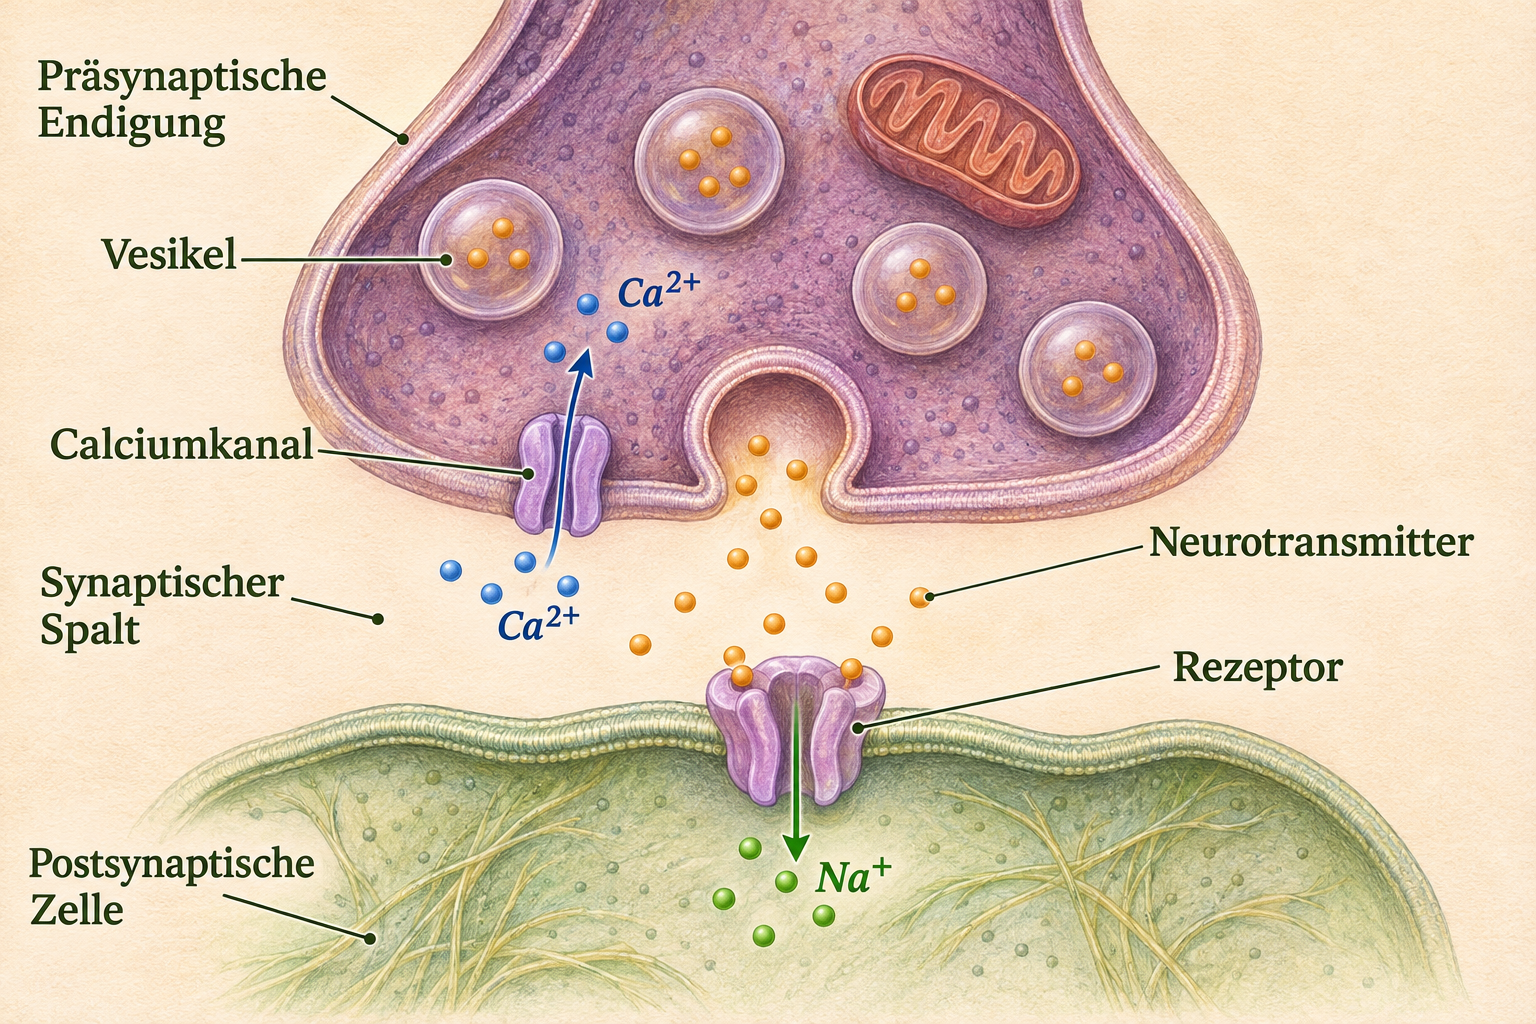
An einer chemischen Synapse werden eine präsynaptische Endigung, der extrazelluläre synaptische Spalt und die postsynaptische Membran unterschieden. Die präsynaptische Seite enthält Vesikel mit Botenstoff und die zugehörige Freisetzungsmaschinerie. Die postsynaptische Seite trägt Rezeptoren und nachgeschaltete Proteine. Beide Zellen bleiben durch ihre eigenen Plasmamembranen begrenzt. [4] [11] [29]
Die häufig dargestellte Endigung eines Axons auf einem Dendriten ist eine von mehreren Kontaktformen. Axone können auch an Zellkörpern oder an Axonabschnitten anderer Neurone ansetzen. Solche axoaxonischen Kontakte können die präsynaptische Freisetzung beeinflussen. Die Lage einer Synapse gehört deshalb zu den Informationen, die eine Schaltungszeichnung über ihren funktionellen Einfluss liefert. [4] [13]
Ein motorisches Endstück an einer Skelettmuskelfaser ist ebenfalls eine chemische Synapse. Dort trifft ein Neuron auf eine Muskelzelle. Im Nervengewebe verbindet eine Synapse dagegen häufig zwei Neurone. Die gemeinsamen Grundschritte lassen sich wiedererkennen; Rezeptoren, Geometrie und Stärke der Antwort unterscheiden sich mit der jeweiligen Kontaktstelle. [4] [12]
Das ankommende Signal öffnet einen Calciumweg
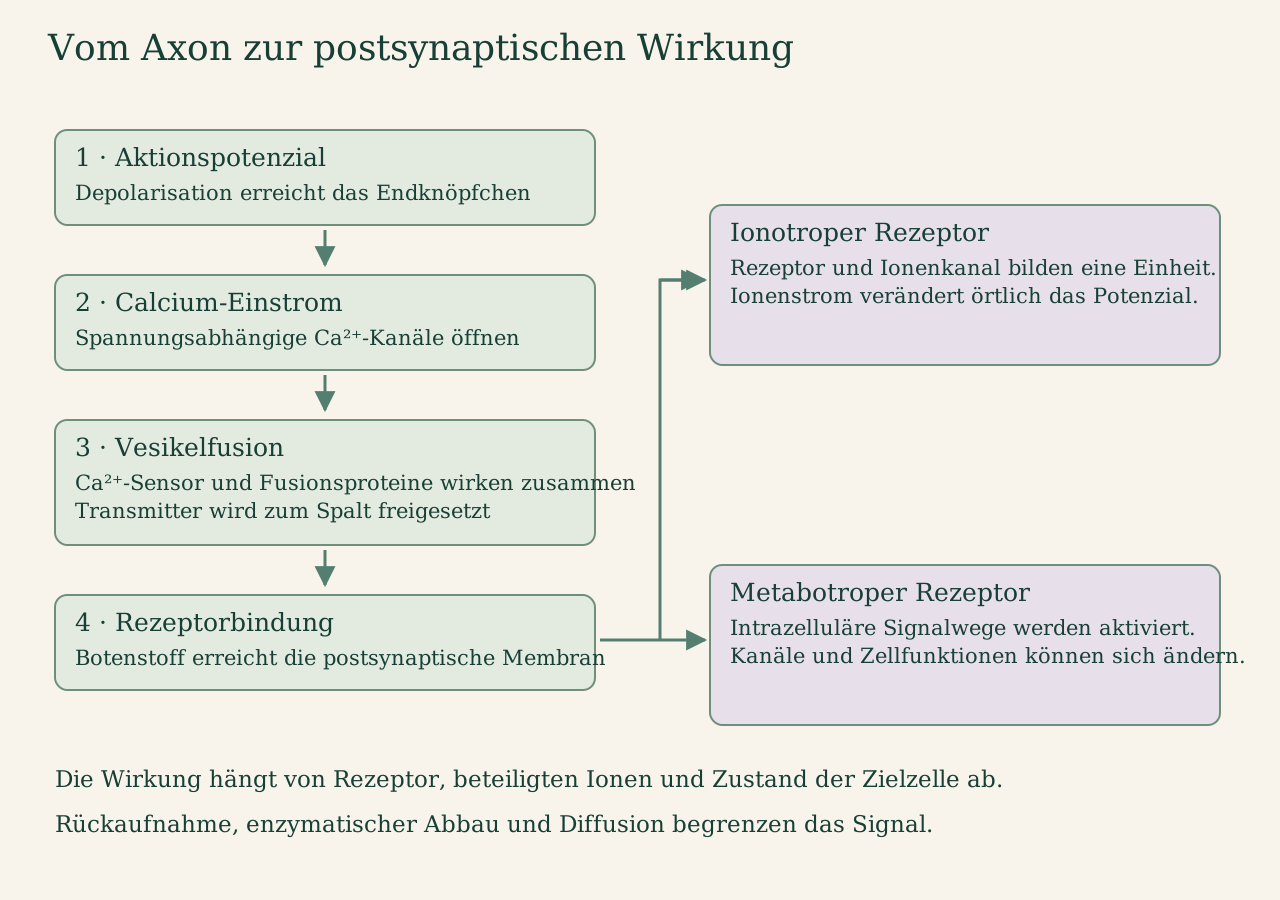
Ein eintreffendes Aktionspotenzial depolarisiert die präsynaptische Membran. Spannungsabhängige Calciumkanäle öffnen sich, und Calcium strömt aus dem Extrazellulärraum in das Endstück. Entscheidend ist die lokale Erhöhung der freien Calciumkonzentration nahe den Freisetzungsstellen. Die räumliche Nähe zwischen Kanal und Vesikel ermöglicht eine schnelle Verknüpfung von elektrischem Signal und Exozytose. [11] [29]
An der aktiven Zone werden Vesikel angedockt und für die Fusion vorbereitet. Synaptotagmin gehört zu den wichtigen Calciumsensoren; SNARE- und SM-Proteine wirken an der Membranfusion mit. Wenn Calcium den Sensor erreicht, wird die Öffnung einer Fusionspore begünstigt. Der Vesikelinnenraum verbindet sich dadurch vorübergehend mit dem Extrazellulärraum. [29]
Der Botenstoff tritt aus dem Vesikel in den Spalt aus. Die Vesikelmembran wird Teil der präsynaptischen Oberfläche und anschließend über Recyclingprozesse weiterverarbeitet. Calciumkonzentration, verfügbare vorbereitete Vesikel und Zustand der Fusionsproteine beeinflussen, wie viel Transmitter bei einem Impuls freigesetzt wird. Die Freisetzung besitzt daher eine regulierbare Wahrscheinlichkeit und Stärke. [11] [13] [29]
Freisetzung erfolgt in kleinen Einheiten
Die Analyse kleiner spontaner Antworten an der motorischen Endplatte lieferte eine wichtige Grundlage für das Verständnis vesikulärer Freisetzung. Einzelne Vesikel erzeugen kleine Beiträge zur postsynaptischen Antwort; bei ausgelöster Freisetzung können viele Beiträge zusammenkommen. Die tatsächlich gemessene Größe hängt von Vesikelinhalt, Rezeptoren und Eigenschaften der Zielzelle ab. [11] [12]
Ein ankommender Impuls und eine postsynaptische Antwort sind deshalb über mehrere regulierbare Schritte gekoppelt. Bei manchen Kontakten wird viel, bei anderen wenig Botenstoff freigesetzt. Frühere Aktivität kann die Verfügbarkeit von Vesikeln und den Calciumzustand verändern. Dieses Verhältnis zwischen Eingang und Ausgang prägt die Übertragungseigenschaften einer Synapse. [11] [13]
Der Rezeptor bestimmt den nächsten Verarbeitungsschritt
Gesundheitskapitel
Nach dem Austritt diffundiert der Transmitter durch den schmalen extrazellulären Spalt und bindet an Rezeptoren der Zielzelle. Bei einem ionotropen Rezeptor ist die Bindung unmittelbar mit der Öffnung eines Ionenkanals verknüpft. Dadurch ändert sich die Membranleitfähigkeit. Welche Ionen fließen und in welche Richtung, ergibt sich aus Kanalpermeabilität und den aktuellen elektrochemischen Kräften. [4] [12] [20]
Ein erregender ionotroper Kontakt kann eine erhöhte Leitfähigkeit für mehrere Kationen besitzen. Unter üblichen neuronalen Bedingungen überwiegt bei negativem Membranpotenzial häufig ein depolarisierender Nettoeinwärtsstrom. Dabei können Natrium hinein und Kalium hinaus fließen. Die gemeinsame Wirkung verschiebt das Membranpotenzial in Richtung des Umkehrpotenzials dieses Mischstroms. [12] [20]
Metabotrope Rezeptoren beeinflussen über intrazelluläre Signalketten weitere Proteine. Dazu können Ionenkanäle und Prozesse der Transmitterfreisetzung gehören. Ihre Wirkung ist oft langsamer und zeitlich ausgedehnter als die unmittelbare Kanalöffnung. Die Aktivität einer Zelle kann damit sowohl durch schnelle postsynaptische Ströme als auch durch veränderte Reaktionsbedingungen geprägt werden. [4] [13]
Ein Transmitter kann an mehreren Rezeptortypen wirken. Acetylcholin bindet beispielsweise an nikotinische und muskarinische Rezeptoren, die unterschiedliche Signalwege besitzen. Auch die Zielzelle stellt ihre eigene Kanal- und Proteinausstattung bereit. Die physiologische Wirkung einer Verbindung ergibt sich daher aus Transmitter, Rezeptor und Zielgewebe zusammen. [4] [20]
Rezeptorbindung und Ionenstrom sind zwei aufeinanderfolgende Vorgänge. Der Transmitter bindet an die von außen zugängliche Rezeptorregion. Geladene Teilchen bewegen sich anschließend durch den geöffneten Porenweg oder durch indirekt beeinflusste Kanäle. Die farblich getrennten Botenstoffteilchen und Ionen in der Abbildung machen sichtbar, wie ein chemischer Kontakt eine elektrische Wirkung auslöst. [4] [12] [20]
Erregung und Hemmung beziehen sich auf die weitere Antwort
Ein erregendes postsynaptisches Potenzial, EPSP, erhöht unter den betrachteten Bedingungen die Wahrscheinlichkeit eines nachfolgenden Aktionspotenzials. Ein hemmender Einfluss vermindert diese Wahrscheinlichkeit. Häufig geht Erregung mit Depolarisation und Hemmung mit Hyperpolarisation einher. Die funktionelle Einordnung folgt der Wirkung auf die Impulsauslösung und hängt vom Verhältnis zwischen Ruhewert, Umkehrpotenzial und Schwelle ab. [20]
Öffnet sich beispielsweise eine Chloridleitfähigkeit nahe dem Ruhepotenzial, kann sie zusätzliche erregende Spannungsänderungen abschwächen. Die Membran wird elektrisch leitfähiger und ihr Potenzial stärker an das zugehörige Umkehrpotenzial gebunden. Diese Form der Hemmung wird häufig als Shunting bezeichnet. Sie kann auch dann wirksam sein, wenn die beobachtete Spannungsänderung klein oder leicht depolarisierend ausfällt. [20] [36]
Eine einzige Nervenzelle erhält viele solche Einflüsse an unterschiedlichen Orten. Ein Kontakt nahe dem auslösenden Axonabschnitt kann die Impulsbildung anders beeinflussen als ein entfernter dendritischer Kontakt. Zusätzlich ändern andere gleichzeitig offene Kanäle die elektrische Wirkung. Die lokale Membranantwort wird dadurch in die gesamte räumliche Organisation der Zelle eingebettet. [4] [10] [12] [21]
Zeit und Ort bestimmen die gemeinsame Wirkung
Bei zeitlicher Summation treffen mehrere Antworten desselben oder benachbarter Kontakte in kurzer Folge ein. Die erste Änderung ist noch nicht abgeklungen, wenn eine weitere hinzukommt. Bei räumlicher Summation überlagern sich Einflüsse verschiedener Kontaktorte. Membrankapazität, Widerstand und Leitungswege durch Dendriten und Soma prägen beide Vorgänge. [10] [12]
Ein einfaches Gedankenbeispiel verdeutlicht die Rolle des Zeitabstands: Zwei kleine erregende Eingänge können gemeinsam einen größeren Effekt erzeugen, wenn sie rasch nacheinander auftreten. Liegen sie weit auseinander, kann die Wirkung des ersten bereits weitgehend abgeklungen sein. In einer echten Zelle kommen hemmende Eingänge und veränderliche Membraneigenschaften hinzu. Der Verlauf des gesamten Eingangsmusters entscheidet über die weitere Aktivität. [4] [12] [20]
Präsynaptische Modulation verändert schon die Ausgangsseite einer Verbindung. Ein axoaxonischer Kontakt kann über Rezeptoren und Signalketten den Calciumeinstrom und damit die Transmitterfreisetzung beeinflussen. Die gleiche fortgeleitete Impulsfolge kann dann eine andere postsynaptische Wirkung hervorrufen. Solche Mechanismen ergänzen die Verrechnung unmittelbar an der Zielzelle. [13]
Die Übertragung braucht ein zeitliches Ende
Nach einer Freisetzung wird der Transmitter aus der wirksamen Umgebung entfernt. Je nach Stoff und Synapse tragen Wiederaufnahme in Nervenendigungen, Aufnahme durch Glia, enzymatischer Abbau und Diffusion dazu bei. Diese Wege begrenzen Dauer und räumliche Ausdehnung des Signals. Transport und Stoffwechsel sind damit wesentliche Teile der zeitlichen Präzision. [4] [14] [23]
An der motorischen Endplatte baut Acetylcholinesterase den freigesetzten Botenstoff ab. An vielen glutamatergen Kontakten nehmen unter anderem astrozytäre Transporter Glutamat auf. Verschiedene Transmittersysteme besitzen somit jeweils passende Rückgewinnungs- und Abbauwege. Das postsynaptische Rezeptorsignal und die Verarbeitung des Botenstoffs werden gemeinsam an der Kontaktstelle organisiert. [4] [14] [23]
Parallel wird die präsynaptische Endigung erneut vorbereitet. Calcium wird reguliert, Vesikelbestandteile werden recycelt, und verfügbare Vesikel können in die freisetzungsbereite Gruppe übergehen. Die Synapse erhält so ihre Funktionsfähigkeit über viele aufeinanderfolgende Impulse. Der Zustand dieser Prozesse beeinflusst auch, wie sich die Antwort innerhalb einer längeren Impulsfolge verändert. [11] [13] [29]
Die Wirksamkeit einer Synapse ist veränderlich
Kurzfristige Fazilitation kann auftreten, wenn nach einem ersten Impuls noch Calcium in der Endigung vorhanden ist und ein weiterer Impuls die Freisetzung verstärkt. Kurzfristige Depression kann mit einer geringeren Verfügbarkeit freisetzungsbereiter Vesikel zusammenhängen. Welche Vorgänge dominieren, unterscheidet sich zwischen Synapsen. Der zeitliche Eingang wird dadurch bereits an der einzelnen Kontaktstelle verarbeitet. [13]
Länger anhaltende Veränderungen können Rezeptoren, Signalketten und synaptische Struktur betreffen. Ein gut untersuchtes Beispiel ist die Langzeitpotenzierung in bestimmten glutamatergen Verbindungen des Hippocampus. Dort können NMDA-Rezeptor-abhängige Calciumsignale Anpassungen auslösen, zu denen eine erhöhte postsynaptische AMPA-Rezeptorwirkung gehört. Der experimentelle Zusammenhang beschreibt einen konkreten Mechanismus innerhalb eines bestimmten Netzwerks. [13]
Lernen auf Verhaltensebene umfasst viele Verbindungen und zusätzliche Zellprozesse. Synaptische Plastizität liefert eine wichtige Grundlage dafür, wie Erfahrung die Verarbeitung verändern kann. Stärke, zeitliches Muster und Aktivität anderer Wege beeinflussen die Anpassung. Eine Schaltung bleibt dadurch in ihrer Funktion organisiert und zugleich veränderbar. [13] [21]
Elektrische Synapsen schaffen einen direkten Ionenweg
An einer elektrischen Synapse stehen die Membranen zweier Zellen dicht gegenüber. Passende Kanalhälften beider Membranen bilden Gap junctions. Durch diese verbundenen Poren kann ein Ionenstrom direkt von einem Zellinneren ins andere fließen. Eine Spannungsänderung der einen Zelle beeinflusst so die gekoppelte Zelle mit sehr kurzer Verzögerung. [19]
Je nach Kanaleigenschaften kann die Kopplung in beide Richtungen wirken oder eine Richtung bevorzugen. Die direkte Verbindung unterstützt unter anderem eine zeitlich enge Abstimmung gekoppelter Zellgruppen. Chemische und elektrische Kontakte liefern daher verschiedene Übertragungseigenschaften. Welche Form in einer Grafik gemeint ist, lässt sich an Membrananordnung, Kanalverbindung und vorhandenem Vesikelapparat erkennen. [4] [19]
Die Neuronübersicht ordnet die Synapse in die gesamte Zelle ein. Membran- und Aktionspotenziale erklären, wie Rezeptorströme die elektrische Weiterverarbeitung beeinflussen. Gliazellen ergänzen die Betrachtung um Transmitteraufnahme und lokales Milieu. [2] [4] [23]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- OpenStax: Anatomy and Physiology 2e, 12.2 Nervous Tissue Betts et al., 2022. Parts/Types of a Neuron, Glial Cells und Myelin. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 12.5 Communication Between Neurons Betts et al., 2022. Graded Potentials, Summation, Synapses und Neurotransmitter Release. Abgerufen am 07.11.2026.
- Byrne JH: Propagation of the Action Potential, Neuroscience Online 1.3 McGovern Medical School, UTHealth Houston. Abschnitte 3.1 und 3.2; Revision 17.08.2026. Abgerufen am 07.11.2026.
- Byrne JH: Mechanisms of Neurotransmitter Release, Neuroscience Online 1.5 McGovern Medical School, UTHealth Houston. Abschnitte 5.1 und 5.2; Revision 06.07.2026. Abgerufen am 07.11.2026.
- Byrne JH: Synaptic Transmission in the Central Nervous System, Neuroscience Online 1.6 McGovern Medical School, UTHealth Houston. Abschnitte 6.1–6.6; Revision 06.07.2026. Abgerufen am 07.11.2026.
- Byrne JH: Synaptic Plasticity, Neuroscience Online 1.7 McGovern Medical School, UTHealth Houston. Abschnitte 7.1–7.4; Revision 06.07.2026. Abgerufen am 07.11.2026.
- Waymire JC: Organization of Cell Types, Neuroscience Online 1.8 McGovern Medical School, UTHealth Houston. Abschnitte 8.12–8.18 und Zellorganellenabschnitt; Revision 18.08.2026. Abgerufen am 07.11.2026.
- Purves D et al. (Hrsg.): Neuroscience, 2. Auflage, Electrical Synapses Sinauer Associates, 2001. Abschnitt Electrical Synapses. Abgerufen am 07.11.2026.
- Purves D et al. (Hrsg.): Neuroscience, 2. Auflage, Excitatory and Inhibitory Postsynaptic Potentials Sinauer Associates, 2001. Abschnitt zu EPSP/IPSP und Umkehrpotenzial, Fig.7.6. Abgerufen am 07.11.2026.
- Leterrier C: The Axon Initial Segment: An Updated Viewpoint Journal of Neuroscience 38(9), 2135–2145 (2018). DOI 10.1523/JNEUROSCI.1922-17.2018. Abstract, Introduction und Ion channels at the AIS. Abgerufen am 07.11.2026.
- Verkhratsky A, Nedergaard M: Physiology of Astroglia Physiological Reviews 98(1), 239–389 (2018). DOI 10.1152/physrev.00042.2016. Definition and Overview of Function sowie indexierte Abschnitte zu Ionen-/Transmittermilieu. Abgerufen am 07.11.2026.
- Südhof TC: Neurotransmitter release: the last millisecond in the life of a synaptic vesicle Neuron 80(3), 675–690 (2013). DOI 10.1016/j.neuron.2013.10.022. Abstract und Fig.1/2-Legenden. Abgerufen am 07.11.2026.
- Gerstner W, Kistler WM, Naud R, Paninski L: Neuronal Dynamics, 1.4 Limitations of the Leaky Integrate-and-Fire Model Cambridge University Press2014; institutionelle Onlineausgabe der EPFL. Abschnitt1.4.2: zustandsabhängige postsynaptische Ströme, Umkehrpotenzial und Shunting-Hemmung. Abgerufen am 07.11.2026.