Auf einen Blick
Zum Zytoskelett gehören Aktinfilamente, Mikrotubuli und Intermediärfilamente. Sie unterscheiden sich im Aufbau und in ihrer räumlichen Organisation. Zusammen tragen sie zur Zellform, mechanischen Belastbarkeit, inneren Verteilung und Bewegung bei.
Aktin ist an der Zelloberfläche und in vielen kontraktilen Strukturen besonders wichtig. Mikrotubuli dienen unter anderem als Transportwege und Bestandteile des Teilungsapparats. Intermediärfilamente verbinden mechanisch belastete Bereiche und kommen in unterschiedlichen Proteinvarianten vor. [1][5]
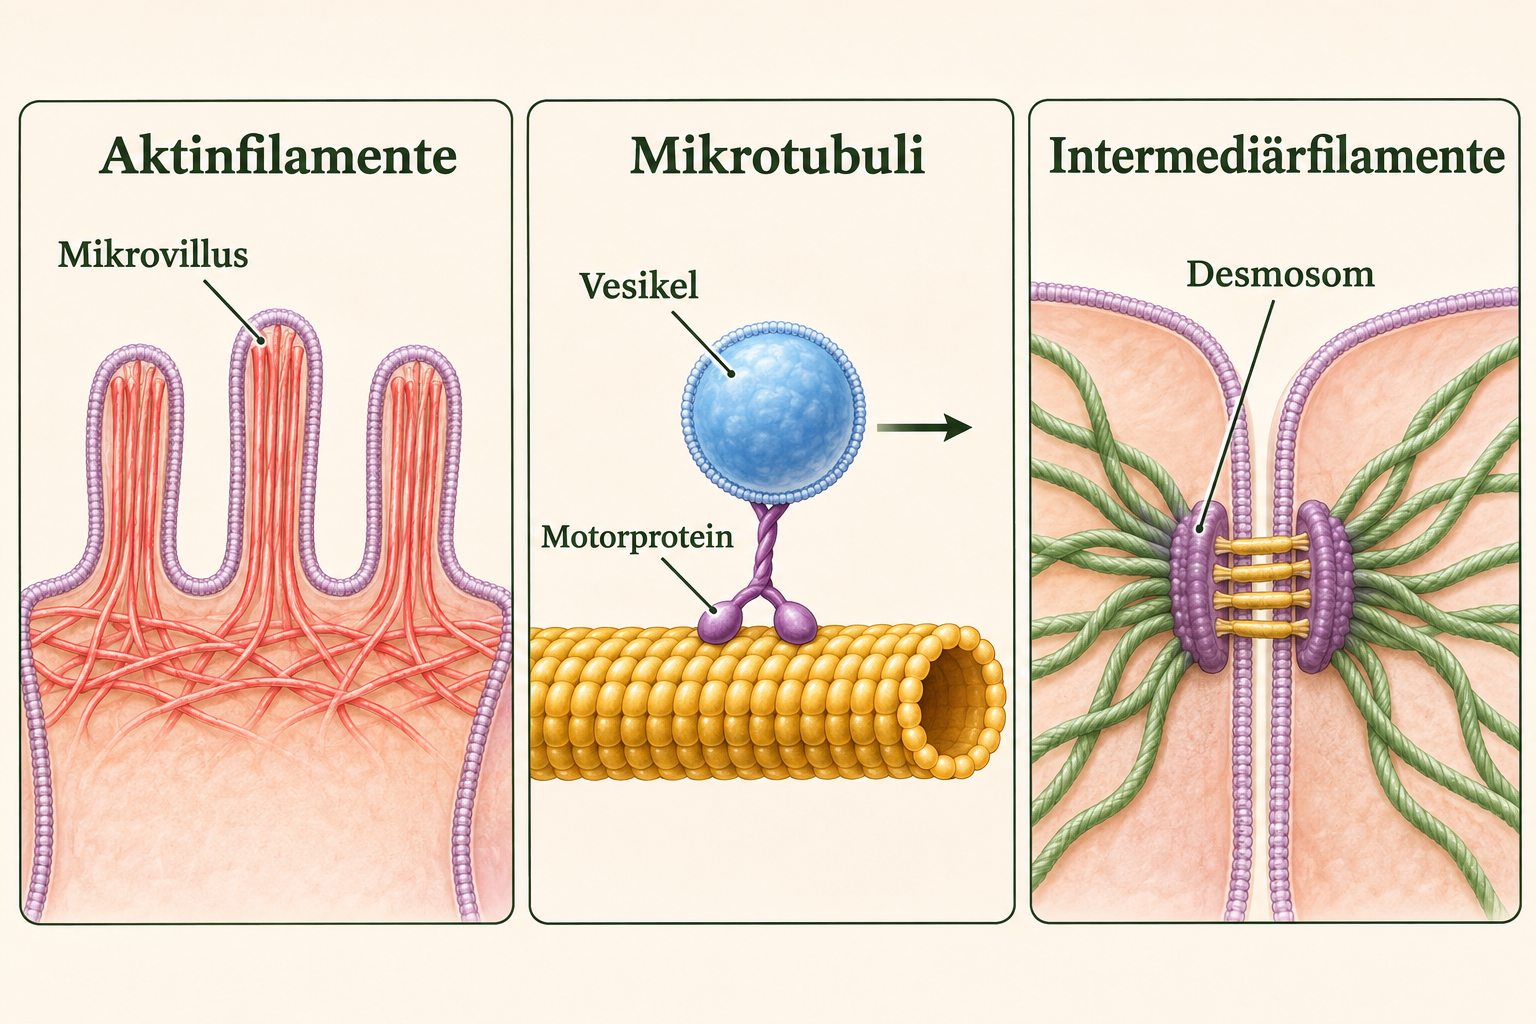
Drei Filamentsysteme im Bild
Gesundheitskapitel
Ein Gerüst, das sich an die Aufgabe anpasst
Im Zellinneren sind viele Bestandteile räumlich geordnet. Der Kern liegt an einem geeigneten Ort, Sekretvesikel müssen ihre Zielmembran erreichen, und eine wandernde Zelle benötigt eine bewegliche Vorderseite. Das Zytoskelett schafft wesentliche Voraussetzungen für diese Organisation.
Seine Filamente werden aus kleineren Proteinbausteinen zusammengesetzt. Je nach Filamenttyp und Situation werden sie verlängert, verkürzt, verbunden oder neu ausgerichtet. Zusätzliche Proteine bündeln Filamente, befestigen sie an Membranen oder koppeln Bewegung an den Verbrauch von Energie. Die konkrete Gestalt eines Zellgerüsts ist somit ein Ergebnis laufender Aufbau- und Umbauprozesse.
Die räumliche Organisation unterscheidet sich zwischen Zelltypen. In einem Epithel besitzt die freie Oberfläche andere Anforderungen als die basale Anheftung. In einer langen Nervenzelle müssen entfernte Bereiche versorgt werden. Bei einer teilenden Zelle wird die Organisation vorübergehend auf die Verteilung des Erbguts und die anschließende Trennung ausgerichtet. [1][3][5]
Aus Proteinbausteinen werden Fäden, Röhren und Seile
Aktin bildet feine helikale Filamente. Verbindungsproteine können sie zu dichten Netzen oder parallel ausgerichteten Bündeln organisieren. Der gleiche Grundbaustein erhält dadurch unterschiedliche räumliche Aufgaben: als dichtes Netzwerk am Zellrand oder als längliches Stützbündel innerhalb eines Mikrovillus. [2]
Mikrotubuli besitzen eine röhrenförmige Wand aus Tubulin. Die wiederholte Anordnung ihrer Bausteine schafft einen langgestreckten, orientierten Weg. An dieser Oberfläche können Motorproteine arbeiten. Im Inneren der Röhre liegt ein Hohlraum; die transportierte Last bewegt sich an der Außenseite des Mikrotubulus. [3][5]
Intermediärfilamente erhalten ihre seilähnliche Organisation durch die Verbindung vieler Proteinanteile. Ihre Benennung umfasst mehrere Proteinfamilien mit unterschiedlichen Einsatzorten. Innerhalb einer Epithelzelle koppelt ein Keratinnetz den inneren Zellraum an Kontaktstellen. An der Kernhülle tragen Lamine zur Organisation eines weiteren mechanischen Grenzbereichs bei. [4][6] [8]
Aktinfilamente stützen den Zellrand
Aktinmoleküle bilden feine Filamente, die häufig in Netzwerken oder Bündeln zusammenarbeiten. Direkt unter der Zellmembran entsteht ein kortikaler Bereich, der die Form der Oberfläche beeinflusst. Hier kann das Aktinnetz Kräfte aufnehmen und örtliche Veränderungen der Zellgestalt unterstützen.
Die Kombination mit anderen Proteinen erweitert diese Möglichkeiten. Myosin kann an Aktin arbeiten und dabei chemische Energie in mechanische Bewegung koppeln. Ein solcher Mechanismus ist für die Muskelarbeit zentral und wird in angepasster Form auch von anderen Zellen genutzt.
Mikrovilli enthalten gebündelte Aktinfilamente. Diese Finger der Zelloberfläche vergrößern beispielsweise am Darm die verfügbare Austauschfläche. Ihre Funktion ergibt sich aus der Verbindung von innerem Stützgerüst und äußerer Membran mit ihren Enzymen und Transportproteinen. Form und molekulare Ausstattung arbeiten dabei zusammen. [2][5]
Mikrotubuli organisieren lange Wege
Mikrotubuli sind röhrenförmige Strukturen aus Tubulinbausteinen. In einer typischen Organisation wachsen sie von bestimmten Organisationszentren aus in den Zellraum. Ihre Anordnung beeinflusst die Lage von Organellen und die Wege für den gerichteten Transport.
Motorproteine können sich entlang geeigneter Mikrotubuli bewegen und dabei Vesikel oder andere Lasten mitführen. Die molekulare Orientierung des Filaments und die Eigenschaften des Motors helfen, die Transportrichtung zu bestimmen. Auf diese Weise erreichen Stoffe auch weiter entfernte Zellbereiche.
Mikrotubuli werden je nach Aufgabe stabilisiert oder rasch umgebaut. Eine Zelle kann damit einen dauerhafteren Weg erhalten und an anderer Stelle gleichzeitig ihre Organisation verändern. An einer langen Nervenzelle wird deutlich, warum ein solcher Transport für die Versorgung ihrer Fortsätze wichtig ist. Die Funktionsfähigkeit eines entfernten Abschnitts hängt auch davon ab, welche Bauteile und Organellen dort ankommen. [3][5]
Intermediärfilamente verteilen mechanische Belastung
Die Gruppe der Intermediärfilamente umfasst verschiedene Proteinfamilien. Keratine sind beispielsweise wichtige Bestandteile epithelialer Zellen. Lamine bilden an der inneren Kernhülle eine besondere Form dieser Organisation. Der jeweilige Zelltyp verwendet die für seine Aufgabe geeignete Ausstattung. [8]
Intermediärfilamente können sich zu belastbaren Netzwerken verbinden. In einem Epithel reichen solche Verbindungen bis an bestimmte Zellkontakte. Dadurch wird ein Zugreiz auf mehrere Bereiche einer Zelle und über geeignete Kontakte auch auf benachbarte Zellen verteilt.
Die mechanische Wirkung entsteht aus dem Zusammenspiel von Filament, verbindenden Proteinen und Anheftungsort. In einem belasteten Epithel kann eine an der Zelloberfläche angreifende Kraft über Kontaktproteine in das innere Filamentnetz weitergeleitet werden. Die Anbindung an weitere Kontakte verbindet diesen örtlichen Zug mit der mechanischen Organisation des Zellverbandes. [4][6]
Zellkontakte verbinden das Zytoskelett mit der Umgebung
Haftkontakte koppeln Filamente an Nachbarzellen oder an die extrazelluläre Matrix. Adhärenskontakte sind dabei mit dem Aktinsystem verbunden. Desmosomen verbinden die Intermediärfilamentsysteme benachbarter Zellen. Hemidesmosomen vermitteln eine entsprechende basale Anheftung an die Unterlage.
Bei mechanischer Beanspruchung greifen diese Bausteine ineinander. Eine Kraft an der Oberfläche wird auf Membranproteine und das innere Filamentnetz übertragen. Im Gewebe entsteht daraus eine räumlich zusammenhängende Kraftübertragung. Die Dichtigkeit einer Grenzschicht und ihr mechanischer Zusammenhalt werden durch unterschiedliche Kontaktstrukturen mitbestimmt.
Im mehrschichtigen Epithel verbinden Desmosomen benachbarte Zellen über mehrere Zelllagen. Basale Epithelzellen sind zusätzlich über Hemidesmosomen an ihre Unterlage gekoppelt. So ergänzen sich seitlicher Zusammenhalt und Verankerung am darunterliegenden Gewebe. [6]
Flimmerhärchen verbinden Filamente mit gerichteter Bewegung
Bewegliche Flimmerhärchen besitzen ein geordnetes mikrotubuläres Innengerüst. Die darin zusammenarbeitenden Strukturen ermöglichen eine abgestimmte Biegung. Viele solcher Härchen können an einer Oberfläche gemeinsam Material weiterbefördern.
In den Atemwegen unterstützt diese Bewegung den Transport einer Schleimschicht in Richtung Rachen. Partikel, die im Schleim festgehalten werden, werden dadurch von der Austauschfläche der Lunge wegbewegt. Das Zytoskelett einer einzelnen Zelle trägt damit zu einer erkennbaren Schutzfunktion des ganzen Organsystems bei.
Mikrovilli und Flimmerhärchen besitzen unterschiedliche innere Gerüste und Aufgaben. Ein Mikrovillus schafft zusätzliche Membranfläche. Ein bewegliches Flimmerhärchen erzeugt eine gerichtete Oberflächenbewegung. Im Darm unterstützt diese Membranfläche die Aufnahme, während in den größeren Atemwegen die abgestimmte Bewegung vieler Zilien den Schleimtransport ermöglicht. [2][5]
Bei der Zellteilung wird das Netzwerk neu organisiert
Vor einer Teilung muss die vervielfältigte genetische Information auf zwei Tochterzellen verteilt werden. Der Spindelapparat organisiert dafür Mikrotubuli zwischen den Teilungspolen und den Chromosomen. An den Chromosomen entstehen spezielle Ansatzstellen für diese Verbindungen.
Während des Ablaufs werden die Chromosomen geordnet, ihre Schwesterchromatiden getrennt und in die entstehenden Zellbereiche bewegt. Dazu müssen Bindung, Richtung und zeitliche Abfolge der Filamentarbeit aufeinander abgestimmt sein. Kontrollmechanismen wirken an dieser geordneten Verteilung mit.
Bei der gegen Ende der Mitose beginnenden Trennung des Zellkörpers spielt ein kontraktiler Ring aus Aktin und zugehörigen Proteinen eine wichtige Rolle. Er verändert die Form des Zellrands, bis zwei Zellbereiche voneinander abgegrenzt werden. Kernteilung und Teilung des Zellkörpers beruhen so auf unterschiedlichen, miteinander abgestimmten Aufgaben des Zytoskeletts. [7]
Wie die drei Filamentsysteme zusammenwirken
In einer einzigen Zelle kann Aktin die Oberfläche gestalten, während Mikrotubuli die Verteilung von Vesikeln unterstützen und Intermediärfilamente mechanische Verbindungen sichern. Die Systeme liegen räumlich nebeneinander und sind über weitere Proteine funktionell verbunden. Ihre Aufgaben werden je nach Situation unterschiedlich gewichtet.
Beim Lesen einer Zellzeichnung lohnt es sich, drei Fragen zu verfolgen: Welche Struktur verändert die Oberfläche? Welche schafft einen Weg durch das Zellinnere? Und welche Verbindung trägt die mechanische Belastung? Damit werden die abstrakten Filamentnamen zu erklärbaren Funktionen.
Auch die gezeigte Situation ist wichtig. Eine ruhende Epithelzelle, eine wandernde Abwehrzelle und eine Zelle während der Teilung benötigen verschiedene Anordnungen. Die Gewichtung von Oberflächenarbeit, innerem Transport und mechanischem Zusammenhalt ändert sich mit diesen Aufgaben. [1][5][6]
Motorproteine setzen gerichteten Transport um
Ein Mikrotubulus besitzt ein Plus- und ein Minusende. Diese Polarität entsteht aus der gleichgerichteten Anordnung seiner Tubulinbausteine. Motorproteine erkennen diese molekulare Orientierung. Viele Kinesine transportieren ihre Last zum Plusende, zytoplasmatisches Dynein zum Minusende. Damit entstehen entlang derselben Struktur unterschiedliche Transportrichtungen.
Bei einem radial vom Zentrosom ausgehenden Netzwerk liegen viele Minusenden nahe dem Zellzentrum und die Plusenden weiter außen. Ein plusendgerichteter Motor kann eine Last dann zur Zellperipherie bringen; Dynein befördert sie in Richtung Zentrum. Die räumliche Wirkung ergibt sich aus der Kombination von Filamentanordnung und Motor. In spezialisierten Zellen wird diese Anordnung an die jeweiligen Transportwege angepasst.
Ein Motor besitzt Bereiche für den Kontakt zum Filament und Bereiche für die Lastbindung. Weitere Proteine können diese Verbindung vermitteln und regulieren. Bindung und Umsetzung von ATP verändern die Form des Motors und koppeln seinen Arbeitszyklus an die Bewegung entlang des Filaments. So wird aus einer molekularen Reaktion ein gerichteter Transport von Vesikeln oder Organellen. [9]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- The Open University: A tour of the cell, 4.2 The cytoskeleton Grundaufbau, dynamische Organisation und drei Filamentgruppen. Onlinekapitel geöffnet am 07.11.2026.
- The Open University: A tour of the cell, Microfilaments Aktin, kortikales Netzwerk, Mikrovilli und beweglicher Zellrand. Onlinekapitel geöffnet am 07.11.2026.
- The Open University: A tour of the cell, Microtubules Tubulin, Hohlröhren, Organelltransport und Spindelorganisation. Onlinekapitel geöffnet am 07.11.2026.
- The Open University: A tour of the cell, Intermediate filaments Intermediate filaments: Proteinvielfalt und seilähnliche Organisation. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 3.2 The Cytoplasm and Cellular Organelles Abschnitt The Cytoskeleton: Filamente, Motorproteine, Zilien und Zellorganisation. Zugriff 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 4.2 Epithelial Tissue Abschnitt Cell to Cell Junctions: Haftkontakte und Kopplung an Aktin/Intermediärfilamente. Zugriff 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 3.5 Cell Growth and Division Mitose und Zytokinese: Spindelapparat und kontraktiler Zellteilungsring. Zugriff 07.11.2026.
- The Open University: A tour of the cell, Nuclear structure and the transport of molecules Nuclear structure and the transport of molecules: Kernlamina, Kernporen und selektiver Transport. Abgerufen am 07.11.2026.
- Ron Vale: Molecular Motor Proteins – iBiology UCSF/HHMI, aufgezeichnet Oktober 2015. Teil 1, 05:51–09:35: Polarität, Kinesine/Dyneine und Lastbindung; Teil 2, 04:43–05:28: Zilien- und zytoplasmatischer Transport. Relevante Transkriptpassagen tatsächlich gelesen, keine vollständige Vortragslektüre behauptet. Abruf: 07.11.2026.