Auf einen Blick
- Furchung erhöht die Zellzahl innerhalb der anfangs umgebenden Zona pellucida.
- Kompaktion und Höhlenbildung organisieren äußere Zelllage und innere Zellmasse.
- Nach dem Hatching verbinden Implantation und frühe Hüllenbildung die Anlage mit dem Endometrium.
Ort und Zeit voneinander unterscheiden
Die Befruchtung findet gewöhnlich im ampullären Abschnitt des Eileiters statt. Anschließend wird der frühe Zellverband durch das Zusammenwirken von Flimmerepithel, Flüssigkeitsbewegung und Tubenmuskulatur zur Gebärmutter transportiert. Die Schleimhaut des Eileiters bildet die unmittelbare Umgebung; die spätere Implantationsfläche liegt im Endometrium der Gebärmutter. [85]
Entwicklungstage werden hier ab der Befruchtung gezählt. Die klinische Schwangerschaftsrechnung beginnt üblicherweise mit dem ersten Tag der letzten Menstruation. Bei einem modellhaften Zyklus beträgt der Abstand zur Befruchtung ungefähr zwei Wochen. Angaben über das Entwicklungsalter und Angaben über Schwangerschaftswochen erhalten dadurch unterschiedliche Bezugspunkte. [55]
Die Samenzelle erwirbt ihre Befruchtungsfähigkeit
Nach der Reifung im männlichen Genitaltrakt folgen weitere funktionelle Veränderungen, die als Kapazitation zusammengefasst werden. Dabei verändern sich Membraneigenschaften und zelluläre Signalwege. Die Samenzelle wird für ein verändertes Bewegungsmuster und die regulierte Abgabe ihres Akrosomeninhalts vorbereitet. Das Akrosom ist eine spezialisierte Struktur am Kopf der Samenzelle. [76]
Die stark geänderte Bewegung des Schwanzes wird als Hyperaktivierung bezeichnet. Ionenkanäle und calciumabhängige Signale beteiligen sich an dieser Antwort. Kapazitation und akrosomale Exozytose beschreiben verschiedene Vorgänge auf dem Weg zur Vereinigung mit der Eizellmembran. Ein großer Teil der detaillierten Grundlagen wurde zunächst an Tieren untersucht; menschliche Samenzellen besitzen artspezifische Eigenschaften. [76]
Aktivierung der Eizelle und Abschluss der Meiose
Die bei der Ovulation freigesetzte sekundäre Oozyte ist von einer extrazellulären Hülle, der Zona pellucida, und außenliegenden Zellen umgeben. Nach dem Zugang zur Eizellmembran und der Vereinigung der Zellmembranen löst der Eintritt der Samenzelle eine Aktivierung der Eizelle aus. Calcium verändert dabei seine Konzentration wiederholt im Zellinneren. [81][85]
Ein wichtiger Auslöser dieser Calciumantwort ist die mit der Samenzelle eingebrachte Phospholipase C zeta. Sie aktiviert eine Signalkette, die Calcium aus intrazellulären Speichern mobilisiert. Die Antwort beteiligt sich am Übergang der Eizelle in die weitere Entwicklung. Die Einzelheiten und die Empfindlichkeit gegenüber den Signalen unterscheiden sich zwischen untersuchten Säugetierarten. [81]
Im Zusammenhang mit der Aktivierung wird die zweite meiotische Teilung abgeschlossen und ein weiterer Polkörper abgegeben. Anschließend entstehen zwei Vorkerne innerhalb derselben Zelle. Einer enthält den mütterlichen, der andere den väterlichen Chromosomensatz. In der mikroskopischen Beschreibung bezeichnet das Vorkernstadium damit eine bereits befruchtete einzelne Zelle mit zwei getrennten Kernräumen. [70]
Was mit den beiden Vorkernen geschieht
Vor der ersten Zellteilung wird die DNA innerhalb der getrennten Vorkerne vorbereitet. Die Vorkerne nähern sich an; beim Übergang in die Mitose werden ihre Kernhüllen abgebaut. Die elterlichen Chromosomen gelangen damit in den Bereich des Teilungsapparats. Diese räumliche Zusammenführung ist ein empfindlicher Schritt der ersten mitotischen Teilung. [82]
In einer Originalarbeit an menschlichen und bovinen Zygoten wurden die Anordnung der elterlichen Genome und ihre Zusammenführung untersucht. Die Beobachtungen zeigen, warum zwei aneinanderliegende Vorkerne und eine bereits laufende Chromosomenverteilung unterschiedliche Stadien darstellen. Ein einfaches Bild zweier Kerne, die sich zu einem großen ruhenden Kern vermischen, lässt diese mitotischen Übergänge aus. [82]
Furchung verteilt den vorhandenen Zellraum
Auf die erste Teilung folgen weitere Furchungsteilungen. Die Tochterzellen heißen Blastomeren. In diesem frühen Abschnitt nimmt die Zahl der Zellen stark zu, während sie innerhalb der umgebenden Zona pellucida jeweils kleiner werden. DNA wird vervielfältigt und verteilt; der gesamte Verband wächst zunächst wesentlich weniger als die Zahl seiner einzelnen Zellen. [79]
Die Zellteilungen laufen beim Menschen zunehmend zeitversetzt. Ein realer Zellverband kann daher vorübergehend Zellzahlen zeigen, die zwischen den vertrauten Lehrstufen zwei, vier und acht liegen. Diese Stufen bieten eine Orientierung für die Reihenfolge. Eine biologische Entwicklung lässt sich anhand der tatsächlich sichtbaren Struktur genauer einordnen als allein anhand einer idealisierten Uhrzeit. [71][74]
Kompaktion: aus einzelnen Kugeln wird ein dichter Verband
Während der Kompaktion vergrößern sich die Kontaktflächen benachbarter Blastomeren. Die äußere Kontur wird geschlossener, und die Grenzen einzelner Zellen sind von außen schwerer zu erkennen. In menschlichen Zeitrafferuntersuchungen begann dieser Vorgang häufig um das Achtzellstadium oder später; sein Beginn variierte zwischen Embryonen. [74]
An der Formänderung wirken Zellkontakte und die mechanischen Eigenschaften der Zelloberflächen zusammen. In einer neueren Originalarbeit wurden Oberflächenspannungen an für Forschung gespendeten menschlichen Embryonen gemessen. Die Ergebnisse zeigten einen wesentlichen Beitrag erhöhter Kontraktilität an den zum Medium gerichteten Zellflächen. Kompaktion ist damit eine aktive, mechanisch organisierte Umformung. [75]
Der kompakte Verband wird als Morula bezeichnet. Mit den veränderten Kontakten entstehen äußere Zellen mit freier Oberfläche und innere Zellen ohne direkten Zugang nach außen. Diese räumlich unterschiedlichen Bedingungen sind ein Teil der frühen Zellorganisation. Die äußeren Zellbereiche entwickeln eine zunehmende apikobasale Polarität. [77][79]
Gesundheitskapitel
Blastozyste: Höhle, äußere Zelllage und Embryoblast
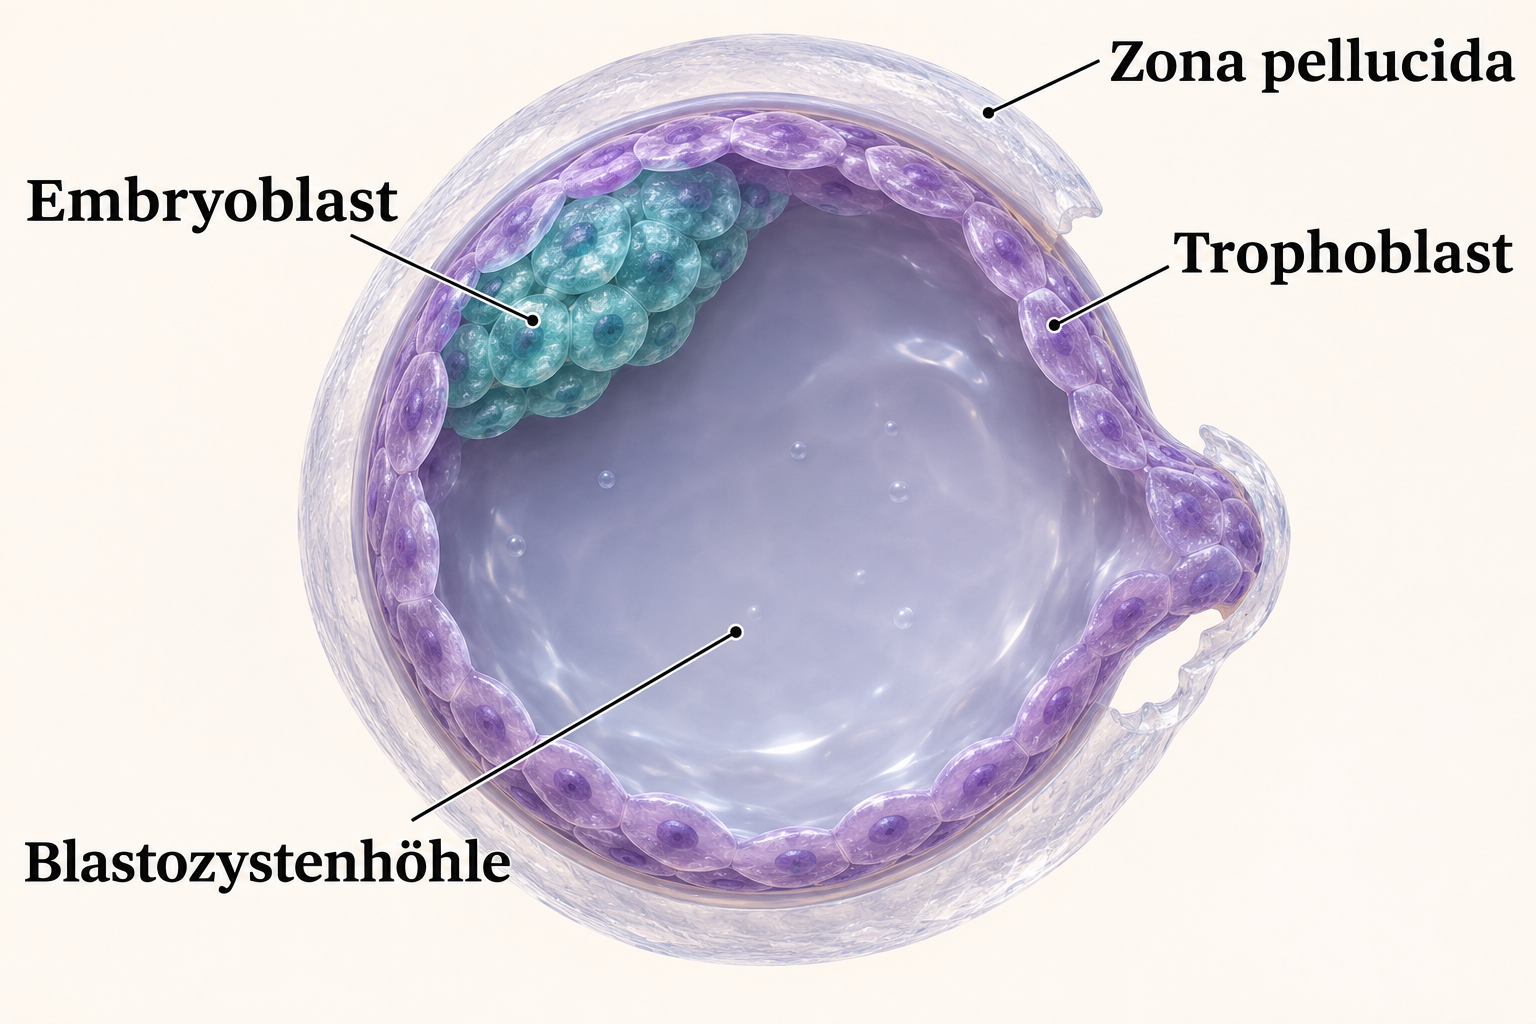
Mit der Ausbildung eines größeren flüssigkeitsgefüllten Raums entsteht die Blastozyste. Außen liegt das Trophektoderm, in frühen Lehrdarstellungen auch Trophoblast genannt. Innen befindet sich an einem Pol die innere Zellmasse, der Embryoblast. Die Blastozystenhöhle nimmt einen großen Teil des Innenraums ein. Die innere Zellmasse ist an einem Pol mit der äußeren Zellschicht verbunden. [71]
Die äußere Zelllage bildet einen epithelialen Zusammenhang, der die Ausbildung des Innenraums unterstützt. Menschliche Untersuchungen zur Zellpolarität zeigen, wie molekulare Signale und die Verteilung von Oberflächenstrukturen mit der Ausbildung dieser äußeren Zellidentität zusammenhängen. Die frühe Unterscheidung von außen und innen wird so zu einer Grundlage unterschiedlicher Entwicklungswege. [77]
Schlüpfen und Kontakt zur Gebärmutterschleimhaut
Schon vor der Ausbildung eines vollständigen plazentaren Gefäßsystems erhält die frühe Anlage Stoffe aus ihrer Umgebung. Sekrete der Gebärmutterschleimhaut und ihrer Drüsen beteiligen sich an dieser histiotrophen Ernährung. Der Begriff beschreibt einen frühen Stoffweg aus mütterlichem Gewebe und Sekret zur Anlage. Mit der weiteren Plazentaentwicklung kommen andere Austauschbeziehungen hinzu. [71]
Die Blastozyste verlässt ihre umgebende Zona pellucida beim sogenannten Hatching. Erst die freigelegte äußere Zelloberfläche kann unmittelbar mit der Gebärmutterschleimhaut in Kontakt treten. Dieser Übergang liegt gewöhnlich am Ende der ersten Entwicklungswoche. Die Zeitangabe beschreibt einen ungefähren Verlauf mit biologischer Variation. [71][72]
Die Anlagerung beginnt typischerweise am embryonalen Pol, also an der Seite der inneren Zellmasse. Es folgen engere Verbindung mit dem Oberflächenepithel und das Eindringen in das darunterliegende Stroma. Die Implantation verändert damit sowohl den Zellverband als auch seine unmittelbare mütterliche Umgebung. Umgebende Endometriumzellen beteiligen sich an der Ausbildung der Dezidua. [72][79]
Zwei trophoblastäre Gewebeformen
Während der Einnistung werden Cytotrophoblast und Syncytiotrophoblast unterscheidbar. Der Cytotrophoblast besteht aus einzelnen Zellen mit erkennbaren Zellgrenzen und mitotischer Teilungsfähigkeit. Der weiter außen gelegene Syncytiotrophoblast bildet ein mehrkerniges zytoplasmatisches Kontinuum. Er dringt in die mütterliche Schleimhaut ein und steht an der frühen Kontaktfläche zum Endometrium. [73][78]
Im Syncytiotrophoblasten entstehen Hohlräume, die Lakunen. Mit der Entwicklung ihrer Beziehungen zu mütterlichen Geweben entsteht die frühe Austauschregion. Zugleich bilden trophoblastäre Gewebe hCG. Dieses Hormon unterstützt in der frühen Schwangerschaft den Gelbkörper und damit dessen Progesteronbildung; Progesteron trägt zum Erhalt des entsprechend umgebauten Endometriums bei. [78][80]
Die zweischichtige Keimscheibe
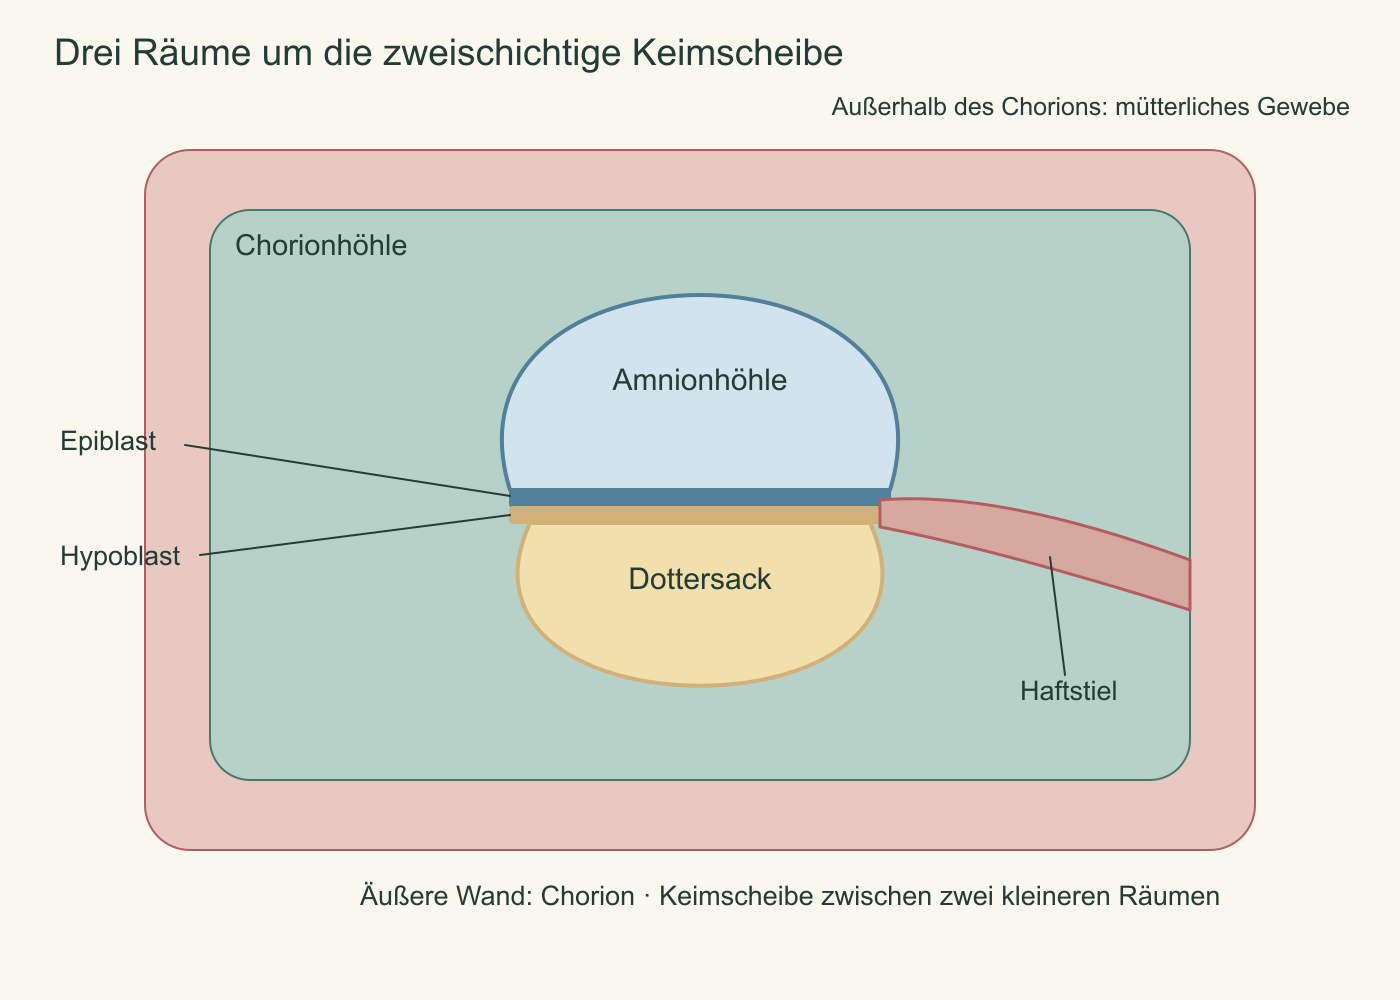
Aus der inneren Zellmasse werden Epiblast und Hypoblast unterscheidbar. Sie bilden die zweischichtige Keimscheibe. Der Epiblast liegt zur entstehenden Amnionhöhle, der Hypoblast zum frühen Dottersackraum. Diese Bezeichnungen gehören zu einem Stadium vor der Ausbildung der drei definitiven Keimblätter. [73][78]
Auf der Epiblastseite entsteht ein kleiner abgeschlossener Amnionraum; zu seiner Auskleidung gehören Amnioblasten. Hypoblastabgeleitete Zellen beteiligen sich an der Auskleidung des primären und später umgebauten Dottersacks. Der menschliche Dottersack übernimmt wichtige frühe Funktionen an Stoffaustausch und Entwicklung. [78]
Gesundheitskapitel
Drei Räume um eine kleine Scheibe
Die räumliche Trennung hat eine wichtige Konsequenz für das Lesen von Abbildungen: Ein Hohlraum innerhalb einer Hülle gehört zu einer anderen Ebene als ein Hohlraum zwischen mehreren Hüllen. Die Amnionhöhle grenzt an den Epiblasten. Der Dottersack liegt auf der Gegenseite der Keimscheibe. Die spätere große Chorionhöhle umgibt beide und reicht damit außerhalb ihrer eigenen Wände. [73][80]
Auch trophoblastäre Lakunen sind gesondert einzuordnen. Sie liegen im äußeren trophoblastären Gewebe und stehen in Beziehung zur mütterlichen Austauschregion. Ihr Inhalt gehört daher zu einem anderen Kompartiment als die Flüssigkeit im Amnionraum oder Dottersack. Eine gut lesbare Schnittzeichnung verwendet für diese Räume getrennte Flächen und verfolgbare Begrenzungen. [78][80]
Später in der zweiten Woche lassen sich Amnionhöhle, Dottersack und Chorionhöhle räumlich unterscheiden. Die Chorionhöhle liegt außerhalb der beiden kleineren Hüllenräume. In ihr befinden sich Keimscheibe und ihre angrenzenden Strukturen; ein Haftstiel stellt die Verbindung zur äußeren Wand her. Das Chorion umfasst trophoblastäre und zugehörige extraembryonale Gewebe. [73][80]
Diese Anordnung liefert eine Orientierung für den Übergang zur dritten Woche. Aus Epiblastzellen entstehen während der Gastrulation die drei definitiven Keimblätter. Die zuvor kleine zweischichtige Scheibe wird damit in eine neue räumliche Organisation überführt. Die frühe Entwicklung lässt sich als Abfolge nachvollziehen: Zellteilung, Verdichtung, Bildung eines Innenraums, Einnistung und anschließende Neuordnung von Geweben und Hüllen. [79][80]
Zellgruppen und ihre benachbarten Räume
| Bereich | Aufbau und Funktion |
|---|---|
| Blastozyste | Äußeres Trophektoderm begrenzt die Höhle; der Embryoblast sitzt innen an einem Pol. [71] |
| Amnionseite | Der Epiblast liegt am Boden der entstehenden Amnionhöhle. [73] [78] |
| Dottersackseite | Der Hypoblast begrenzt die Gegenseite der frühen Keimscheibe zum Dottersack. [73] [78] |
| Äußerer Raum | Die Chorionhöhle umgibt die kleineren Hüllenräume; der Haftstiel verbindet die Anlage mit der äußeren Wand. [73] [80] |
Begriffe zum Weiterlesen
- Zygote
- Einzelne befruchtete Zelle vor ihrer ersten Furchungsteilung. [70] [82]
- Blastomere
- Eine aus den frühen Furchungsteilungen hervorgegangene Tochterzelle. [79]
- Kompaktion
- Verdichtung des Zellverbands durch veränderte Kontaktflächen und Oberflächenmechanik. [74] [75]
- Embryoblast
- An einem Pol innenliegende Zellmasse der Blastozyste. [71]
- Epiblast
- Zur Amnionhöhle gerichtete Schicht der frühen zweiblättrigen Keimscheibe. [73] [78]
- Hypoblast
- Zum frühen Dottersack gerichtete Schicht der zweiblättrigen Keimscheibe. [73] [78]
Häufige Fragen
Wo liegt die innere Zellmasse der Blastozyste?
Der Embryoblast liegt innen an einem Pol der äußeren Zelllage. Die große Blastozystenhöhle befindet sich daneben innerhalb der Hülle. Diese polständige Organisation hilft, den späteren Kontakt zur Gebärmutterschleimhaut zu verstehen. [71] [72]
Wie unterscheidet sich Entwicklungsalter von Schwangerschaftswochen?
Entwicklungstage werden vom Zeitpunkt der Befruchtung an gezählt. Die klinische Schwangerschaftsrechnung beginnt gewöhnlich am ersten Tag der letzten Menstruation. Bei einem modellhaften Zyklus liegen zwischen beiden Ausgangspunkten ungefähr zwei Wochen. [55]
Im Gesundheitswissen weiterlesen
Quellen und Weiterlesen
- Naturheilpraxis Heute: frühe Entwicklung (Teilabschnitt 27.2.1) Bierbach (Hrsg.), Naturheilpraxis Heute, 7. Auflage, Elsevier 2024, Abschnitt 27.2.1: Physiologischer Verlauf, Beginn Entwicklung des Kindes im 1. Trimenon; gelesener Teilabschnitt. Abgerufen am 07.11.2026.
- UNSW: Carnegie stage 1 Hill, UNSW Embryology, aktuelle Lehrfassung. Abgerufen am 07.11.2026.
- UNSW: Carnegie stage 3 Hill, UNSW Embryology. Abgerufen am 07.11.2026.
- UNSW: Carnegie stage 4 Hill, UNSW Embryology. Abgerufen am 07.11.2026.
- UNSW: Carnegie stage 5 Hill, UNSW Embryology. Abgerufen am 07.11.2026.
- Iwata et al.: Analysis of compaction initiation in human embryos Journal of Assisted Reproduction and Genetics 31, 421–426, 2014. DOI 10.1007/s 10815-014-0195-2. Abgerufen am 07.11.2026.
- Firmin et al.: Mechanics of human embryo compaction Nature 629, 646–651, 2024. DOI 10.1038/s 41586-024-07351-x. Abgerufen am 07.11.2026.
- Puga-Molina et al.: Molecular Basis of Human Sperm Capacitation Frontiers in Cell and Developmental Biology 6, 72, 2018. DOI 10.3389/fcell.2018.00072. Abgerufen am 07.11.2026.
- Zhu et al.: Human embryo polarization requires PLC signaling eLife 10, e 65068, 2021. DOI 10.7554/eLife.65068. Abgerufen am 07.11.2026.
- Texas Tech: Second Week, Days 8–14 Thomas R. Gest, Texas Tech, Lehrseite, 2015. Abgerufen am 07.11.2026.
- University of Leeds: Early embryonic development Histology Guide. Abgerufen am 07.11.2026.
- Embryology, Week 2–3 Rehman, Muzio. StatPearls, 01.05.2023. Abgerufen am 07.11.2026.
- Swann: Sperm-Induced Ca2+ Release in Mammalian Eggs Cells 12, 2809, 2023. DOI 10.3390/cells 12242809. Abgerufen am 07.11.2026.
- Cavazza et al.: Parental genome unification is highly error-prone in mammalian embryos Cell 184, 2860–2877.e 22, 2021. DOI 10.1016/j.cell.2021.04.013. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Eierstöcke und Eileiter Bierbach (Hrsg.), Naturheilpraxis Heute, 7. Auflage, Elsevier 2024, Abschnitt 17.3.2. Abgerufen am 07.11.2026.