Auf einen Blick
- Lipoproteine und Albumin tragen verschiedene chemische Formen von Fettfracht.
- Langkettige Acylgruppen erreichen die Matrix über Carnitintransfer und den Austausch an der inneren Membran.
- Speicherung, Mobilisierung und Oxidation werden gewebespezifisch auf den jeweiligen Bedarf abgestimmt.
Mehrere Stoffgruppen mit verschiedenen Aufgaben
Triglyceride bestehen aus Glycerol, an das drei Fettsäuren gebunden sind. Sie bilden den wesentlichen Speicherstoff in weißen Fettzellen. Phospholipide besitzen dagegen einen wasserliebenden und einen wasserabweisenden Anteil; diese Anordnung ist für die Bildung biologischer Membranen entscheidend. Cholesterin ergänzt Membraneigenschaften und dient als Ausgangsstoff für Steroidhormone sowie Gallensäuren. [3]
Fettsäuren unterscheiden sich in Kettenlänge und Doppelbindungen. Gesättigte Ketten besitzen keine Kohlenstoff-Kohlenstoff-Doppelbindung, einfach oder mehrfach ungesättigte entsprechend eine oder mehrere. Auch die räumliche Anordnung an einer Doppelbindung verändert die Molekülgestalt. Solche Unterschiede beeinflussen Eigenschaften und Verarbeitung der jeweiligen Lipide. [3][15]
Linolsäure und α-Linolensäure gehören zu den essenziellen Fettsäuren. Der Mensch kann ihre benötigten Ausgangsstrukturen nicht ausreichend selbst herstellen. Aus α-Linolensäure kann ein begrenzter Anteil zu längerkettigen Omega-3-Verbindungen weiterverarbeitet werden. Für die Stoffwechselübersicht sind daher Ausgangsstoffe und mögliche Umwandlungen einzeln zu betrachten. [15]
Im Dünndarm entstehen aufnehmbare Bausteine
Gallensäuren unterstützen im Darmlumen die Verteilung von Fettbestandteilen. Verdauungsenzyme spalten Triglyceride überwiegend zu freien Fettsäuren und Monoacylglycerolen. Die Produkte werden zusammen mit weiteren Lipiden in transportfähige Anordnungen im Darminhalt aufgenommen und erreichen die Epitheloberfläche. Die anschließende Aufnahme führt in die Enterozyten. [3][27]
Enterozyten bauen aus vielen aufgenommenen langkettigen Fettbausteinen wieder Triglyceride auf. Gemeinsam mit weiteren Lipiden und Proteinen entstehen Chylomikronen. Diese großen Transportpartikel gelangen zunächst in die Lymphgefäße der Darmzotten und später über große Lymphwege in die venöse Blutbahn. Damit erreichen sie zunächst den Körperkreislauf. [3][27]
Wasserlöslichere kurzkettige und viele mittelkettige Fettsäuren können stärker über das Pfortaderblut weitergeleitet werden. Die Kettenlänge beeinflusst somit schon im Darm den Transportweg. Eine Darstellung der Fettaufnahme benötigt deshalb sowohl die Verarbeitung in der Epithelzelle als auch den anschließenden Anschluss an Lymphe beziehungsweise Blut. [3]
Lipoproteine tragen wasserarme Ladung
Lipoproteine besitzen einen hydrophoben Kern mit Triglyceriden und Cholesterinestern. An der Oberfläche liegen unter anderem Phospholipide, freies Cholesterin und Apolipoproteine. Diese Hülle ermöglicht den Transport im wässrigen Plasma. Apolipoproteine dienen außerdem als Strukturelemente und als Erkennungs- oder Regulationspartner für Enzyme und Rezeptoren. [3][27]
Die Lipoproteinlipase wirkt an der Blutseite geeigneter Kapillaren auf Triglyceride in Chylomikronen und VLDL. Frei werdende Fettsäuren können in benachbarte Muskel- oder Fettzellen aufgenommen werden. Nach der Abgabe von Fracht verändern sich Größe und Zusammensetzung der Partikel. Chylomikronreste werden überwiegend durch die Leber aufgenommen. [27]
Die Leber bildet VLDL zur Abgabe eigener Lipidfracht. Aus deren weiterem Umbau können über Zwischenstufen LDL entstehen. HDL beteiligt sich an der Aufnahme und Weiterleitung von Cholesterin aus Geweben. Diese Partikelklassen gehören zu einem Austauschsystem, in dem Herkunft, Ladung und Zielerkennung zusammenwirken. [3][27]
Albumin vermittelt einen anderen Transportstrom
Beim Abbau von Triglyceriden in Fettzellen entstehen unveresterte Fettsäuren. Ein großer Anteil bindet im Plasma an Albumin. Dieser Weg ermöglicht den Austausch zwischen Fettgewebe und verbrauchenden Organen, besonders wenn die Nährstoffzufuhr aus dem Darm geringer wird. Die Fettsäuren können in Zellen oxidiert oder erneut in Lipide eingebaut werden. [3]
Lipoproteine und Albumin tragen daher verschiedene Formen von Fettfracht: In den Partikeln liegen viele Fettsäuren chemisch verestert in Triglyceriden, während Albumin unveresterte Moleküle reversibel bindet. Die vor Ort beteiligten Enzyme bestimmen, wie diese Fracht verfügbar wird. Ein Blutgefäß enthält somit mehrere parallel laufende Transportformen. [3][27]
Weiße und braune Fettzellen
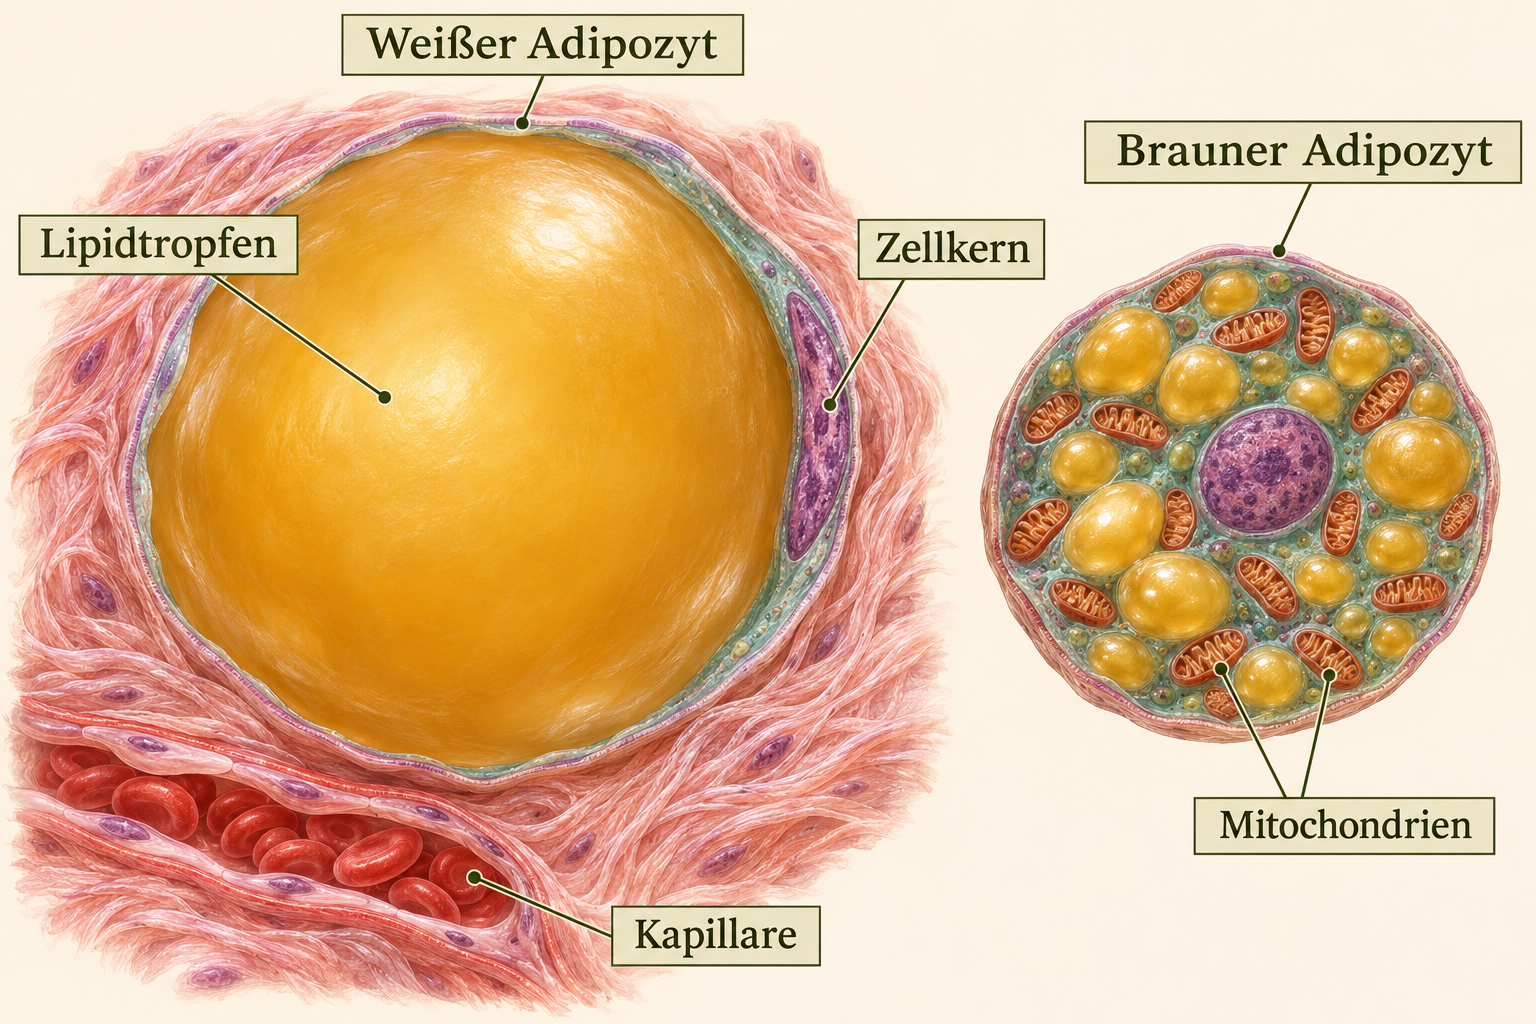
Eine weiße Fettzelle enthält typischerweise einen großen Lipidtropfen. Der Zellkern und ein schmaler Saum aus Zytoplasma liegen randständig. Die gespeicherten Triglyceride können fortlaufend ergänzt und mobilisiert werden. Das umgebende Bindegewebe und seine Kapillaren verbinden die einzelnen Zellen mit dem Stoffaustausch des Körpers. [3][26]
Braune Fettzellen besitzen mehrere kleinere Lipidtropfen und viele Mitochondrien. Ihr Aufbau passt zu einer spezialisierten Wärmebildung. Weißes Fettgewebe übernimmt außerdem polsternde und hormonelle Aufgaben; seine Verteilung ist je nach Körperregion verschieden. Eine Zellabbildung kann die unterschiedlichen Speicherformen sichtbar machen, während das Organ Fettgewebe zusätzlich aus Gefäßen, Nerven und weiteren Zellen besteht. [3][26]
Lipolyse und erneuter Aufbau werden abgestimmt
Mehrere Lipasen spalten gespeicherte Triglyceride schrittweise. Neben Fettsäuren wird schließlich Glycerol frei. Beide Produkte können die Zelle verlassen und in anderen Organen weiterverarbeitet werden. Die Geschwindigkeit des Umsatzes hängt unter anderem von Insulinsignal, Katecholaminen, lokalem Bedarf und Enzymausstattung ab. Gleichzeitig kann ein Teil der Fettsäuren erneut verestert werden. [3]
Glucagon fördert vor allem in der Leber die Bereitstellung und Verarbeitung von Energieträgern. Die direkte Wirkung auf menschliches Fettgewebe ist stärker vom untersuchten System abhängig: Eine kontrollierte menschliche Studie fand bei physiologischer Glucagonsteigerung keinen akuten Anstieg der lokalen Lipolyse im untersuchten Unterhautfett. Für die Regulation der Fettzelle sind deshalb die tatsächlich wirksamen Signale einzeln zuzuordnen. [24][25]
Gesundheitskapitel
Aktivierung und Carnitinweg
Vor vielen weiteren Reaktionen wird eine Fettsäure zu Acyl-CoA aktiviert. Dabei wird ATP bis zu AMP und Pyrophosphat umgesetzt. Die Aktivierung schafft eine reaktionsfähige Verbindung und kostet chemische Energie. Der folgende Weg hängt von Kettenlänge und Kompartiment ab. Lange Acylgruppen benötigen für den Eintritt in die Matrix einen besonderen Transportverbund. [3][19]
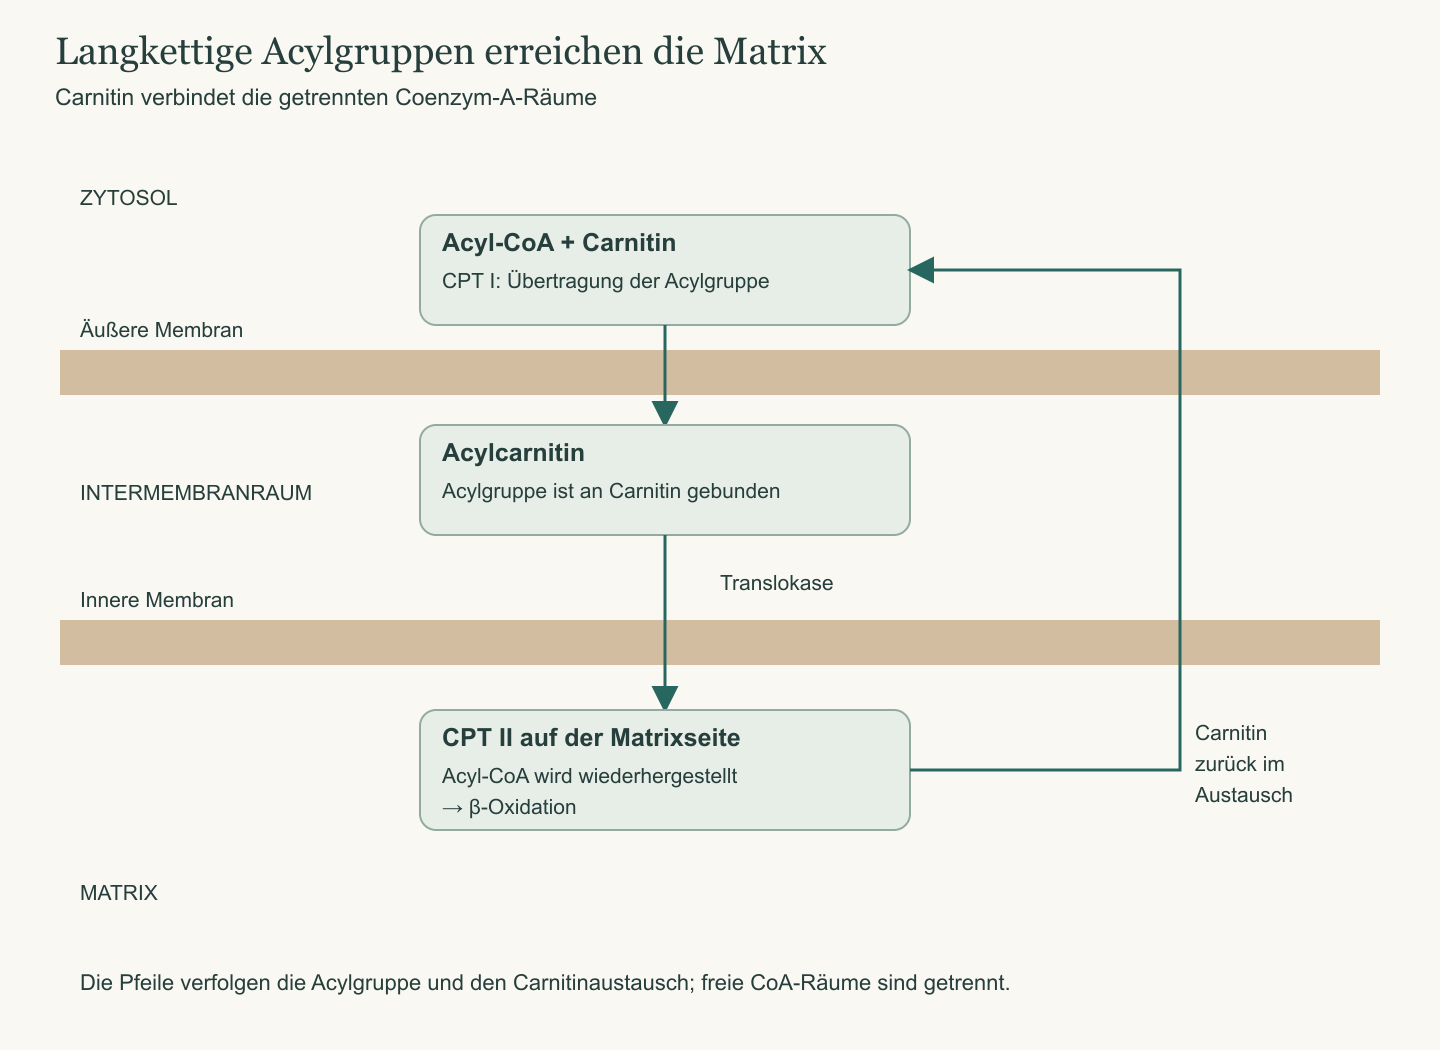
Die Carnitinpalmitoyltransferase I befindet sich an der äußeren Mitochondrienmembran und überträgt eine langkettige Acylgruppe auf Carnitin. Acylcarnitin gelangt über eine Translokase durch die innere Membran. Auf deren Matrixseite überträgt die Carnitinpalmitoyltransferase II die Gruppe zurück auf Coenzym A. Carnitin wird über den Austauschweg erneut verfügbar. Transportiert wird so die Acylgruppe zwischen getrennten CoA-Räumen. [19]
Vier Reaktionen verkürzen eine Kette
Die β-Oxidation umfasst wiederholte Schritte aus Oxidation, Wasseranlagerung, erneuter Oxidation und thiolytischer Spaltung. Bei einer normalen Abbaurunde entstehen ein Acetyl-CoA und eine um zwei Kohlenstoffatome verkürzte Acyl-CoA-Kette. Die Elektronen werden über NADH beziehungsweise ein enzymgebundenes FAD-System weitergeleitet. [3][11]
In der letzten Runde einer geradzahligen Kette entstehen aus dem verbleibenden Vierkohlenstoffstück zwei Acetyl-CoA. Ungeradzahlige Ketten hinterlassen am Ende zusätzlich einen Dreikohlenstoffrest, der über weitere Reaktionen als Succinyl-CoA in andere Wege eingehen kann. Ungesättigte und sehr lange Ketten erfordern ebenfalls zusätzliche oder anders räumlich verteilte Verarbeitungsschritte. [3][11][19]
Sehr langkettige Fettsäuren können zunächst in Peroxisomen verkürzt werden. Ihre ersten Oxidationsschritte sind anders an die Energieübertragung gekoppelt als die entsprechenden mitochondrialen Reaktionen. Ein Teil der Produkte kann anschließend mitochondrial weiterverarbeitet werden. Der Begriff Fettsäureabbau umfasst daher mehrere miteinander verbundene Zellräume. [19]
Gesundheitskapitel
Acetyl-CoA wird weiterverwendet
Acetyl-CoA kann in den Citratzyklus eingehen und reduzierte Elektronenträger für die Atmungskette liefern. Andere Reaktionsbedingungen fördern in der Leber die Bildung von Ketonkörpern. Acetoacetat und β-Hydroxybutyrat werden an andere Organe abgegeben und dort als Brennstoffe weiterverarbeitet. Der Bluttransport verbindet die hepatische Bildung mit der extrahepatischen Nutzung. [3][10][35]
Bei einem stark entgleisten Insulinmangel kann die Ketonkörperproduktion überschießen und zusammen mit weiteren Stoffwechselveränderungen eine diabetische Ketoazidose auslösen. Deren Azidose ist Ausdruck der Erkrankungsregulation. Eine erhöhte Ketonkörperbildung erhält ihre Bedeutung daher durch den Zusammenhang aus Hormonsituation, Blutchemie und Organfunktion. [35]
Fettsäuresynthese benötigt andere Bedingungen
Beim Aufbau von Fettsäuren werden kleine Kohlenstoffeinheiten unter Verbrauch von Energie und reduzierenden Äquivalenten zusammengefügt. In der Leber können geeignete Ausgangsstoffe aus dem Kohlenhydratstoffwechsel stammen. Citrat vermittelt eine Verbindung zwischen mitochondrialem Kohlenstoff und zytosolischer Verarbeitung; NADPH stellt Reduktionskraft für Aufbauvorgänge bereit. [3][22]
Aufbau und Abbau sind über Enzyme und Signale aufeinander abgestimmt. Die Verteilung der Stoffe auf Kompartimente unterstützt diese Organisation. Die spätere Veresterung zu Triglyceriden ermöglicht Speicherung oder Lipoproteintransport. So bestehen zwischen Darm, Leber und Fettgewebe mehrere Wege zum selben chemischen Speicherstoff. [3]
Eine Mahlzeit und ihre spätere Mobilisierung
Nach einer Mahlzeit transportieren Chylomikronen viele langkettige Nahrungsfette über Lymphe und Blut. Kapillaren liefern Fettsäuren an geeignete Zielgewebe, die Leber übernimmt Partikelreste und organisiert weitere Stoffflüsse. Stunden später kann ein Teil der gespeicherten Triglyceride wieder mobilisiert und als albumingebundene Fettsäure verteilt werden. [3][27]
Was schließlich oxidiert wird, hängt vom gesamten Bedarf und der Ausstattung der Zellen ab. Die Fettsäurekette, ihr Transport, ihre Aktivierung und ihre Verarbeitung müssen zusammenpassen. Darum lässt sich der Fettstoffwechsel besonders gut entlang dreier Fragen verfolgen: In welcher chemischen Form liegt die Fracht vor, durch welchen Körperraum bewegt sie sich und welches Enzymsystem übernimmt den nächsten Schritt? [3][11][19]
Fettfracht und ihre Transportformen
| Weg oder Struktur | Funktion und Zusammenhang |
|---|---|
| Chylomikronen | Darmstämmige Lipoproteine transportieren insbesondere Nahrungs-Triacylglycerine über Lymphe und Blut. [3][27] |
| VLDL | Leberstämmige Lipoproteine verteilen körpereigene Triacylglycerine. [27] |
| Albumin | Bindet nicht veresterte Fettsäuren im Blut und vermittelt ihre Verteilung. [19][27] |
| Carnitinweg | Überträgt langkettige Acylgruppen über die innere Mitochondrienmembran: CPT I, Translokase und CPT II übernehmen verschiedene Schritte. [19] |
| Ketonkörper | Wasserlösliche, in der Leber gebildete Energieträger; extrahepatische Gewebe können sie wieder in Acetyl-CoA überführen. [35] |
Wichtige Begriffe
- Acylgruppe
- Von einer Carbonsäure abgeleitete Gruppe; Fettsäure-Acylgruppen werden unter anderem an CoA oder Carnitin gebunden transportiert. [19]
- Lipoproteinlipase
- Enzym an Kapillaren bestimmter Gewebe, das Triacylglycerine aus zirkulierenden Lipoproteinen spaltet. [27]
- β-Oxidation
- Wiederkehrende Reaktionsfolge zur schrittweisen Verkürzung von Fettsäure-Acylketten. [11]
- UCP1
- Protein der inneren Mitochondrienmembran brauner Fettzellen, das Protonenrückstrom zur Wärmebildung ermöglicht. [19][26]
Häufige Fragen
Wie erreichen langkettige Fettsäuren die Matrix?
Nach Aktivierung trägt CoA die Acylgruppe zunächst außerhalb der Matrix. CPT I überträgt sie auf Carnitin; eine Translokase vermittelt den Membranübertritt. CPT II stellt auf der Matrixseite Acyl-CoA her, während Carnitin für den Rücktransport bereitsteht. [19]
Diese Zusammenhänge vertiefen
Im Gesundheitswissen weiterlesen
Quellen und Weiterlesen
- Naturheilpraxis Heute: Fette und Fettstoffwechsel Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.3. Abgerufen am 07.11.2026.
- Reactome: Citric acid cycle Homo sapiens, DOI 10.3180/R-HSA-71403.5; Review 15.02.2024. Abgerufen am 07.11.2026.
- Reactome: Mitochondrial Fatty Acid Beta-Oxidation Homo sapiens, kuratierter Stoffwechselweg. Abgerufen am 07.11.2026.
- NIH ODS: Omega-3 Fatty Acids Health Professional Fact Sheet, National Institutes of Health. Abgerufen am 07.11.2026.
- Talley/Mohiuddin: Biochemistry,Fatty Acid Oxidation StatPearls, aktualisiert16.01.2023. Abgerufen am 07.11.2026.
- Reactome: Pentose phosphate pathway Homo sapiens, DOI 10.3180/REACT_1859.1. Abgerufen am 07.11.2026.
- Gravholt et al.: Physiological levels of glucagon do not influence lipolysis in abdominal adipose tissue as assessed by microdialysis JCEM2001;86:2085–2089. DOI 10.1210/jcem.86.5.7460. Abgerufen am 07.11.2026.
- Direct effects of glucagon on glucose uptake and lipolysis in human adipocytes Originalarbeit zu menschlichem Fettgewebe und isolierten Adipozyten. Zeitschriftenveröffentlichung 2020; online vorab 2019. Abgerufen am 07.11.2026.
- University of Leeds: Adipocytes The Histology Guide, institutionelleLehre. Abgerufen am 07.11.2026.
- Feingold: Introduction to Lipids and Lipoproteins Endotext, aktualisiert14.01.2024. Abgerufen am 07.11.2026.
- Biochemistry,Ketogenesis StatPearls, aktualisierterFachbeitrag. Abgerufen am 07.11.2026.