Auf einen Blick
- Glucose-6-phosphat verbindet Glykolyse, Glykogenaufbau und Pentosephosphatweg.
- Leberglykogen unterstützt die Blutglucose; Muskelglykogen dient überwiegend der eigenen Faser.
- Leber und Niere bilden Glucose aus geeigneten Vorstufen und ergänzen den Austausch zwischen Geweben.
Von der Nahrung zum Einfachzucker
Stärke besteht aus vielen verbundenen Glucosebausteinen. Verdauungsenzyme zerlegen sie schrittweise; Enzyme an der Dünndarmoberfläche setzen die Spaltung kleinerer Zucker fort. Auch Haushaltszucker und Milchzucker werden in ihre jeweiligen Monosaccharide zerlegt. Für die Aufnahme stehen schließlich unter anderem Glucose, Galactose und Fructose bereit. [2]
Die drei Zucker gelangen über unterschiedliche Transportproteine durch die Darmepithelzellen. Die aufgenommenen Stoffe erreichen das Kapillarblut und über die Pfortader zuerst die Leber. Auf diesem Weg trifft ein großer Teil des neu aufgenommenen Zuckers bereits vor der Verteilung im Körper auf ein Organ, das Stoffe umbauen, speichern und weitergeben kann. Die Darmwand selbst besitzt ebenfalls eigene Stoffwechselleistungen. [2]
Fructose und Galactose werden über eigene enzymatische Schritte in nutzbare Zwischenprodukte überführt. Dadurch können ihre Kohlenstoffgerüste in gemeinsame Stoffwechselnetze eingehen. Die Leber besitzt hierfür ein besonders wichtiges Enzymrepertoire. Welche Verbindung weiter entsteht, hängt von Zelltyp, Substratangebot und regulatorischer Lage ab. [2]
Der Eintritt in verschiedene Zellen
Glucose gelangt durch Transportproteine über Zellmembranen. Muskel- und Fettzellen besitzen GLUT4-Transporter, deren Verfügbarkeit an der Zelloberfläche durch Insulinsignale verändert wird. So kann nach einer Mahlzeit mehr Glucose aufgenommen und verarbeitet werden. Andere Transporter sichern die Glucoseaufnahme in weiteren Zelltypen mit eigenen Eigenschaften. [2][28]
Auch die Leber reagiert auf Insulin, etwa durch Veränderungen der Enzymaktivität und der Bildung von Speicherstoffen. Der Transport durch ihre Membran und die nachfolgende Verarbeitung bilden verschiedene regulierbare Schritte. Eine Änderung des Hormonsignals wirkt deshalb auf mehrere Stellen des Stoffwechsels zugleich. Das erklärt, wie Aufnahme, Eigenverbrauch, Speicherung und Abgabe miteinander abgestimmt werden. [2][28][29]
Phosphorylierung legt eine Verzweigung an
Im Zellinneren wird Glucose unter ATP-Verbrauch zu Glucose-6-phosphat umgewandelt. Diese Verbindung bildet einen wichtigen Verteilungspunkt. Sie kann in den glykolytischen Abbau eingehen, für den Aufbau von Glykogen weiterverarbeitet werden oder in den Pentosephosphatweg gelangen. Die Phosphatgruppe verändert dabei die Eigenschaften des Moleküls und verbindet es mit dem inneren Reaktionsnetz. [2][7][8][22]
Die Enzyme an solchen Verzweigungen besitzen eine besondere Bedeutung für den Stofffluss. Eine Zelle kann viel Substrat aufnehmen und dennoch einen Teil davon speichern, während ein anderer Anteil laufend abgebaut wird. Die gleichzeitig bestehenden Wege werden durch ihr Enzymrepertoire, Energiebedarf und Signale unterschiedlich gewichtet. Anabolismus und Katabolismus laufen so in einem organisierten Zusammenhang. [1][2]
Glykogen ordnet viele Glucosebausteine
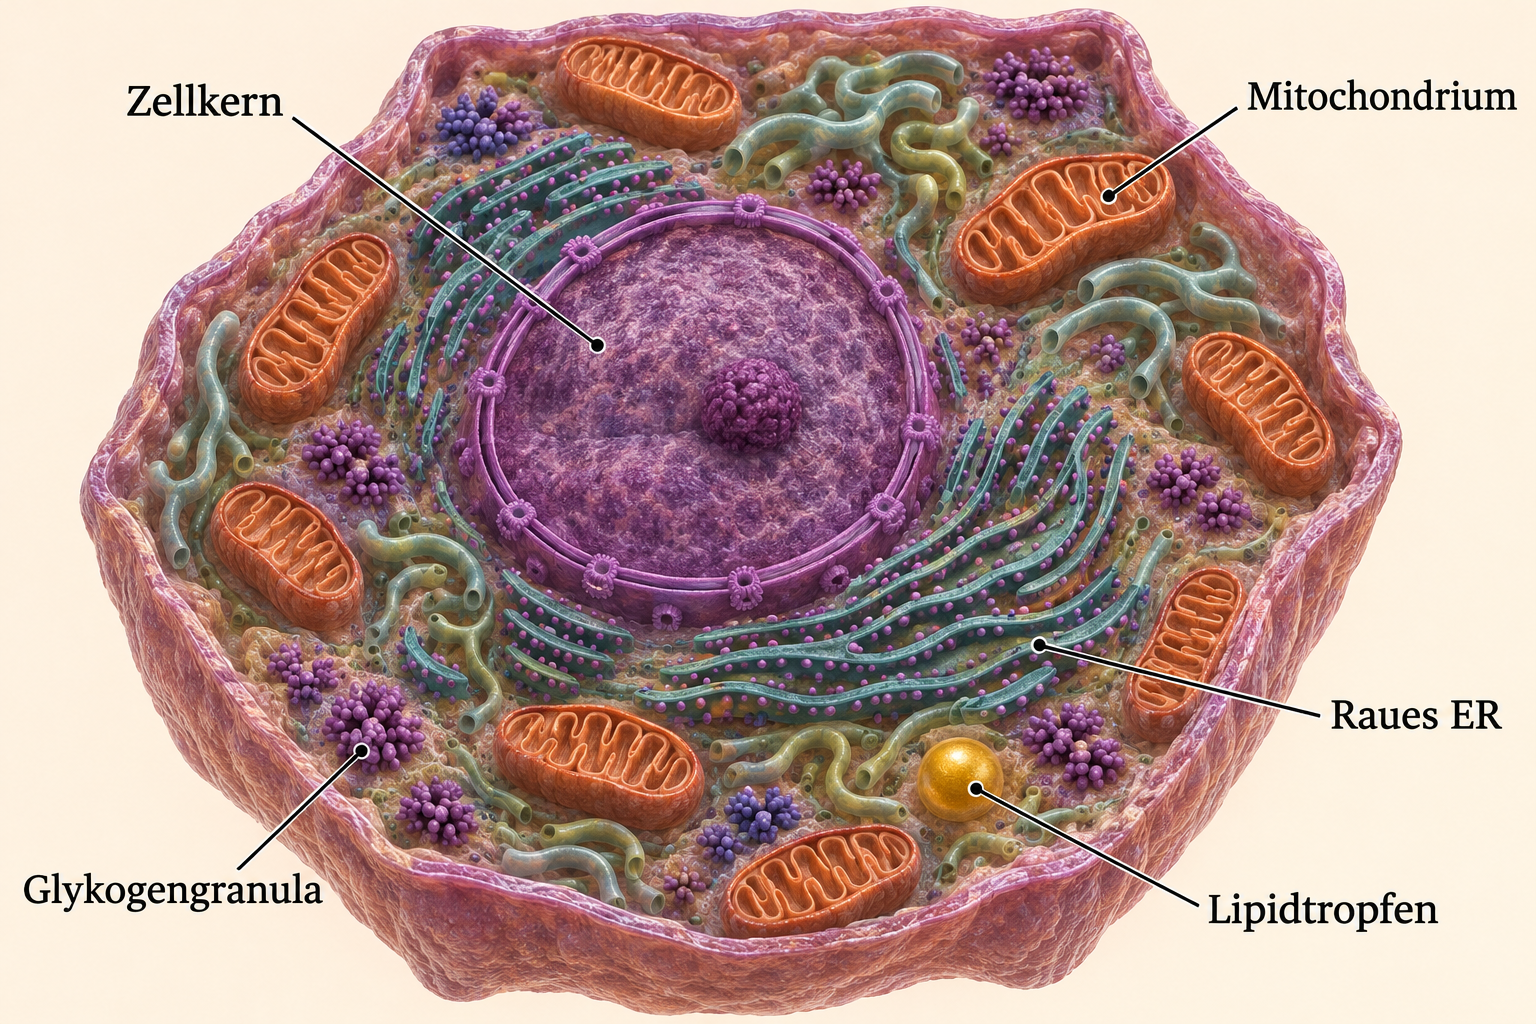
Glykogen besteht aus verzweigten Glucoseketten. Die vielen Verzweigungsenden schaffen zahlreiche Stellen, an denen Enzyme Glucosebausteine anfügen oder wieder lösen können. In Zellen bildet Glykogen Granula im Zytosol. Eine Leberzelle enthält solche Vorräte neben zahlreichen Organellen, die weitere Teile der Stoffverarbeitung übernehmen. [2][33][34]
Beim Glykogenaufbau werden Glucosebausteine in aktivierter Form bereitgestellt und an die vorhandene Kette angefügt. Verzweigungsenzyme gestalten das mehrarmige Molekül. Beim Abbau wirken wiederum Enzyme zusammen, die Ketten verkürzen und Verzweigungsstellen verarbeiten. Der Speicher wird dadurch mit einer enzymatisch nutzbaren Struktur angelegt. [2]
Die Leber kann aus Glucose-6-phosphat freie Glucose bilden und sie in die Blutbahn abgeben. Der letzte enzymatische Schritt ist an das endoplasmatische Retikulum gebunden. Die großen Glykogengranula selbst liegen im Zellplasma. Die räumliche Trennung von Vorrat und letztem Freisetzungsschritt hilft, die beteiligten Strukturen in einer Zellabbildung einzuordnen. [2][20][33][34]
Gesundheitskapitel
Lebervorrat und Muskelvorrat erfüllen eigene Aufgaben
Leberglykogen trägt zwischen Mahlzeiten zur Blutglucose bei. Damit versorgt die Leber auch andere Organe. Skelettmuskeln speichern ebenfalls Glykogen, verwenden dessen Bausteine jedoch überwiegend in den eigenen Fasern. Die Muskelzelle führt die aus Glykogen gewonnenen Bausteine ihrem eigenen Energiestoffwechsel zu. [2][29]
Bei Muskelarbeit kann Glucose aus dem eigenen Vorrat rasch dem Abbau zugeführt werden. Die Glucosebausteine gelangen dabei über phosphorylierte Zwischenprodukte in die Glykolyse. Für eine genaue ATP-Rechnung muss deshalb der betrachtete Ausgangsstoff benannt sein: Freie Blutglucose und ein bereits aus Glykogen bereitgestellter Baustein treten an unterschiedlichen Punkten in die Reaktionsfolge ein. [2][7]
Glykolyse liefert Pyruvat und unmittelbar ATP
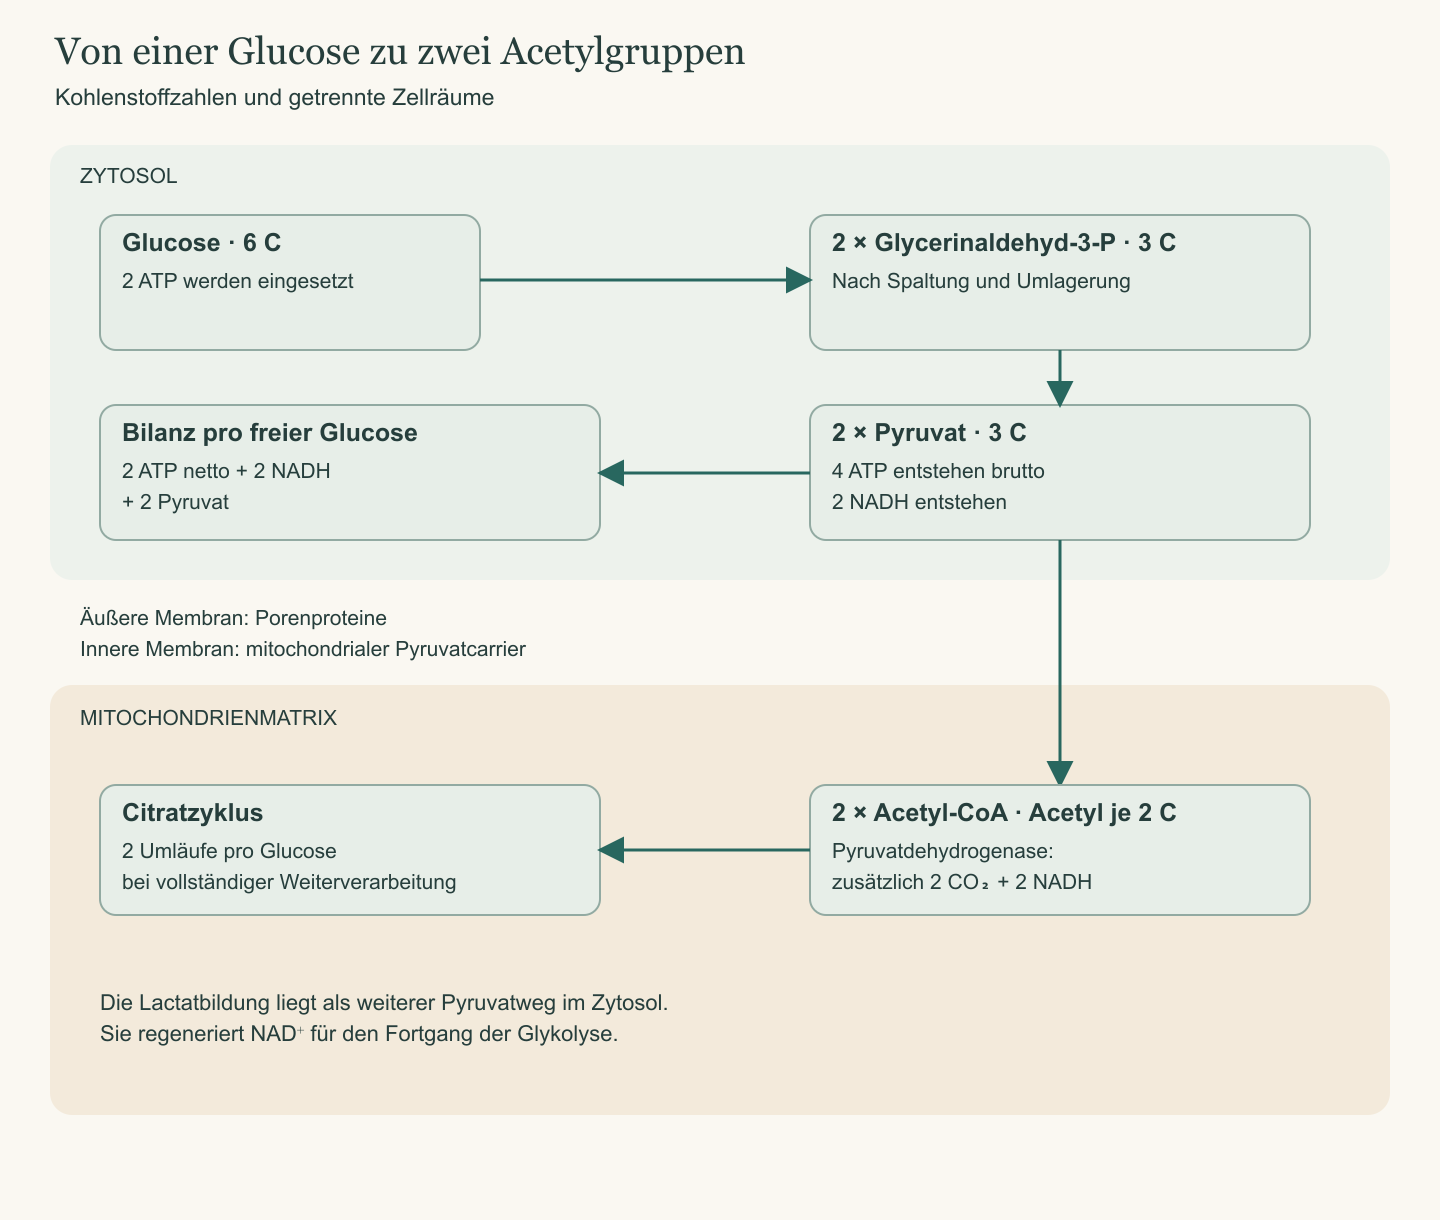
Aus freier Glucose entstehen im Verlauf der Glykolyse zwei Pyruvatmoleküle. Zwei ATP werden zunächst eingesetzt, vier später gebildet. Der Nettoertrag beträgt zwei ATP und zwei NADH. Die Reaktionen liegen im Zytosol und können damit auch in Zellen ohne Mitochondrien ATP bereitstellen. Reife Erythrozyten sind ein besonders anschauliches Beispiel. [2][7][8]
In Zellen mit Mitochondrien kann Pyruvat zur Matrix transportiert und dort zu Acetyl-CoA verarbeitet werden. Daraus folgen die Verbindung mit dem Citratzyklus und die Weitergabe von Elektronen an die Atmungskette. Ein großer Teil des oxidativen Energiegewinns entsteht durch diese nachgeschaltete Verarbeitung. [2][7][9]
Ein weiterer Weg führt von Pyruvat zu Lactat. Dabei wird NADH wieder zu NAD⁺ oxidiert. Lactat gelangt über Transporter zwischen Zellen und Blut; andere Gewebe können es aufnehmen und oxidieren oder für Glucoseneubildung verwenden. Untersuchungen am Menschen zeigen Lactataufnahme und -oxidation auch in arbeitender Muskulatur. Der Stoff verbindet lokale Reaktionen mit dem Austausch zwischen Geweben. [2][9][14]
Gesundheitskapitel
Der Pentosephosphatweg versorgt Aufbau und Redoxarbeit
Ein Teil des Glucose-6-phosphats gelangt in den zytosolischen Pentosephosphatweg. Dessen oxidative Reaktionen erzeugen NADPH. Dieses reduzierte Coenzym unterstützt unter anderem bestimmte Aufbauwege und Redoxsysteme. Es erfüllt damit andere Hauptaufgaben als das in der Energieübertragung häufig betrachtete NADH. [22]
Weitere Reaktionen des Wegs liefern beziehungsweise verarbeiten Zucker mit fünf Kohlenstoffatomen. Ribosebausteine werden für Nukleotide benötigt. Durch reversible Umgruppierungen bestehen Verbindungen zu glykolytischen Zwischenprodukten. Der Glucosestrom kann so zwischen ATP-Bereitstellung, Synthesevorstufen und Redoxaufgaben aufgeteilt werden. [22]
Glucoseneubildung verbindet mehrere Organe
Bei der Gluconeogenese wird Glucose aus geeigneten Vorstufen gebildet. Dazu gehören Lactat, Glycerol und Kohlenstoffgerüste bestimmter Aminosäuren. Die Leber übernimmt einen großen Teil dieser Arbeit; auch die Niere trägt abhängig von der Versorgungslage dazu bei. Der Aufbau benötigt Energie und mehrere spezielle Enzymschritte, die energetisch stark gerichtete Abschnitte der Glykolyse umgehen. [2][20]
Lactat kann zunächst zu Pyruvat werden. Über Oxalacetat und weitere Zwischenprodukte entsteht schließlich wieder Glucose. Bei der Nutzung von Glycerol führt der Eintritt zu einem anderen Zwischenprodukt. Auch die Ausgangspunkte verschiedener Aminosäuren unterscheiden sich. Der gemeinsame Endpunkt wird somit über mehrere Zuflüsse erreicht. [2][20]
Glycerol stammt unter anderem aus dem Abbau gespeicherter Triglyceride. Die gleichzeitig freigesetzten Fettsäuren können Energie für andere Gewebe und die Leber bereitstellen. So ergänzen sich Fettmobilisierung und Glucosebereitstellung: Ihre Produkte übernehmen unterschiedliche Aufgaben innerhalb desselben Organverbunds. [2][3][20]
Hormonsignale verschieben die Gewichtung
Nach einer kohlenhydrathaltigen Mahlzeit steigt die Bereitstellung von Glucose aus dem Darm. Insulin unterstützt unter anderem die Speicherung und Verarbeitung in geeigneten Zielgeweben. Zwischen Mahlzeiten erhält die Glucoseabgabe der Leber größere Bedeutung. Glucagon fördert in diesem Organ die Bereitstellung aus Vorräten und die Neubildung, abgestimmt auf das verfügbare Ausgangsmaterial. [2][29]
Die Entwicklung ist zeitlich überlappend. Auch nach einer Mahlzeit laufen Glucoseverbrauch, Aufbau und andere Stoffwechselwege weiter; während einer Nahrungspause bestehen weiterhin lokale glykolytische Aufgaben. Eine nächtliche Pause zeigt das gut: Gehirn und Erythrozyten werden versorgt, Leber und Niere arbeiten an der Bereitstellung, andere Gewebe nutzen zunehmend Fettsäuren entsprechend ihren Möglichkeiten. [2][20][29]
Ballaststoffe verbinden Zuckerstruktur mit Darmfunktion
Ein Teil der Kohlenhydratstrukturen wird durch menschliche Verdauungsenzyme kaum aufgeschlossen und zählt zu den Ballaststoffen. Löslichkeit, Wasserbindung und mikrobielle Fermentierbarkeit unterscheiden sich je nach Stoff. Daher verändern verschiedene Ballaststoffe die Eigenschaften des Darminhalts auf unterschiedliche Weise. [2][37]
Mikroorganismen im Dickdarm bilden aus fermentierbaren Verbindungen unter anderem Acetat, Propionat und Butyrat. Diese kurzkettigen Fettsäuren können von der Darmwand und weiteren Stoffwechselwegen genutzt werden. Damit endet die Verarbeitung einer pflanzlichen Kohlenhydratstruktur teilweise in einem anderen chemischen Stofftyp. Diese Verbindung ergänzt den Weg der direkt aufgenommenen Einfachzucker. [37]
Glucose-6-phosphat als Verzweigungspunkt
| Weg oder Struktur | Funktion und Zusammenhang |
|---|---|
| Glykolyse | Führt im Zytosol zu Pyruvat und liefert unmittelbar ATP; Lactatbildung unterstützt die Regeneration von NAD⁺. [7][8][14] |
| Glykogenaufbau | Verknüpft Glucoseeinheiten zu einem verzweigten Speicher im Zytosol. [2][29] |
| Pentosephosphatweg | Liefert NADPH für Redox- und Aufbauarbeit sowie Zuckerphosphate für weitere Synthesen. [22] |
| Glucosefreisetzung | Leber und Niere besitzen die Enzymausstattung für die abschließende Freisetzung von Glucose; Muskelglykogen unterstützt vorwiegend die eigene Faser. [20][29] |
Wichtige Begriffe
- Glykogen
- Verzweigtes Polymer aus Glucose, das als mobilisierbarer zytosolischer Speicher dient. [2][29]
- Glucose-6-phosphat
- Phosphorylierte Glucose und gemeinsamer Ausgangspunkt mehrerer Stoffwechselzweige. [8][22]
- NADPH
- Reduzierter Elektronenträger für viele Aufbau- und Redoxreaktionen. [22]
- Gluconeogenese
- Bildung von Glucose aus geeigneten Vorstufen wie Lactat, Glycerol und glucogenen Aminosäuren. [20]
Häufige Fragen
Warum unterscheiden sich Leber- und Muskelglykogen?
Leberzellen können aus dem abgebauten Speicher freie Glucose für das Blut bereitstellen. Die Muskelfaser führt ihre Glykogenbausteine überwiegend in den eigenen Stoffwechsel und unterstützt damit ihre Kontraktionsarbeit. [2][29]
Wofür benötigt die Zelle den Pentosephosphatweg?
Der oxidative Abschnitt bildet NADPH, das unter anderem reduktive Synthesen und die Erhaltung reduzierter Schutzsysteme unterstützt. Weitere Reaktionen verbinden Pentosen mit Zwischenprodukten des Kohlenhydratstoffwechsels. [22]
Diese Zusammenhänge vertiefen
Im Gesundheitswissen weiterlesen
Quellen und Weiterlesen
- Naturheilpraxis Heute: Energiehaushalt Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.1. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Kohlenhydrate und Kohlenhydratstoffwechsel Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.2. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Fette und Fettstoffwechsel Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. Abschnitt 15.2.3. Abgerufen am 07.11.2026.
- Cooper: Metabolic Energy The Cell: A Molecular Approach, 2. Ed., Sinauer, 2000. Abgerufen am 07.11.2026.
- Reactome: Glycolysis Homo sapiens, kuratierter Signalweg; Review 02.06.2025. Abgerufen am 07.11.2026.
- Reactome: Pyruvate metabolism Homo sapiens, DOI 10.3180/R-HSA-70268.9. Abgerufen am 07.11.2026.
- Bricker et al.: A mitochondrial pyruvate carrier required for pyruvate uptake in yeast,Drosophila,and humans Science, 2012;337:96–100. DOI 10.1126/science.1218099. Abgerufen am 07.11.2026.
- Bergman et al.: Active muscle and whole body lactate kinetics after endurance training in men J Appl Physiol1999;87:1684–1696. DOI 10.1152/jappl.1999.87.5.1684. Abgerufen am 07.11.2026.
- Chourpiliadis/Mohiuddin: Biochemistry,Gluconeogenesis StatPearls, aktualisiert05.06.2023. Abgerufen am 07.11.2026.
- Reactome: Pentose phosphate pathway Homo sapiens, DOI 10.3180/REACT_1859.1. Abgerufen am 07.11.2026.
- DeFronzo et al.: Pathogenesis of Type2 Diabetes Mellitus,Glucosetransport Endotext, gezielterphysiologischerTeil. Abgerufen am 07.11.2026.
- OpenStax: Metabolic States of the Body RiceUniversity, A&P2e, 24.5. Abgerufen am 07.11.2026.
- University of Leeds: Hepatocyte function The Histology Guide, institutionelleLehre. Abgerufen am 07.11.2026.
- Hepatic Histology:Hepatocytes ColoradoStateUniversity, institutionelleLehre. Abgerufen am 07.11.2026.
- Max Rubner-Institut: Ballaststoffe Max Rubner-Institut, wissenschaftliche Einordnung, 2026. Abgerufen am 07.11.2026.