Auf einen Blick
- Örtliche Erkennung verändert Gefäße und führt weitere Abwehrzellen zum Gewebe.
- Antigenpräsentation und zusätzliche Signale aktivieren passende Lymphozyten.
- Klonale Vermehrung, Effektorwirkung, Auflösung und Gedächtnis überlappen zeitlich.
1. Der Ort des Kontakts bestimmt den Anfang
Die erste Situation entsteht an einer konkreten Grenzfläche. Ein Kontakt auf einer intakten Hautoberfläche unterscheidet sich von Material, das durch eine Verletzung ins Bindegewebe gelangt. Im Gewebe liegen bereits Zellen bereit, die mikrobielle Muster und Schäden erkennen können. Dazu gehören örtliche Makrophagen und dendritische Zellen sowie signalgebende Epithel- und Stromazellen. [2] [9] [36]
Die Rezeptoren der angeborenen Erkennung prüfen charakteristische Strukturen. Manche erkennen Bestandteile von Mikroorganismen, andere reagieren auf Material, das bei Zellschäden an ungewohnter Stelle verfügbar wird. Aus diesen Signalen entstehen intrazelluläre Reaktionen und die Abgabe von Botenstoffen. Der lokale Zustand wird damit für benachbarte Zellen und Gefäße zugänglich. [2] [9] [36]
Mehrere Abläufe können gleichzeitig beginnen. Vorhandene Fresszellen nehmen Material auf, lösliche Proteine wirken an Oberflächen und erste Signale verändern das Endothel. Wie groß und wie lang die Antwort wird, hängt von Menge und Art des Auslösers sowie von den Eigenschaften des betroffenen Gewebes ab. [2] [9] [36]
2. Blutgefäße verändern den Zugang zum Gewebe
Entzündungsmediatoren verändern die Weite und Durchlässigkeit kleiner Blutgefäße. Mehr Blut kann den betroffenen Bereich erreichen, während Flüssigkeit und bestimmte Plasmaproteine in das Gewebe übertreten. Diese Veränderungen unterstützen den Zugang löslicher Abwehrfaktoren. Zugleich entstehen die örtlichen Bedingungen, die als Rötung, Wärme und Schwellung bemerkbar werden können. [19] [36] [44]
Am venulären Endothel erscheinen beziehungsweise verändern sich Kontaktmoleküle. Leukozyten werden zunächst gebremst und rollen an der Gefäßwand entlang. Aktivierende Signale erhöhen die Haftung; anschließend können sie zwischen oder durch Endothelzellen in das Gewebe gelangen. Der Austritt ist in mehrere aufeinander abgestimmte Schritte gegliedert. [19] [36] [44]
Chemische Leitsignale unterstützen danach die Bewegung zum betroffenen Ort. Neutrophile Granulozyten gehören bei vielen akuten bakteriellen Entzündungen zu den frühen eintreffenden Zellen. Monozyten und weitere Zelltypen können folgen. Der Verlauf ist an den Auslöser angepasst und besitzt im konkreten Gewebe seine eigene zeitliche Dynamik. [19] [36] [44]
3. Fresszellen und Komplement greifen ineinander
Eine Fresszelle bindet Material über geeignete Rezeptoren und umschließt es mit Membran. Im Zellinneren entsteht ein Phagosom. Dessen weitere Reifung und die Verbindung mit lysosomalen Kompartimenten stellen Enzyme und andere Abbauwerkzeuge bereit. Aufgenommene Mikroorganismen oder Zellreste können so innerhalb eines begrenzten Zellraums verarbeitet werden. [2] [11]
Komplement erleichtert diesen Vorgang durch Oberflächenmarkierungen. Gebundenes C3b und daraus entstehende Fragmente schaffen zusätzliche Ansatzpunkte für Rezeptoren von Fresszellen. Andere Komplementfragmente beeinflussen Rekrutierung und Aktivierung. Späte Komponenten können einen Membranangriffskomplex auf geeigneten Zielmembranen bilden. Diese verschiedenen Wirkungen werden innerhalb einer gemeinsamen Proteinkaskade erzeugt. [2] [11]
Kontrollproteine begrenzen, wo und wie lange die Kaskade aktiv bleibt. Ihre Wirkung ist wichtig, weil Verstärkung und Membranschädigung auch körpereigenes Material betreffen könnten. Die angeborene Phase verbindet deshalb die direkte Beseitigung eines Auslösers mit einer laufenden räumlichen Kontrolle ihrer eigenen Werkzeuge. [2] [11]
4. Informationen erreichen den regionalen Lymphknoten
Ein Teil des antigenen Materials wird mit Gewebeflüssigkeit in die Lymphwege aufgenommen. Dendritische Zellen können Material zusätzlich aktiv transportieren. Nach passenden Gewebesignalen verändern sie ihre Oberflächenmoleküle und ihr Wanderungsverhalten. Chemokine und Rezeptoren wie CCR7 tragen dazu bei, dass sie lymphatische Eintrittswege und später geeignete Kontaktzonen erreichen. [31] [32] [33] [35]
Die Lymphe führt in den zugehörigen Lymphknoten. Dort wird ankommendes Material räumlich verteilt; antigenpräsentierende Zellen können auf Lymphozyten treffen. Zugleich gelangen zahlreiche naive Lymphozyten aus dem Blut in den Knoten. Diese Zellen sind bereits ausgereift und besitzen einen Erkennungsrezeptor, haben aber ihre entsprechende spezifische Aktivierung noch vor sich. [31] [32] [33] [35]
Die Art des Antigens beeinflusst, welcher Transportweg besonders wichtig wird. Lösliche Bestandteile können anders verteilt werden als große Partikel oder zellgebundenes Material. Wandernde und bereits im Knoten vorhandene antigenpräsentierende Zellen können zusammenarbeiten. Die Architektur konzentriert so Informationen aus einem kleinen Gewebegebiet an einem organisierten Begegnungsort. [31] [32] [33] [35]
5. Eine naive T-Zelle erhält zusammengehörige Signale
Gesundheitskapitel
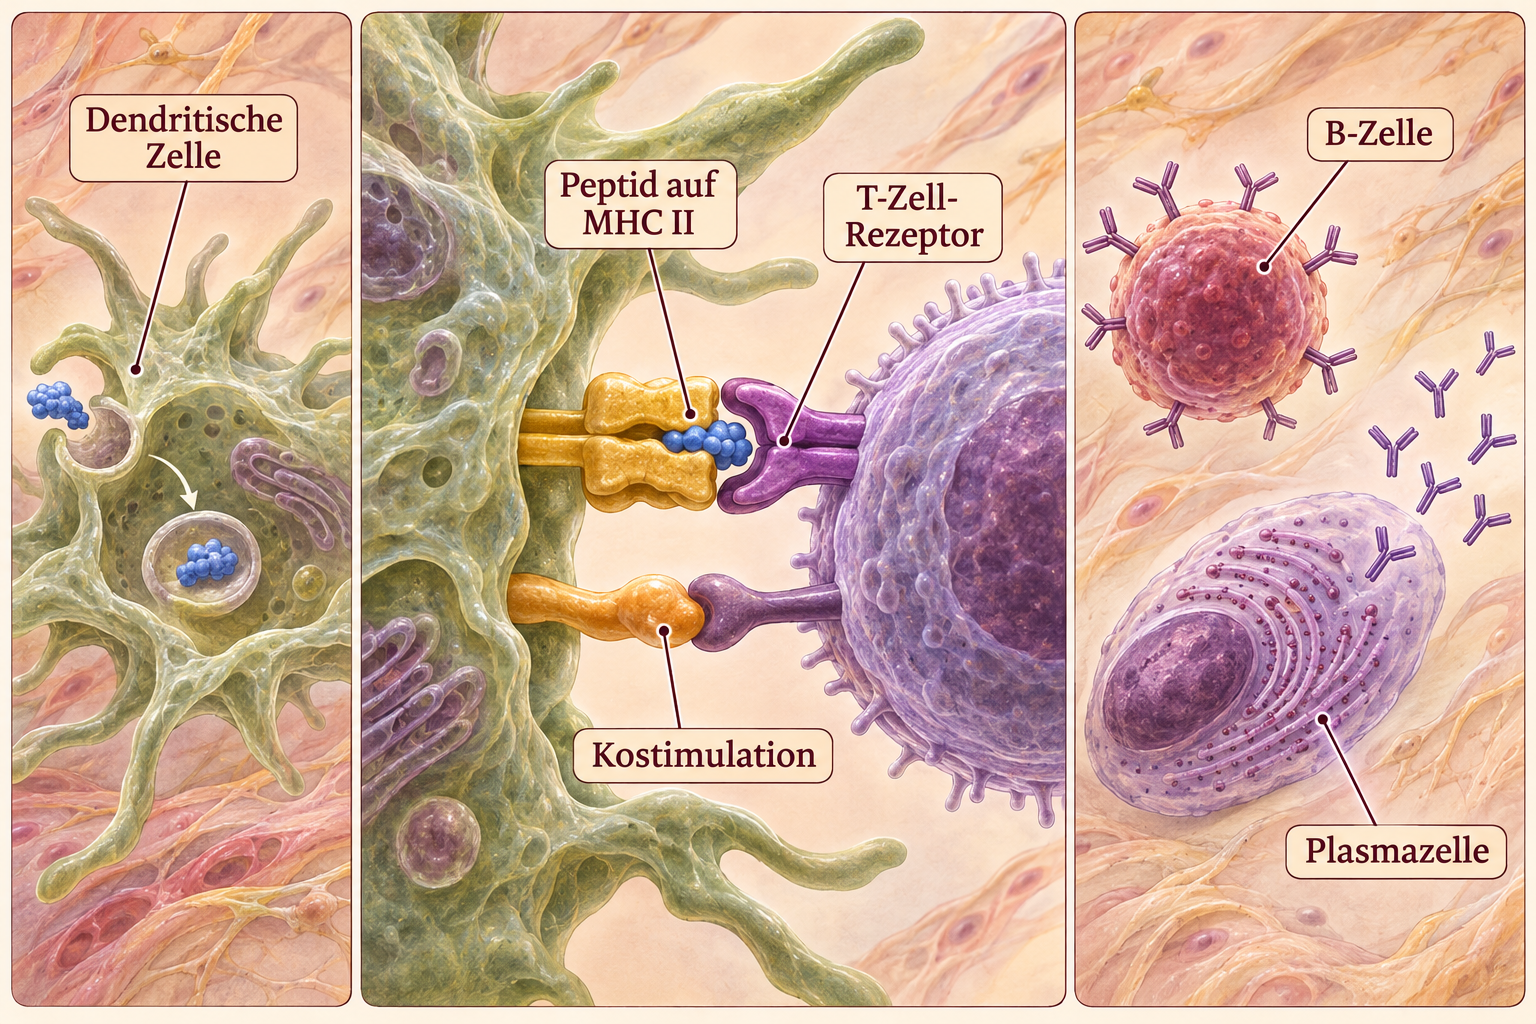
Der klassische αβ-T-Zell-Rezeptor prüft ein Peptid im Kontakt mit einem MHC-Molekül. CD4-T-Zellen sind dabei überwiegend an MHC II, CD8-T-Zellen an MHC I gekoppelt. Der Zellkontakt verbindet also die Identität des präsentierten Materials mit einem passenden Rezeptor. Dendritische Zellen besitzen eine besondere Fähigkeit, naive T-Zellen auf diese Weise zu aktivieren. [10] [37] [39] [41] [56]
Kostimulatorische Kontakte ergänzen die spezifische Erkennung. Ein wichtiges Beispiel ist CD28 auf der T-Zelle, das mit CD80 oder CD86 der präsentierenden Zelle zusammenwirkt. Weitere stimulierende und hemmende Moleküle beeinflussen den Kontakt. Aus der Rezeptorbindung und dem zusätzlichen Signalumfeld entsteht die Entscheidung über Aktivierung und weitere Entwicklung. [10] [37] [39] [41] [56]
Zytokine liefern Informationen über die Situation, in der das Material erkannt wurde. Sie tragen dazu bei, welche funktionelle Ausrichtung eine aktivierte T-Zelle annimmt. Dieses Prinzip wird häufig als Zusammenspiel von Erkennung, Kostimulation und differenzierenden Signalen beschrieben. Der Kontakt ist damit zugleich spezifisch und an den Gewebezustand gekoppelt. [10] [37] [39] [41] [56]
Die Peptide für MHC I stammen überwiegend aus Proteinen des Zellinneren, während MHC II häufig aufgenommenes Material zugänglich macht. Bei der Kreuzpräsentation können spezialisierte Zellen auch aufgenommenes Material über MHC I präsentieren. Damit wird die Aktivierung einer passenden CD8-Zell-Antwort mit einem Zugang verbunden, der außerhalb der präsentierenden Zelle begonnen hat. [37] [41] [57]
6. Aus wenigen passenden Zellen entsteht eine größere Population
Vor dem ersten Antigenkontakt steht eine große Vielfalt verschiedener Rezeptoren bereit. Nur ein kleiner Teil der Lymphozyten passt zu einer bestimmten präsentierten Struktur. Nach geeigneter Aktivierung beginnen diese Zellen sich zu teilen. Die klonale Expansion vergrößert die Zahl der Zellen, die an der betreffenden Antwort mitwirken können. [9] [26] [39] [40]
Vermehrung und Differenzierung benötigen Zeit und Ressourcen. Währenddessen arbeiten bereits angeborene Mechanismen im Gewebe. Die aktivierten Lymphozyten verändern anschließend unter anderem ihre Wanderungseigenschaften und Effektorfunktionen. Dadurch können passende Zellpopulationen den Ort der Aktivierung verlassen und in benötigte Zielgewebe gelangen. [9] [26] [39] [40]
Die Nachkommen eines aktivierten Ausgangsklons können sich zu verschiedenen späteren Aufgaben entwickeln. Funktionelle Zustände und Aufenthaltsorte können sich unterscheiden. Ein Teil wird zur unmittelbaren Effektorzellpopulation, ein anderer Anteil kann nach dem Ende der akuten Antwort weiterbestehen. Der Ablauf verbindet vorübergehende Verstärkung und länger anhaltende Vorbereitung. [9] [26] [39] [40]
7. B-Zellen und T-Helferzellen kooperieren
Eine B-Zelle kann ein zugängliches Antigen mit ihrem B-Zell-Rezeptor binden. Sie nimmt das gebundene Material auf, verarbeitet es und präsentiert Peptide über MHC II. Eine dazu passende T-Helferzelle erkennt den Präsentationskontakt und kann die B-Zelle durch direkten Kontakt und Botenstoffe weiter unterstützen. Bei Proteinantworten ist diese verknüpfte Erkennung besonders wichtig. [26] [27] [38] [58]
Ein Teil der aktivierten B-Zellen wird früh zu antikörperbildenden Zellen. Andere nehmen an Keimzentrumsreaktionen teil. Dort wechseln Phasen von Vermehrung, somatischer Mutation und Auswahl einander ab. Follikuläre T-Helferzellen und stromale Strukturen tragen zur Auswahl bei. Zellen mit geeigneter Antigenaufnahme können dadurch weitere Überlebens- und Vermehrungssignale erhalten. [26] [27] [38] [58]
Die Affinitätsreifung verbessert im Verlauf mögliche Bindungseigenschaften. Der Klassenwechsel passt die ausführende Antikörperausstattung an. Aus der B-Zell-Antwort gehen Plasmazellen und Gedächtnis-B-Zellen hervor. Untersuchungen menschlicher Keimzentrumsantworten haben diesen Zusammenhang auch im Rahmen gezielter Immunisierung verfolgt. Die einzelnen Entwicklungsschritte können über die erste akute Reaktion hinausreichen. [26] [27] [38] [58]
8. Effektorwege erreichen unterschiedliche Ziele
Antikörper wirken nach ihrer Sekretion auch in Flüssigkeitsräumen außerhalb der produzierenden Zelle. Eine geeignete Bindung kann beispielsweise Kontaktstellen eines Erregers blockieren oder ein Toxin neutralisieren. Über weitere Antikörperabschnitte können Fresszellen und Komplement angeschlossen werden. Erkennung und ausführende Wirkung sind so innerhalb eines Moleküls verbunden. [4] [10] [11] [42] [56]
Aktivierte zytotoxische T-Zellen brauchen dagegen einen direkten Kontakt zur erkannten Zielzelle. Über passende Peptid–MHC-I-Kombinationen können sie infizierte Zellen identifizieren und deren kontrollierten Tod einleiten. CD4-T-Zellen unterstützen andere Effektorfunktionen, etwa die Aktivität von Makrophagen. Die endgültige Antwort nutzt damit mehrere räumlich und mechanistisch unterschiedliche Wege. Regulatorische T-Zellen tragen parallel dazu bei, Aktivierung und Gewebereaktionen zu begrenzen. [4] [10] [11] [42] [56] [18]
NK-Zellen können bereits in frühen Phasen an der Kontrolle veränderter Körperzellen beteiligt sein. Ihre aktivierenden und hemmenden Rezeptoren bewerten andere Kontaktmuster. Antikörper können bestimmte zelluläre Effektormechanismen zusätzlich unterstützen. Angeborene und adaptive Komponenten bleiben auch in dieser späteren Phase miteinander verflochten. [4] [10] [11] [42] [56]
9. Die Auflösung ist ein eigener Abschnitt der Antwort
Wenn der Auslöser zurückgeht, verändert sich die Zusammensetzung der Signale. Die weitere Rekrutierung wird begrenzt, kurzlebige Effektorzellen sterben kontrolliert ab und ihre Reste werden aufgenommen. Bei der Efferocytose beseitigen Makrophagen beispielsweise apoptotische neutrophile Zellen. Zugleich kann sich die Signalgebung der aufnehmenden Makrophagen in Richtung Auflösung verändern. [19] [61]
Die Rückkehr zu geeigneten Gewebebedingungen umfasst Flüssigkeitsabtransport, Entfernung von Zellresten und Reparatur. Zellen und Matrix müssen dabei erneut zusammenarbeiten. Art und Umfang der Wiederherstellung hängen vom Gewebe und dem entstandenen Schaden ab. Die Auflösung einer Reaktion und die Wiederherstellung von Funktion laufen deshalb als verbundene Prozesse ab. [19] [61]
10. Was nach der Antwort bestehen bleibt
Gesundheitskapitel
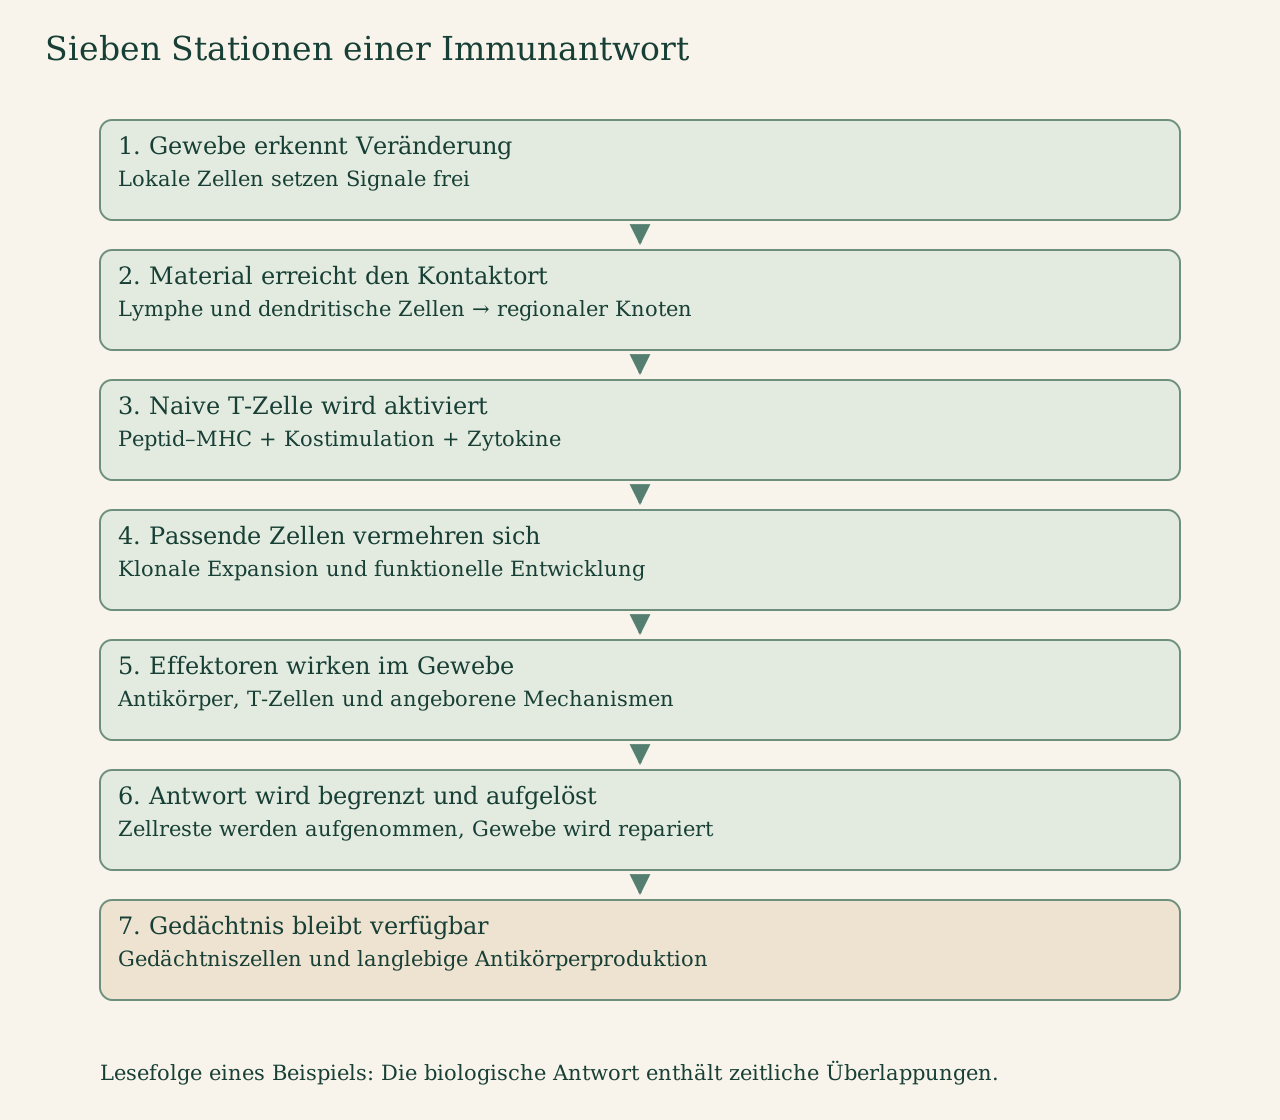
Ein Teil der spezialisierten Lymphozyten bleibt als Gedächtnis erhalten. Zusätzlich können langlebige Plasmazellen Antikörper bereitstellen. Beim erneuten Kontakt treffen Antigene dadurch auf eine andere Ausgangslage: Es stehen mehr passende Zellen, bereits vorhandene Bindungsmoleküle und veränderte Reaktionsprogramme zur Verfügung. Ort, Dauer und Qualität dieses Schutzes hängen vom jeweiligen Zusammenhang ab. Impfungen nutzen diese Fähigkeit zur gezielten Vorbereitung auf bestimmte Antigene. [27] [40] [44] [46] [47] [45]
Gedächtnis ist auch räumlich organisiert. Neben zirkulierenden Populationen finden sich T-Gedächtniszellen, die an Gewebe angepasst sind und dort länger verbleiben. Angeborene Zellprogramme können nach bestimmten Reizen ebenfalls länger verändert sein. Diese als trainierte Immunität untersuchten Vorgänge beruhen auf anderen Mechanismen als das rezeptorspezifische B- und T-Zell-Gedächtnis. [27] [40] [44] [46] [47]
An verschiedenen Stationen können Fehlsteuerungen auftreten: bei der Erkennung, beim Ausmaß der Aktivierung, in der Toleranz oder bei der Auflösung. Allergie, Autoimmunität und Immundefekt betreffen deshalb unterschiedliche biologische Fragen. Der Blick auf konkrete Zellen, Signale und Orte erklärt, weshalb ihre Einordnung jeweils einen eigenen Zusammenhang braucht. [27] [40] [44] [46] [47]
Ort und Aufgabe verändern sich während einer Antwort
| Ort oder Phase | Was dort geschieht |
|---|---|
| Betroffenes Gewebe | Vorhandene Zellen erkennen Muster und Schäden. Botenstoffe verändern Gefäße, rufen weitere Zellen herbei und beeinflussen die lokale Reaktionsumgebung. |
| Blut und Gefäßwand | Lösliche Faktoren und zirkulierende Leukozyten werden zugänglich. Rekrutierte Zellen passieren das Endothel und orientieren sich im Gewebe. |
| Lymphwege und regionaler Knoten | Antigene und wandernde Zellen erreichen einen Kontaktort. Aus dem Blut eingetretene Lymphozyten können auf passende präsentierende Partner treffen. |
| Aktivierte Zellpopulation | Kostimulation und Zytokine ergänzen die Rezeptorerkennung. Teilung erhöht die Zahl passender Zellen; Differenzierung und geänderte Wanderung erschließen Effektororte. |
| Zielgewebe | Antikörper, T-Zell-Funktionen und angeborene Mechanismen wirken an jeweils zugänglichen Strukturen zusammen. Die Wirkung bleibt an Rezeptoren, Kontakte und örtliche Signale gebunden. |
| Auflösung und Erinnerung | Apoptotische Zellen werden aufgenommen und Reparatur wird abgestimmt. Einige Lymphozyten und antikörperbildende Zellen bleiben für weitere Begegnungen erhalten. |
Wichtige Begriffe
- Klonale Expansion
- Vermehrung einer aktivierten passenden Lymphozytenpopulation durch Zellteilung.
- Kostimulation
- Zusätzliche Kontakte, die neben der spezifischen Rezeptorerkennung eine Aktivierung mitbestimmen.
- Efferocytose
- Geordnete Aufnahme apoptotischer Zellen durch geeignete Fresszellen.
- Gedächtniszelle
- Nach früherer Aktivierung länger bestehende, funktionell angepasste B- oder T-Zelle.
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- OpenStax: Anatomy and Physiology 2e, 21.2 Barrier Defenses and the Innate Immune Response Abschnitte Barrier Defenses; Phagocytes; Natural Killer Cells; Recognition of Pathogens. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 21.4 B-lymphocytes and Antibodies Abschnitte B Cell Differentiation and Activation; Active versus Passive Immunity; T cell-dependent versus independent Antigens. Abgerufen am 07.11.2026.
- Janeway et al.: Immunobiology, 5th edition (2001), Principles of innate and adaptive immunity Abschnitte 1-6, 1-12 und Summary: dendritische Zellen, klonale Expansion, Gedächtnis. Abgerufen am 07.11.2026.
- Janeway et al.: Antigen recognition by T cells Abschnitte 3-11 bis 3-16; Summary. Abgerufen am 07.11.2026.
- Janeway et al.: The complement system and innate immunity Abschnitte 2-5, 2-14 und Summary: drei Wege, C3b, C3a/C5a, MAC, Schutzproteine. Abgerufen am 07.11.2026.
- Klein L, Kyewski B, Allen PM, Hogquist KA (2014): Positive and negative selection of the T cell repertoire Nat Rev Immunol 14(6):377–391. DOI 10.1038/nri3667. Abstract, Box 1 und Figure 1 mit Rinden-/Markmigration, DP-Selektion und regulatorischen Zellschicksalen. Abgerufen am 07.11.2026.
- Ortega-Gómez A, Perretti M, Soehnlein O (2013): Resolution of inflammation: an integrated view EMBO Mol Med 5(5):661–674. DOI 10.1002/emmm.201202382. Abstract und Einleitung zur aktiven Auflösung, neutrophiler Apoptose und Efferocytose. Abgerufen am 07.11.2026.
- Victora GD, Nussenzweig MC (2022): Germinal Centers DOI 10.1146/annurev-immunol-120419-022408. Originalabstract zu klonaler Expansion, Mutation, Selektion und Gedächtnis-/Plasmazellausgang. Abgerufen am 07.11.2026.
- Germinal centre-driven maturation of B cell response to mRNA vaccination (2022) Nature 604:141–145. DOI 10.1038/s41586-022-04527-1. Abstract: menschliche Keimzentrumsantwort, somatische Mutation, Gedächtnis und Knochenmarkplasmazellen. Abgerufen am 07.11.2026.
- Mechanisms and Consequences of Dendritic Cell Migration Abschnitte Migration aus Gewebe, CCR7–CCL19/CCL21 und afferente Lymphwege. Abgerufen am 07.11.2026.
- Dendritic Cells Revisited (2021) Abschnitt Antigen Transport to Tissue-Draining Lymph Nodes: Migratory cDCs; antigenabhängige passive/aktive Zuführung. Abgerufen am 07.11.2026.
- Spatially targeted chemokine exocytosis guides transmigration at lymphatic endothelial multicellular junctions (2024) Originalabstract: CCR7/CCL21, Endothelkontakte, gezielte Exozytose; Primärzellkulturen und Maus-Dermisexplantate. Abgerufen am 07.11.2026.
- Lymphatic Migration of Immune Cells Abschnitt Dendritic Cells und CCR7/CCL21-abhängige Rekrutierung. Abgerufen am 07.11.2026.
- Janeway et al.: Induced innate responses to infection Einleitung und Summary: Chemokine/Zytokine, Akutphase, Interferone und NK-Zellen. Abgerufen am 07.11.2026.
- Cruz-Tapias P, Castiblanco J, Anaya JM (2013): Major histocompatibility complex: Antigen processing and presentation Autoimmunity: From Bench to Bedside, Kapitel 10. Abschnitte Introduction; Functions of HLA class I and class II. Abgerufen am 07.11.2026.
- Janeway et al.: B-cell activation by armed helper T cells Einleitung und Summary: BCR-Aufnahme, Peptid–MHC II, CD40/CD40L, Antikörperklasse und Keimzentrum. Abgerufen am 07.11.2026.
- Cavanagh M, Gwyer Findlay E: T-cell activation – British Society for Immunology Abschnitte Signal One, Signal Two, Signal Three: Erkennung, CD28–CD80/86, Zytokinkontext. Abgerufen am 07.11.2026.
- Janeway et al.: Immunological memory Einleitung, 10-21 und Summary: Gedächtniszellen, erneute Antwort und Antikörper. Abgerufen am 07.11.2026.
- Nesmiyanov P: Antigen Processing and Presentation – British Society for Immunology Abschnitte MHC class I presentation; MHC class II presentation; Cross-presentation/Autophagie. Abgerufen am 07.11.2026.
- Eissmann P: Natural Killer Cells – British Society for Immunology Abschnitte Erkennung durch aktivierende/hemmende Rezeptoren, MHC I und zytotoxische Granula. Abgerufen am 07.11.2026.
- MedlinePlus: Immune response Abschnitte Information; Innate, Acquired und Passive Immunity; Complications. Abgerufen am 07.11.2026.
- NIGMS (2023): What Is the Immune System? Abschnitte Innate and Adaptive; Immunological Memory und Impfstoffformen. Abgerufen am 07.11.2026.
- Netea MG et al. (2020): Defining trained immunity and its role in health and disease Nat Rev Immunol 20(6):375–388. DOI 10.1038/s41577-020-0285-6. Originalabstract zu epigenetischer/metabolischer Anpassung und Nutzen-/Schadenskontext. Abgerufen am 07.11.2026.
- Human tissue-resident memory T cells are defined by core transcriptional and functional signatures in lymphoid and mucosal sites (2017) Summary: menschliche Gedächtniszellen in Lunge und Milz, gewebsangepasste Signaturen. Abgerufen am 07.11.2026.
- Pishesha N, Harmand TJ, Ploegh HL (2022): A guide to antigen processing and presentation Nat Rev Immunol 22:751–764. Abstract zur Peptid–MHC-Präsentation und CD4-/CD8-Zuordnung. Abgerufen am 07.11.2026.
- Wearsch P, Cresswell P (2009): Antigen processing and presentation Original-Lehrposter: Überblick, Kreuzpräsentation, Autophagie und CD1d-Lipidantigene. Abgerufen am 07.11.2026.
- Continuous Germinal Center Invasion Contributes to the Diversity of the Immune Response (2022) Cell, DOI 10.1016/j.cell.2022.11.032. Summary: Keimzentren mit wiederholter Mutation und Selektion. Abgerufen am 07.11.2026.
- Resolution of inflammation: mechanisms and opportunity for drug development (2013) Originalabstract: aktive Auflösung, proresolvierende Programme, Granulozytenapoptose und Aufnahme durch Makrophagen. Abgerufen am 07.11.2026.