Auf einen Blick
- Rückresorption führt Stoffe vom Tubuluslumen in Richtung Blut zurück.
- Epithel, Zwischengewebe und Kapillarwand bilden aufeinanderfolgende Austauschflächen.
- Transportproteine, hormonelle Signale und Konzentrationsgefälle bestimmen die Bilanz.
Jede Tubuluszelle hat eine Lumen- und eine Gewebeseite
Gesundheitskapitel
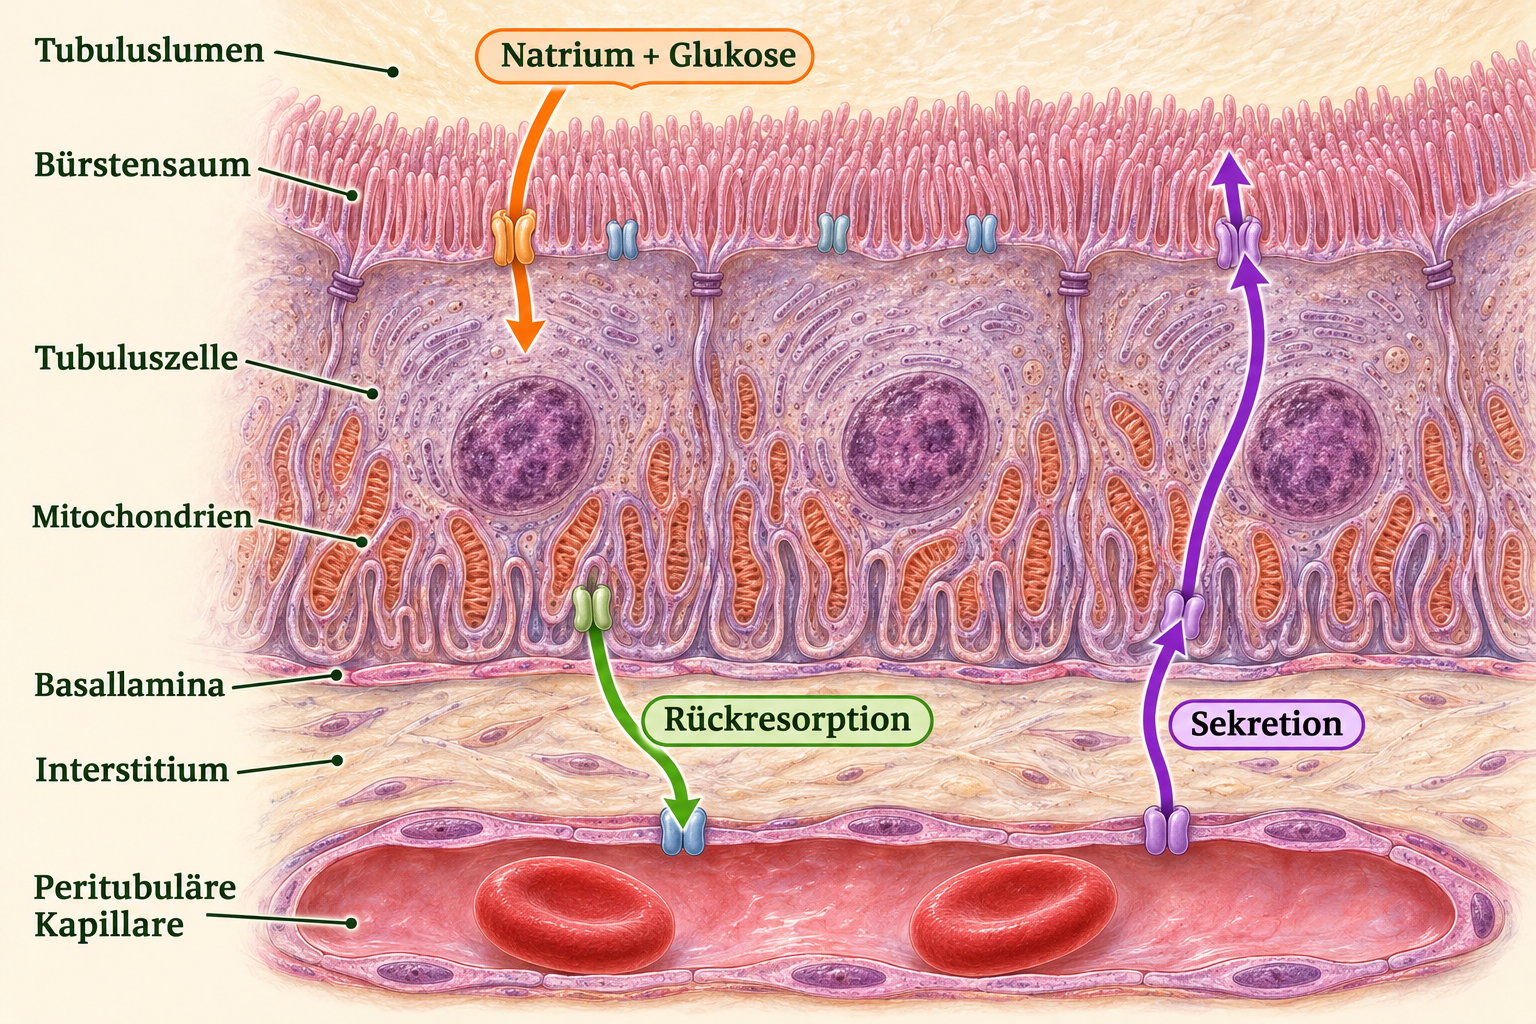
Das Tubulusepithel bildet die Wand einer durchgehenden Röhre. Seine apikale Membran ist der Tubulusflüssigkeit zugewandt. Die basolaterale Membran grenzt an Zwischengewebe und Basallamina. Jenseits dieses Gewebes liegen eigene Kapillaren mit einer endothelialen Wand. Ein rückresorbierter Stoff bewegt sich daher vom Lumen durch oder zwischen Epithelzellen, weiter durch das Interstitium und schließlich über die Gefäßwand in das Blut. [6][8]
Beide Membranseiten besitzen eine unterschiedliche Ausstattung mit Kanälen und Transportern. Diese Polarität macht gerichteten Transport möglich. Zellkontakte im apikalen Bereich verbinden die Nachbarzellen und begrenzen den zwischenzellulären Weg je nach Abschnitt unterschiedlich. Transzellulär bedeutet durch die Zelle, parazellulär zwischen benachbarten Zellen. Beide Routen tragen zur Rückgewinnung bei. [8][9]
Die Natrium-Kalium-ATPase stellt Energie indirekt bereit
An der basolateralen Seite pumpt die Natrium-Kalium-ATPase unter ATP-Verbrauch Natrium aus der Zelle und Kalium hinein. Pro Pumpzyklus werden drei Natriumionen nach außen und zwei Kaliumionen nach innen bewegt. Das unterstützt eine niedrige intrazelluläre Natriumkonzentration und ein elektrisches Gefälle über der Membran. Die für den Transport benötigte Energie stammt letztlich aus dem Zellstoffwechsel. [32]
An der apikalen Membran kann Natrium anschließend entlang seines elektrochemischen Gefälles in die Zelle eintreten. Cotransporter koppeln diesen Eintritt an die Aufnahme anderer Stoffe. Austauscher verknüpfen ihn mit dem Transport eines anderen Teilchens in Gegenrichtung. So kann die Energie eines bereits aufgebauten Ionengefälles für weitere Transportvorgänge genutzt werden. Dieses Prinzip heißt sekundär aktiver Transport. [8][32]
Der Ausdruck aktiv bezieht sich auf die Herkunft des Antriebs. Die Natrium-Kalium-ATPase verbraucht ATP unmittelbar. Ein Natrium-Glukose-Cotransporter nutzt dagegen das zuvor aufgebaute Natriumgefälle. Wasser bewegt sich bei ausreichender Durchlässigkeit passiv entlang der osmotischen Bedingungen. Diese drei Beispiele verbinden Zellstoffwechsel, gekoppelten Stofftransport und Wasserbewegung zu einer Arbeitsteilung innerhalb derselben epithelialen Wand. [8][9][32]
Der proximale Tubulus ist auf große Mengen ausgelegt
Ein dichter Bürstensaum aus Mikrovilli vergrößert die luminale Oberfläche proximaler Tubuluszellen. Zahlreiche Mitochondrien und basale Membraneinfaltungen unterstützen die hohe Transportleistung. Die Kombination aus großer Fläche, Energieversorgung und polaren Transportwegen passt zur Aufgabe, einen großen Anteil des anfänglichen Filtrats zu verarbeiten. Im mikroskopischen Schnitt erscheint das Lumen wegen des Bürstensaums oft unregelmäßig begrenzt. [6][24]
Hier werden große Anteile von Natrium und Wasser sowie unter gewöhnlichen Bedingungen fast die gesamte filtrierte Glukose und viele Aminosäuren zurückgewonnen. Mit der Aufnahme gelöster Stoffe folgen osmotisch Wasserströme. Die Flüssigkeit verliert auf diesem Weg viel Volumen, während ihre Gesamtosmolalität im proximalen Verlauf relativ nahe an der des Plasmas bleibt. Die spätere starke Verdünnung oder Konzentrierung entsteht überwiegend weiter abwärts. [8][9]
Glukose zeigt das Zusammenspiel zweier Membranen
Im frühen proximalen Tubulus transportiert vor allem SGLT2 Glukose zusammen mit Natrium aus dem Lumen in die Zelle. Weiter abwärts trägt SGLT1 zur Aufnahme der verbliebenen Glukose bei. Auf der Gewebeseite ermöglichen GLUT-Transporter den Ausstrom in Richtung Interstitium. Danach gelangt Glukose in das peritubuläre Kapillarblut. An jeder Seite übernimmt also eine passende Transportausstattung einen Teil des gesamten Weges. [32]
Die filtrierte Glukosemenge hängt sowohl von der GFR als auch von der Glukosekonzentration im Plasma ab. Die Transportproteine besitzen eine begrenzte Kapazität. Übersteigt die angelieferte Menge die gemeinsam verfügbare Rückgewinnung, verbleibt mehr Glukose in der Tubulusflüssigkeit und kann mit dem Harn ausgeschieden werden. So verbinden sich Plasmakonzentration, Filtration und tubuläre Transportkapazität zu einer Stoffbilanz. [8][32]
Ein gewähltes Zahlenbeispiel macht die angelieferte Last greifbar. Bei einer Filtrationsrate von 0,12 Litern pro Minute und einer Plasmakonzentration von fünf Millimol Glukose pro Liter gelangen rechnerisch 0,6 Millimol pro Minute in das Filtrat. Verdoppelt sich bei unveränderter Filtrationsrate die Konzentration, verdoppelt sich auch diese Last. Ob und wie viel Glukose danach ausgeschieden wird, ergibt sich aus der anschließenden Rückgewinnung. [7][32]
Bicarbonat wird über eine chemische Zwischenstufe zurückgewonnen
Filtriertes Bicarbonat wird im proximalen Tubulus überwiegend über gekoppelte Schritte zurückgewonnen. Die Zelle gibt Wasserstoffionen in das Lumen ab, unter anderem über den Natrium-Wasserstoff-Austauscher NHE3. Dort reagieren sie mit Bicarbonat. Carboanhydrase erleichtert die Bildung von Kohlendioxid und Wasser. Kohlendioxid kann in die Epithelzelle gelangen, wo erneut Bicarbonat und Wasserstoffionen entstehen. [10]
Das Bicarbonat verlässt die Zelle an der basolateralen Membran, während Wasserstoffionen für weitere luminale Transportzyklen bereitstehen. Netto wird dadurch filtriertes Bicarbonat für den Körper bewahrt. Die zusätzliche Neubildung von Bicarbonat hängt mit der späteren Netto-Ausscheidung von Säure zusammen, etwa als Ammonium oder an Phosphat gebunden. Beide Aufgaben ergänzen sich im renalen Säure-Basen-Haushalt. [10][35]
Sekretion ergänzt den Stoffstrom im Lumen
Tubuluszellen können bestimmte Stoffe aus dem peritubulären Blut aufnehmen und an ihrer apikalen Seite an die Tubulusflüssigkeit abgeben. Besonders im proximalen Abschnitt gibt es dafür spezialisierte Transportwege für organische Anionen und Kationen. Zu den Substraten gehören ausgewählte Stoffwechselprodukte und körperfremde Verbindungen. Die ausgeschiedene Menge eines Stoffes kann dadurch über seine allein filtrierte Menge hinausgehen. [36][41]
Diese Wege benötigen aufeinander abgestimmte Schritte an beiden Membranseiten. Unterschiedliche Stoffe können dabei teilweise dieselben Transportproteine nutzen. Welche Menge am Ende im Harn erscheint, hängt daher auch von der Transportausstattung und der verfügbaren Kapazität ab. Diese physiologische Grundlage erklärt, weshalb sich der renale Umgang mit verschiedenen Verbindungen deutlich unterscheidet. [36][41]
Die Henle-Schleife verteilt Salz- und Wassertransport
Im dünnen absteigenden Schenkel kann Wasser gut durch die Wand treten. Mit zunehmender Marktiefe trifft die Flüssigkeit auf ein stärker konzentriertes Interstitium. Wasser verlässt unter passenden Bedingungen das Lumen, und die verbleibende Tubulusflüssigkeit wird konzentrierter. Die Eigenschaften der dünnen Segmente unterscheiden sich nach Lage und Nephrontyp. [9][12]
Der dicke aufsteigende Schenkel gewinnt Natriumchlorid zurück, während seine Wand für Wasser weitgehend undurchlässig bleibt. NKCC2 vermittelt die apikale Aufnahme von Natrium, Kalium und Chlorid; die basolaterale Natriumpumpe erhält das antreibende Gefälle. Dadurch wird die Tubulusflüssigkeit verdünnt. Gleichzeitig unterstützt der Salztransport das osmotische Milieu im äußeren Mark. [9][26]
Harnstoff wird im Sammelrohr durch Wasserentzug konzentriert und kann in terminalen inneren Markabschnitten über Transportproteine ins Interstitium gelangen. Zusammen mit Salz, dünnen Schleifenabschnitten und Gegenstromaustausch trägt er zum inneren Markmilieu bei. Die Aufrechterhaltung dieses Milieus ist eine gemeinsame Leistung mehrerer Röhren- und Gefäßsysteme. [9][12]
Späte Abschnitte passen die Ausscheidung an
Im frühen distalen Tubulus gewinnt der Natrium-Chlorid-Cotransporter NCC Salz zurück. Die geringe Wasserdurchlässigkeit dieses Abschnitts unterstützt die weitere Verdünnung. Im späteren distalen Nephron werden unter anderem Natriumkanäle, Kaliumkanäle und ihre hormonelle Regulation wichtig. Die genaue Transportausstattung ändert sich dabei entlang von distalem Tubulus, Verbindungsstück und Sammelrohr. [9][27]
Aldosteron fördert in dafür empfindlichen Epithelzellen die Natriumaufnahme und begünstigt die Kaliumsekretion. Für die Kaliumabgabe zählen zusätzlich die Natriumlieferung und der Flüssigkeitsstrom im distalen Lumen. Schaltzellen übernehmen spezialisierte Säure-Basen-Transporte. Damit kann ein relativ kleiner verbleibender Anteil des Filtrats die endgültige Ausscheidungsbilanz entscheidend verändern. [10][11][27]
Die Macula densa erhält einen Flüssigkeitsstrom, dessen Zusammensetzung bereits durch proximale Rückgewinnung und Schleifentransporte verändert wurde. Die dortige Natriumchloridmessung verknüpft diese Verarbeitung mit der Gefäßregulation. Mehr Rückgewinnung vor der Messstelle kann die Lieferung verringern; ein größerer Eingangsstrom kann sie steigern. Die Rückkopplung stabilisiert so die Bedingungen, unter denen die nachfolgenden regulierten Abschnitte arbeiten. [25]
Vasopressin verändert einen genau bestimmten Wasserweg
Gesundheitskapitel
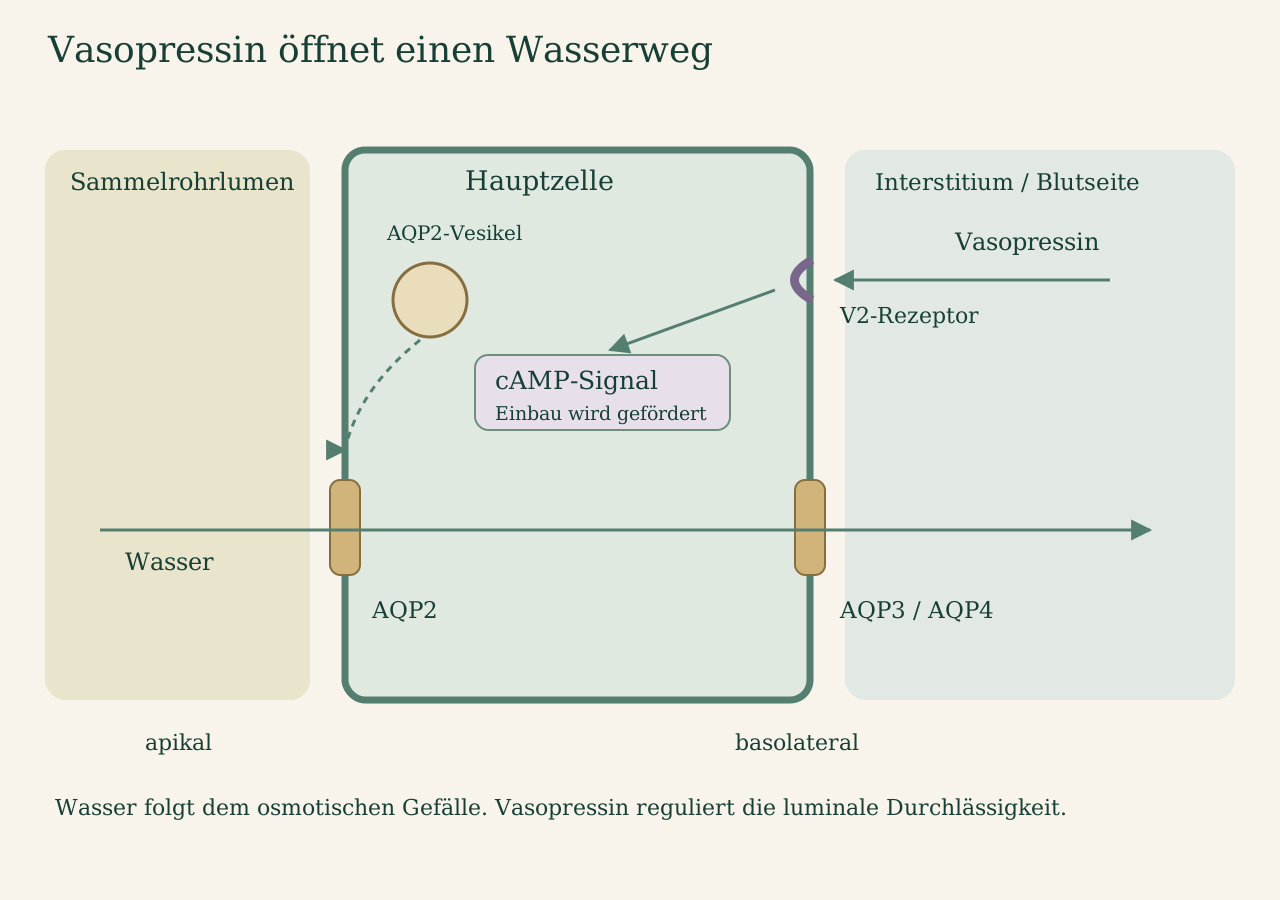
Vasopressin erreicht die Hauptzellen über das Blut und bindet an V2-Rezeptoren an ihrer basolateralen Seite. Der dadurch ausgelöste Signalweg fördert die Verlagerung von Aquaporin-2-haltigen Vesikeln zur apikalen Membran. Eingebaute Aquaporine vergrößern die Wasserdurchlässigkeit der dem Harn zugewandten Zellseite. Bei veränderter Signalstärke wird die Membranausstattung erneut angepasst. [9][34]
Wasser tritt anschließend entlang des osmotischen Gefälles aus dem Lumen in die Zelle ein und verlässt sie über basolaterale Wasserwege, darunter Aquaporin-3 und -4. Dafür muss das umgebende Gewebe ein geeignetes Konzentrationsgefälle bereitstellen. Die Wasserbewegung verbindet somit ein hormonell reguliertes Eingangstor mit den zuvor aufgebauten Bedingungen im Nierenmark. [9][34]
Stoffmenge, Konzentration und Harnfluss zusammen lesen
Die ausgeschiedene Stoffmenge pro Zeit ist das Produkt aus Harnkonzentration und Harnvolumen pro Zeit. Verdoppelt sich in einem gewählten Rechenbeispiel die Harnmenge bei halbierter Konzentration, bleibt die ausgeschiedene Menge gleich. Eine hohe Konzentration kann also aus einem kleinen Flüssigkeitsvolumen entstehen. Diese einfache Rechnung macht die Trennung zwischen Stofftransport und Wassertransport greifbar. [7][8]
Auch die Wasserbilanz lässt sich über den verbleibenden Anteil lesen. Wenn aus 100 Einheiten Tubulusflüssigkeit zunächst 90 zurückgewonnen werden, bleiben zehn übrig. Werden später von diesen zehn weitere acht aufgenommen, erreicht ein Endvolumen von zwei Einheiten den Ausgang. Die hohe Wirkung späterer Transportänderungen wird verständlich, sobald sich die Prozentangabe auf den jeweils verbleibenden Strom bezieht. [7][8]
Für den Gesamtweg gilt: Ausscheidung = Filtration − Rückresorption + Sekretion. Die Filtration liefert den Eingangsstrom. Die hier beschriebenen Transporte verändern ihn. Die Regulation von Wasser und Elektrolyten verbindet diese Vorgänge mit Aufnahme, Verlusten und Verteilung im gesamten Körper. [7][8][34]
Ausscheidung pro Zeit = filtrierte Menge − rückresorbierte Menge + sezernierte Menge [7][8]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- Columbia University: Histology Laboratory, Electron Micrographs of the Urinary System Lab 12: Glomerular capillaries, proximal/distal tubules und transitional epithelium. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 25.5 Physiology of Urine Formation Abschnitte Glomerular Filtration Rate, Net Filtration Pressure und Inulin; Betts et al., 2022. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 25.6 Tubular Reabsorption Abschnitte Active/Passive Transport, Proximal Convoluted Tubule und Transport Maximum; Betts et al., 2022. Abgerufen am 07.11.2026.
- Knepper MA, Kwon TH, Nielsen S: Molecular Physiology of Water Balance New England Journal of Medicine 372, 1349–1358 (2015). DOI 10.1056/NEJMra1404726. Abschnitte zu Durst, Vasopressin, Wasserkanälen und Harnkonzentrierung. Abgerufen am 07.11.2026.
- Hamm LL, Nakhoul N, Hering-Smith KS: Acid-Base Homeostasis Clinical Journal of the American Society of Nephrology 10, 2232–2242 (2015). DOI 10.2215/CJN.07400715. Basic Concepts, Respiratory/Renal Control, Proximal HCO3 Reabsorption und distale Schaltzellen. Abgerufen am 07.11.2026.
- Palmer BF: Regulation of Potassium Homeostasis Clinical Journal of the American Society of Nephrology 10, 1050–1060 (2015). DOI 10.2215/CJN.08580813. Abstract, Introduction und Internal Balance of K+. Abgerufen am 07.11.2026.
- Sands JM, Layton HE: The Physiology of Urinary Concentration: an Update Seminars in Nephrology 29(3), 178–195 (2009). DOI 10.1016/j.semnephrol.2009.03.008. Introduction, Countercurrent Multiplication und Countercurrent Exchange. Abgerufen am 07.11.2026.
- University of Leeds: Histology Guide, The Tubules Abschnitte Proximal/Distal Convoluted Tubule, Loop of Henle und Collecting Duct. Abgerufen am 07.11.2026.
- Edwards A, Kurtcuoglu V: Renal blood flow and oxygenation Pflügers Archiv 474, 759–770 (2022). DOI 10.1007/s00424-022-02690-y. Introduction, Intrinsic mechanisms, Myogenic mechanism, Tubulo-glomerular feedback und Hormonal signals. Abgerufen am 07.11.2026.
- Castrop H, Schießl IM: Physiology and pathophysiology of the renal Na-K-2Cl cotransporter (NKCC2) American Journal of Physiology – Renal Physiology 307(9) (2014). DOI 10.1152/ajprenal.00432.2014. Abstract: apikale Lage und Aufgaben von NKCC2. Abgerufen am 07.11.2026.
- Palmer LG: Directing two-way traffic in the kidney: A tale of two ions Journal of General Physiology 154(10), e202213179 (2022). DOI 10.1085/jgp.202213179. Sodium balance, Transport along the nephron und Signaling factors. Abgerufen am 07.11.2026.
- Ghezzi C, Loo DDF, Wright EM: Physiology of renal glucose handling via SGLT1, SGLT2 and GLUT2 Diabetologia 61(10), 2087–2097 (2018). DOI 10.1007/s00125-018-4656-5. Abschnitte zu renaler Glukoserückresorption und Transportmechanismen. Abgerufen am 07.11.2026.
- Danziger J, Zeidel ML: Osmotic Homeostasis Clinical Journal of the American Society of Nephrology 10(5), 852–862 (2015). DOI 10.2215/CJN.10741013. Introduction, Osmosensory/AVP Regulation und Effects of AVP. Abgerufen am 07.11.2026.
- Weiner ID, Verlander JW: Ammonia Transporters and Their Role in Acid-Base Balance Physiological Reviews 97(2), 465–494 (2017). DOI 10.1152/physrev.00011.2016. Abstract. Abgerufen am 07.11.2026.
- Wang L, Sweet DH: Renal Organic Anion Transporters (SLC22 Family): Expression, Regulation, Roles in Toxicity, and Impact on Injury and Disease The AAPS Journal 15(1), 53–69 (2013). DOI 10.1208/s12248-012-9413-y. Abstract und indexierter Einleitungsausschnitt. Abgerufen am 07.11.2026.
- Wright SH, Dantzler WH: Molecular and Cellular Physiology of Renal Organic Cation and Anion Transport Physiological Reviews 84(3), 987–1049 (2004). DOI 10.1152/physrev.00040.2003. Abstract: proximaler transepithelialer Transport organischer Anionen und Kationen. Abgerufen am 07.11.2026.