Auf einen Blick
Die Matrix liegt außerhalb der Zellen. Ihr Faseranteil, ihre wasserbindenden Bestandteile und ihre räumliche Anordnung passen zu den Aufgaben eines Gewebes. Lockeres Bindegewebe füllt Zwischenräume, straffes Bindegewebe kann Zugkräfte aufnehmen. Knorpel und Knochen gehören zu den spezialisierten Stützgeweben. Die mineralisierte Knochenmatrix und die wasserreiche Knorpelmatrix besitzen jeweils eigene mechanische Eigenschaften. [1][3][4]
Was zwischen den Zellen liegt
Bei einer Gewebeabbildung richten wir den Blick häufig zuerst auf Zellkerne. Für Bindegewebe ist die Umgebung dieser Zellen genauso aufschlussreich. Dort liegen Faserzüge und eine wasserhaltige Grundsubstanz. Ihre Zusammensetzung bestimmt mit, wie ein Gewebe auf Zug oder Druck reagiert. [1][2]
Kollagenfasern verleihen vielen Geweben Zugfestigkeit. Elastische Bestandteile ermöglichen Verformung und Rückkehr zur Ausgangsform. Wasserbindende Zuckerverbindungen, darunter Glykosaminoglykane in Proteoglykanen, tragen zu einer gelartigen Grundsubstanz bei. Die Verbindung von Fasern und gebundenem Wasser lässt sehr unterschiedliche Gewebestrukturen entstehen. [2]
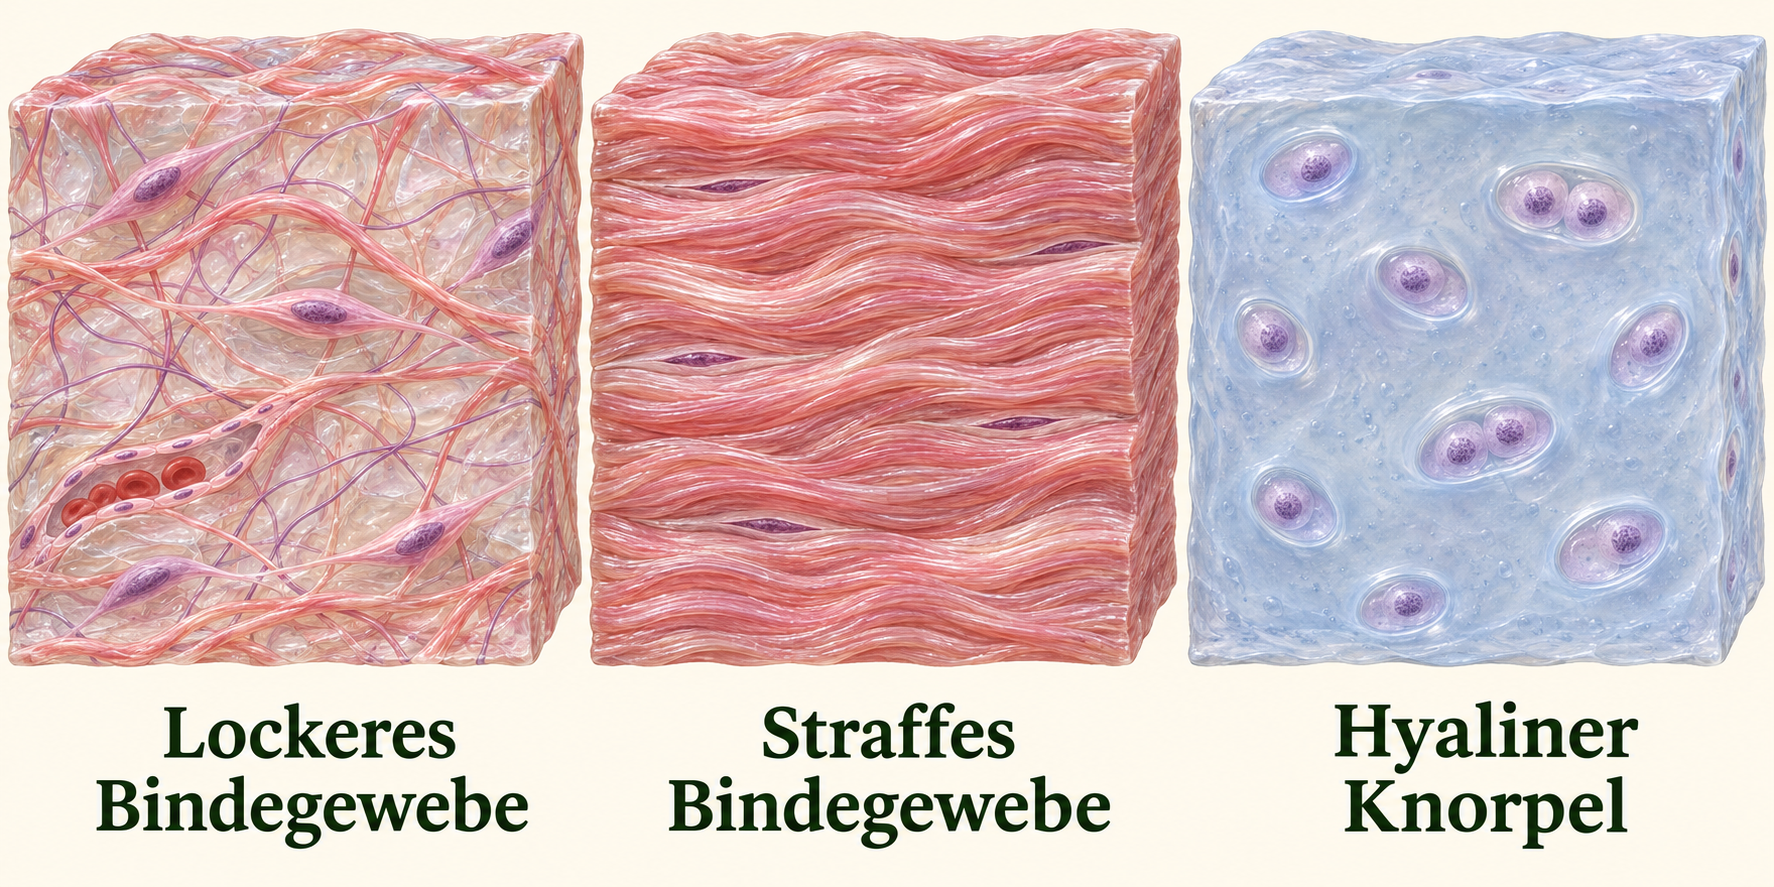
Vergleiche die beiden linken Felder der Gewebeabbildung: In der einen liegen viele dicke Faserbündel nahezu parallel. In der anderen bilden weniger dicht gepackte Fasern ein offeneres Netz. Schon diese Anordnung gibt Hinweise darauf, welchen Anforderungen die Gewebe begegnen.
Gesundheitskapitel
Fasern besitzen unterschiedliche Organisationsformen
Kollagenmoleküle können sich zu Fibrillen und größeren Faserbündeln organisieren. Solche Strukturen verleihen Geweben Zugfestigkeit. Typ-I-Kollagen ist beispielsweise in Sehnen und vielen bindegewebigen Hüllen bedeutsam. Das feinere fibrilläre Gerüst hyalinen Knorpels enthält überwiegend Typ-II-Kollagen. Die Verteilung der Kollagentypen ergänzt damit die sichtbare Faseranordnung. [7][8]
Elastische Fasern enthalten Elastin und ein Gerüst aus Mikrofibrillen. Sie unterstützen Dehnung und Rückstellung, etwa in der Haut und großen Gefäßen. Retikuläre Fasern bilden besonders feine Kollagennetze, vor allem mit Typ-III-Kollagen. Ihre Organisation passt zur Einbettung vieler Zellen in lymphatischen und blutbildenden Organen. [1][8][16]
Grundsubstanz verbindet Wasserbindung und Austausch
Glykosaminoglykane sind lange Zuckerketten mit ausgeprägter Wasserbindung. Viele liegen an Proteine gebunden als Proteoglykane vor. Hyaluronan bildet besonders große, wasserbindende Moleküle. Zusammen mit weiteren Matrixbestandteilen entsteht ein hydratisierter Raum, der Druckeinwirkungen begegnet und Diffusion ermöglicht. Fasern und Grundsubstanz tragen so auf unterschiedliche Weise zu den Gewebeeigenschaften bei. [2][9]
Diese Umgebung ist auch ein Weg für gelöste Stoffe und wandernde Zellen. Eine lockere Matrix unter einem Epithel schafft beispielsweise kurze Versorgungswege zwischen kleinen Blutgefäßen und der Grenzfläche. Eine dichte Sehne organisiert dagegen einen besonders faserreichen Raum für gerichtete Kraftübertragung. [1][3]
Zellen bauen die Matrix auf und reagieren auf ihre Umgebung
Fibroblasten sind wichtige matrixbildende Zellen des eigentlichen Bindegewebes. Sie stellen unter anderem Faserbestandteile her. Daneben kommen je nach Gewebe Fettzellen und verschiedene Abwehrzellen vor. Makrophagen, Mastzellen und Plasmazellen erfüllen unterschiedliche Aufgaben innerhalb der Immunabwehr. [1][5]
Zellen sind über Verbindungen an ihrer Oberfläche mit Teilen der Matrix gekoppelt. Integrine verbinden äußere Matrixbestandteile mit Strukturen des Zytoskeletts. Solche Verbindungen können Informationen über die Umgebung an die Zelle weitergeben. Die Matrix und ihre Zellen stehen dadurch in einem wechselseitigen Zusammenhang. [2]
Die Anheftung verbindet mehrere Größenordnungen: äußere Fasern, Bestandteile der Zelloberfläche und das innere Zytoskelett. Erst ihre Verbindung erklärt, wie die umgebende Matrix mit dem Zellverhalten zusammenhängt.
Abwehrzellen erweitern die örtlichen Aufgaben
Makrophagen nehmen Partikel, Mikroorganismen und Zellreste auf. Mastzellen speichern unter anderem Histamin und geben bei geeigneter Aktivierung Botenstoffe ab, die Gefäße und Entzündungsreaktionen beeinflussen. Plasmazellen entstehen aus B-Zellen und bilden Antikörper. Diese Zelltypen ergänzen die mechanischen Aufgaben des Bindegewebes um örtliche Abwehr und Kommunikation. [1][13]
Die Zusammensetzung verändert sich mit Organ und Zustand. Ein Schleimhautbereich mit vielen Umweltkontakten stellt andere Anforderungen als ein kräftiges Sehnenbündel. Blutgefäße vermitteln die Versorgung und den Zutritt weiterer Zellen. Bindegewebe wird dadurch zu einer Umgebung, in der mechanische Organisation und Immunfunktion gemeinsam stattfinden. [1][3][13]
Lockeres Bindegewebe: Raum für Austausch und Versorgung
Im lockeren Bindegewebe liegen die Fasern vergleichsweise offen angeordnet. Zwischen ihnen befinden sich Zellen und Grundsubstanz. Dieses Gewebe kommt in vielen organischen Zwischenräumen vor und begleitet Versorgungswege. Sein Aufbau verbindet mechanische Einbettung mit Raum für Zellen, Flüssigkeit und Stoffaustausch. [1][3]
Im Gewebevergleich ist diese offenere Anordnung links zu erkennen. Zwischen den Fasern liegen Zellen und ein kleines Gefäß. Der Zusammenhang von Versorgung, Zellumgebung und mechanischer Einbettung wird an derselben Struktur sichtbar.
Straffes Bindegewebe: Die Faserrichtung trägt zur Funktion bei
Bei straffem Bindegewebe nehmen dicht gepackte Faserzüge viel Raum ein. Sind sie überwiegend parallel angeordnet, können sie Zugkräfte besonders gut entlang dieser Richtung aufnehmen. Sehnen sind ein wichtiges Beispiel. Sie verbinden Muskulatur und Knochen beziehungsweise andere Ansatzstrukturen. In vielen Bändern verbindet straffes Bindegewebe Knochen miteinander und trägt zur Gelenkführung bei. [3]
Andere straffe Gewebe besitzen ein stärker verflochtenes Fasermuster. Solche Strukturen finden sich beispielsweise in der Lederhaut und in Gelenkkapseln. Unterschiedliche Faserverläufe passen hier zu Anforderungen, die aus mehreren Richtungen entstehen. [3]
Für das räumliche Verständnis lohnt es sich, dieselbe Sehne einmal längs und einmal quer zu betrachten. In der Längsansicht erscheinen die Faserbündel als parallele Züge. Im Querschnitt werden sie als nebeneinanderliegende Einheiten sichtbar. Beide Bilder gehören zum selben dreidimensionalen Aufbau.
Retikuläre Netze und Basallamina gliedern verschiedene Räume
In Lymphknoten unterstützt ein retikuläres Gerüst die Organisation vieler Immunzellen. Zwischen den Fasern und zugehörigen Stromazellen bleiben Räume für Zellkontakte und Transport. Spezielle Silberfärbungen machen diese feinen Fasern besonders deutlich. Kapsel, Trabekel und inneres Retikulum bilden verschiedene Größenordnungen der mechanischen Einbettung desselben Organs. [16]
Unter Epithelien liegt eine besonders dünne, geordnete Matrix, die Basallamina. Zu ihren Bestandteilen gehören Kollagene, Laminine und Proteoglykane. Sie unterstützt Haftung und räumliche Organisation und erfüllt je nach Ort besondere Austauschfunktionen. Vergleichbare Hüllen finden sich auch um einzelne Zelltypen, etwa Muskelfasern. [10]
Die Basallamina stellt eine spezialisierte Matrixform an einer Zellgrenze dar. Darunter kann ein wesentlich breiterer Bindegewebsraum mit Fasern, Gefäßen und Abwehrzellen liegen. An der Haut lässt sich diese Abstufung verfolgen: Die dünne Grenzzone verankert epidermale Zellen; die Dermis bildet den versorgenden und tragenden Untergrund. [2][10]
Knorpel: spezialisierte Matrix für unterschiedliche Aufgaben
Knorpelzellen heißen Chondrozyten. Sie liegen in einer von ihnen aufgebauten Matrix. Knorpel besitzt keine eigenen Blutgefäße; Nährstoffe und Stoffwechselprodukte gelangen über Austauschprozesse durch die Matrix. Die Umgebung des jeweiligen Knorpels bestimmt, von wo die Versorgung erfolgt. [6]
Hyaliner Knorpel kommt beispielsweise an vielen Gelenkflächen und in Anteilen der Atemwege vor. Elastischer Knorpel enthält ausgeprägte elastische Fasern und unterstützt unter anderem die Form der Ohrmuschel. Faserknorpel verbindet Knorpelbestandteile mit kräftigen Kollagenzügen und ist etwa für Anteile der Bandscheiben bedeutsam. [6][7]
Bei vielen Knorpeln liegt außen ein gefäßhaltiges Perichondrium. Von dort gelangen Nährstoffe durch die Matrix zu den Chondrozyten. Gelenkknorpel besitzt an seiner freien Gelenkfläche kein Perichondrium und erhält Nährstoffe wesentlich aus der Synovialflüssigkeit. Faserknorpel hat typischerweise ebenfalls kein eigenes Perichondrium; sein Stoffaustausch ist an die örtliche Gewebeumgebung gebunden. [6][7][15]
Bei einem Gewebevergleich stehen die Anordnung der Zellen, die umgebende Matrix und der jeweils auffällige Faseranteil im Mittelpunkt. Rechts in der Abbildung ist hyaliner Knorpel mit seinen eingebetteten Zellen zu sehen. Die gleichmäßige Matrix unterscheidet sich deutlich von den kräftigen parallelen Faserzügen des mittleren Gewebeblocks.
Fettzellen: Speichertropfen und Wärmebildung
Weiße Adipozyten besitzen meist einen großen Lipidtropfen, der Zellkern und verbleibendes Zytoplasma an den Rand drängt. Viele solcher Zellen bilden Fettläppchen in einem Gefäß- und Bindegewebsnetz. Je nach Lage stehen Speicherung, Polsterung und Wärmeisolierung im Vordergrund. Unterhautfett und organbegleitende Fettdepots teilen dieses Grundprinzip bei unterschiedlicher räumlicher Anordnung. [1][11]
Braune Adipozyten enthalten mehrere kleinere Lipidtropfen und zahlreiche Mitochondrien. Sie sind auf Wärmebildung spezialisiert. Das Protein UCP1 ermöglicht in ihren Mitochondrien einen Protonenrückstrom, bei dem die Energie vermehrt als Wärme abgegeben wird. Die Zellstruktur passt hier zu einer anderen Arbeitsweise als die große Speichertropfenform weißer Adipozyten. [11][12]
Knochen: mineralisierte Matrix mit lebenden Zellen
Im Knochen verbindet sich eine organische Matrix mit eingelagerten Mineralbestandteilen. Kompakte äußere Anteile und ein inneres Netz aus Knochenbälkchen bilden unterschiedliche räumliche Strukturen. Die Bälkchen der Spongiosa begrenzen Räume, in denen Knochenmark liegen kann. [4]
Knochen wird über Gefäße versorgt. Seine Zellen sind in Aufbau, Erhaltung und Umbau eingebunden: Osteoblasten bilden neue Matrix, Osteozyten liegen im ausgereiften Gewebe, Osteoklasten tragen zum Knochenabbau bei. Das Zusammenspiel wird im eigenen Knochenartikel ausführlicher erklärt. [4]
Osteoblasten bilden zunächst organische Knochenmatrix, das Osteoid. Ein Teil wird in die entstehende Matrix eingebettet und entwickelt sich zu Osteozyten. Diese liegen in kleinen Räumen und stehen über Fortsätze in Verbindung. Osteoklasten bauen Knochen an geeigneten Oberflächen ab. Im kompakten Lamellenknochen organisieren Osteone die Matrix um einen Gefäßkanal; in der Spongiosa liegen die Bälkchen nahe den versorgten Markräumen. [4][15]
Reparatur verbindet Gefäße, Zellen und Matrixbildung
Nach einer Gewebeverletzung wirken Abwehrzellen, Gefäße und matrixbildende Zellen zusammen. Beschädigtes Material wird entfernt, neue Matrix entsteht und ihre Organisation verändert sich weiter. In einer Hautwunde beteiligen sich Fibroblasten am Aufbau des Ersatzgewebes; kontraktile Myofibroblasten können die Wundränder annähern. Die spätere Faserordnung prägt die Eigenschaften einer Narbe. [5][14]
Die Art der Wiederherstellung hängt vom Gewebe und seiner Versorgung ab. Knochen besitzt ausgeprägte Aufbau- und Umbauprozesse. Gefäßfreier Knorpel stellt andere Bedingungen für Zellzutritt und Reparatur. Der Vergleich führt deshalb zurück zu den verfügbaren Zellen, ihren Zugangswegen und der Matrix, die sie herstellen oder verändern. [6][15]
Das gemeinsame Prinzip erkennen
Vergleichst du Sehne, Knorpel und Knochen, stelle jeweils dieselben Fragen: Welche Zellen sind vorhanden? Wie viel Matrix liegt zwischen ihnen? Welche Fasern oder Mineralbestandteile sind erkennbar? Und wie passt deren Anordnung zur Aufgabe des Gewebes?
Dieses Vorgehen verbindet die kleinräumige Histologie mit der Anatomie ganzer Organe. Aus einer Faseransicht wird so die Vorstellung einer Zugverbindung; aus einer Knorpelansicht wird ein verständlicher Teil eines Gelenks. Das gemeinsame Bauprinzip erleichtert die Einordnung sehr unterschiedlicher Strukturen.
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- OpenStax / Rice University: Anatomy and Physiology 2e, 4.3 Connective Tissue Supports and Protects OpenStax / Rice University: Anatomy and Physiology 2e, 4.3 Connective Tissue Supports and Protects; Einleitung, Klassifikation und Zelltypen. Zugriff 07.11.2026.
- The Open University, OpenLearn: A tour of the cell, 5.1 Extracellular matrix The Open University, OpenLearn: A tour of the cell, 5.1 Extracellular matrix; Zusammensetzung, Wasserbindung, Fasern und Integrinverbindungen. Zugriff 07.11.2026.
- University of Leeds, The Histology Guide: Types of connective tissue University of Leeds, The Histology Guide: Types of connective tissue; Loose, Dense Irregular und Dense Regular Connective Tissue. Zugriff 07.11.2026.
- OpenStax / Rice University: Anatomy and Physiology 2e, 6.3 Bone Structure OpenStax / Rice University: Anatomy and Physiology 2e, 6.3 Bone Structure; Gewebestruktur, Kompakta/Spongiosa und Knochenzellen. Zugriff 07.11.2026.
- University of Leeds, The Histology Guide: Fibroblasts University of Leeds, The Histology Guide: Fibroblasts; Matrixbildung, Umbau und kontraktile Fibroblasten. Zugriff 07.11.2026.
- Columbia University, Histology Laboratory Manual: Cartilage Columbia University, Histology Laboratory Manual: Cartilage; Matrix, Gefäßfreiheit, Chondrozyten und Typen. Zugriff 07.11.2026.
- University of Leeds, The Histology Guide: Types of cartilage University of Leeds, The Histology Guide: Types of cartilage; Hyaline cartilage, Fibrocartilage, Elastic cartilage. Zugriff 07.11.2026.
- University of Leeds: Fibres University of Leeds: Fibres; Kollagenorganisation, retikuläre und elastische Fasern. Zugriff 07.11.2026. Keine veraltete Gesamtzahl von Kollagentypen übernommen.
- University of Leeds: Extracellular Matrix University of Leeds: Extracellular Matrix; Glykosaminoglykane, Proteoglykane und Hyaluronan. Zugriff 07.11.2026.
- University of Leeds: Basal Lamina University of Leeds: Basal Lamina; Organisation, Komponenten und Zellverankerung. Zugriff 07.11.2026.
- University of Leeds: Adipocytes University of Leeds: Adipocytes; weiße und braune Adipozyten, Lipidtropfen und Präparationsbild. Zugriff 07.11.2026.
- University of Minnesota / Histology Guide: VH 010 Brown Fat University of Minnesota / Histology Guide: VH 010 Brown Fat; erklärender Text zu Mitochondrien, UCP1 und Wärmebildung. Präparat von der Ratte; Textbeschreibung erläutert allgemeine Zellmerkmale und menschlichen Kontext. Zugriff 07.11.2026.
- University of Leeds: Macrophages, Mast cells and Plasma cells University of Leeds: Macrophages, Mast cells and Plasma cells; Aufnahmefunktionen, Histamin und Zelltypen. Zugriff 07.11.2026. Keine pauschale Herkunft sämtlicher Gewebemakrophagen aus adulten Monozyten behauptet.
- University of Leeds: Skin healing University of Leeds: Skin healing; Epithelverschluss, Myofibroblasten und Narbenmatrix. Zugriff 07.11.2026.
- Southern Illinois University School of Medicine: Skeletal Tissue (Bone and Cartilage) Southern Illinois University School of Medicine: Skeletal Tissue (Bone and Cartilage); Abschnitte Bone Cells, Bone Remodelling und Joints, synoviale Knorpelversorgung und Umbau. Zugriff 07.11.2026.
- Columbia University: Lymph Nodes Columbia University: Lymph Nodes; Präparate 22, 31 und 24, retikuläres Gerüst, Kapsel und Trabekel. Zugriff 07.11.2026.