Auf einen Blick
- Schleifen, Sammelrohre und Vasa recta besitzen getrennte Flüssigkeitswege.
- Salztransport und gegenläufiger Fluss organisieren das Milieu des äußeren Marks.
- Regulierte Wasserpermeabilität bestimmt, wie das Sammelrohr den osmotischen Antrieb nutzt.
Drei getrennte Röhrensysteme liegen nebeneinander
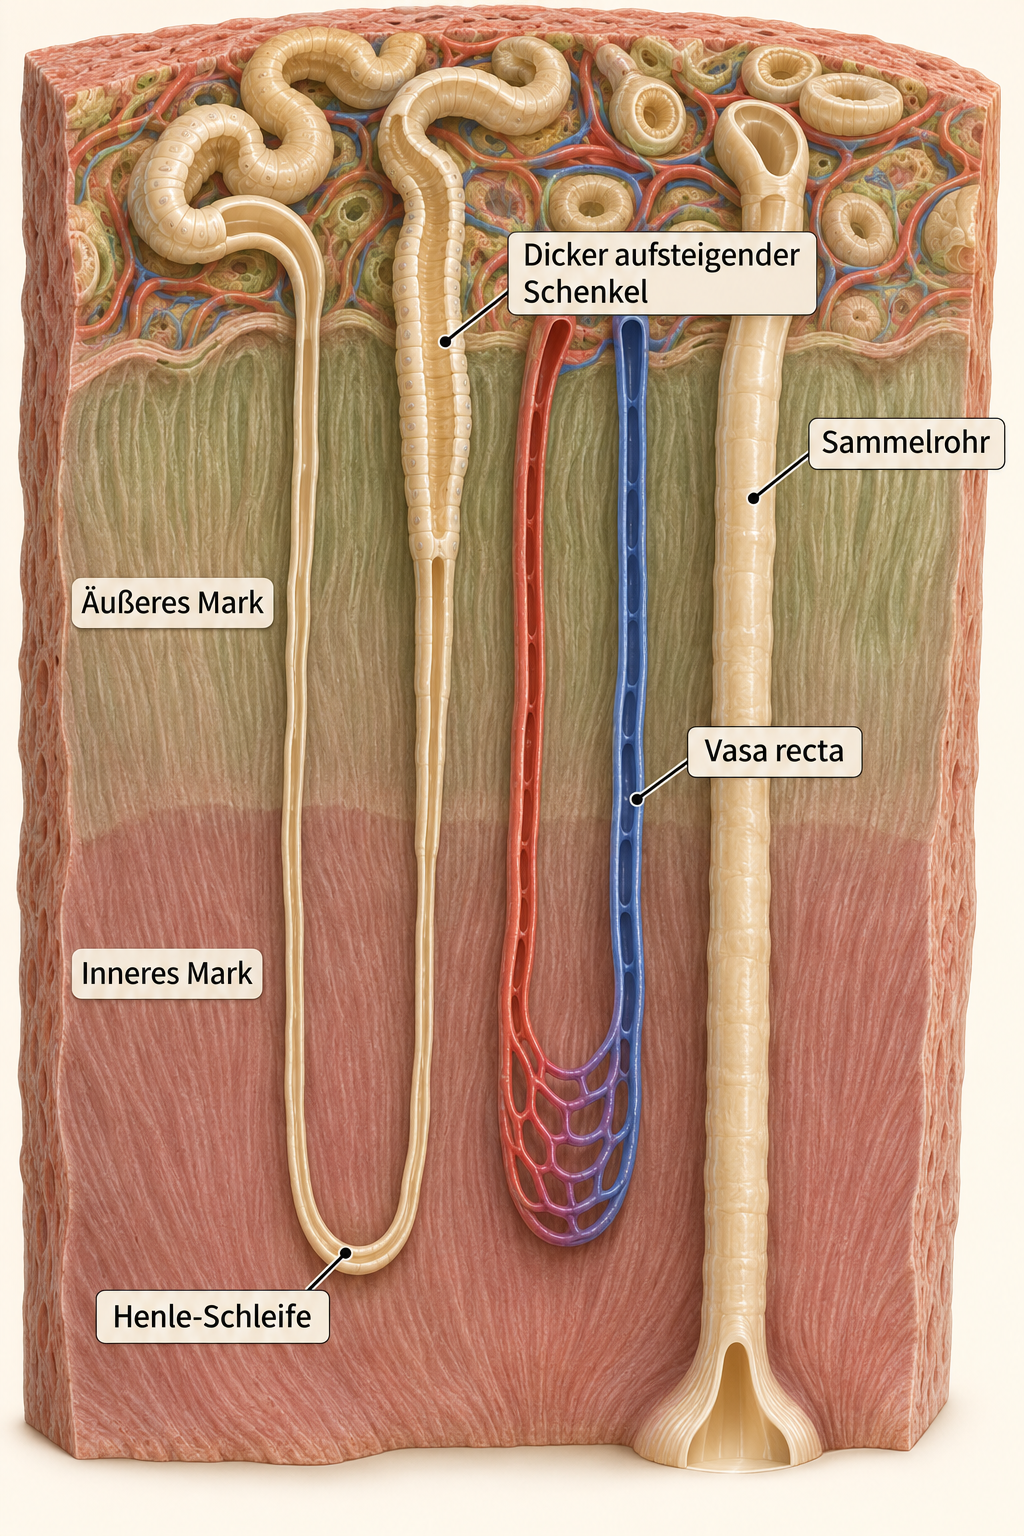
Im Nierenmark verlaufen Tubulusabschnitte, Sammelrohre und Blutgefäße dicht benachbart. In jedem System fließt eine eigene Flüssigkeit: in der Henle-Schleife Tubulusflüssigkeit, im Sammelrohr der weiterverarbeitete Harn und in den Vasa recta Blut. Zwischen ihren Wänden befindet sich das Interstitium. Über dieses Gewebe können Wasser und gelöste Stoffe ausgetauscht werden; die jeweiligen Lumina bleiben anatomisch getrennte Wege. [29] [42]
Gesundheitskapitel
Bei langen Schleifen reicht der dünne Tubulus weit in das innere Mark. Kurze Schleifen wenden früher. Der dicke aufsteigende Schenkel liegt im äußeren Mark und in der Rinde; tiefere aufsteigende Strecken langer Schleifen sind dünn. Diese Zonierung ist für das Funktionsmodell entscheidend. Ein aktiver Salztransport im dicken Abschnitt kann auf einer anderen Marktiefe wirken als Transport- und Austauschvorgänge nahe der Papille. [29] [30]
Auch die Nachbarschaft ist dreidimensional organisiert. Gefäßbündel, Zwischenräume und Sammelrohrgruppen schaffen lokale Austauschbedingungen. Ein vereinfachtes U-Rohr-Bild macht das Gegenstromprinzip sichtbar; eine räumliche Markansicht zeigt zusätzlich, weshalb verschiedene Schleifen und Gefäßstrecken unterschiedliche Nachbarn haben können. Beide Ansichten ergänzen sich: Die eine verfolgt den Flüssigkeitsweg, die andere seine Lage im Gewebe. [32] [33]
Quergefälle und Längsgefälle beantworten zwei Fragen
Auf einer bestimmten Marktiefe kann sich die Konzentration zwischen Tubuluslumen und umgebendem Interstitium unterscheiden. Das ist ein lokales Quergefälle über das Epithel. Gleichzeitig verändert sich das Milieu von der Rinden-Mark-Grenze bis zur Papille. Dieses Längsgefälle folgt der Tiefe des Organs. Für die Konzentrierung muss erklärt werden, wie fortlaufende lokale Transporte in eine räumliche Tiefenordnung eingebettet werden. [29] [31]
Der dicke aufsteigende Schenkel transportiert Natriumchlorid aus dem Lumen und besitzt eine geringe Wasserdurchlässigkeit. Das Interstitium erhält dadurch gelöste Teilchen, während die aufsteigende Tubulusflüssigkeit verdünnt wird. Benachbarte wasserpermeable Abschnitte können durch Wasserabgabe auf das veränderte Außenmilieu reagieren. So entstehen auf derselben Höhe unterschiedliche Zustände in den getrennten Flüssigkeitsräumen. [30] [29]
Eine Osmolalitätsdifferenz stellt einen Antrieb für Wasserbewegung dar, sofern die trennende Wand ausreichend wasserdurchlässig ist. Zwei Bedingungen gehören deshalb stets zusammen: die Teilchenverteilung und die Permeabilität des jeweiligen Abschnitts. Im Sammelrohr wird besonders die Durchlässigkeit für Wasser reguliert. Diese Kombination erlaubt, dass dasselbe Organ bei vergleichbarer Ausscheidung gelöster Stoffe unterschiedliche Wassermengen mit dem Endharn abgibt. [31] [34]
Gegenstrommultiplikation im äußeren Mark
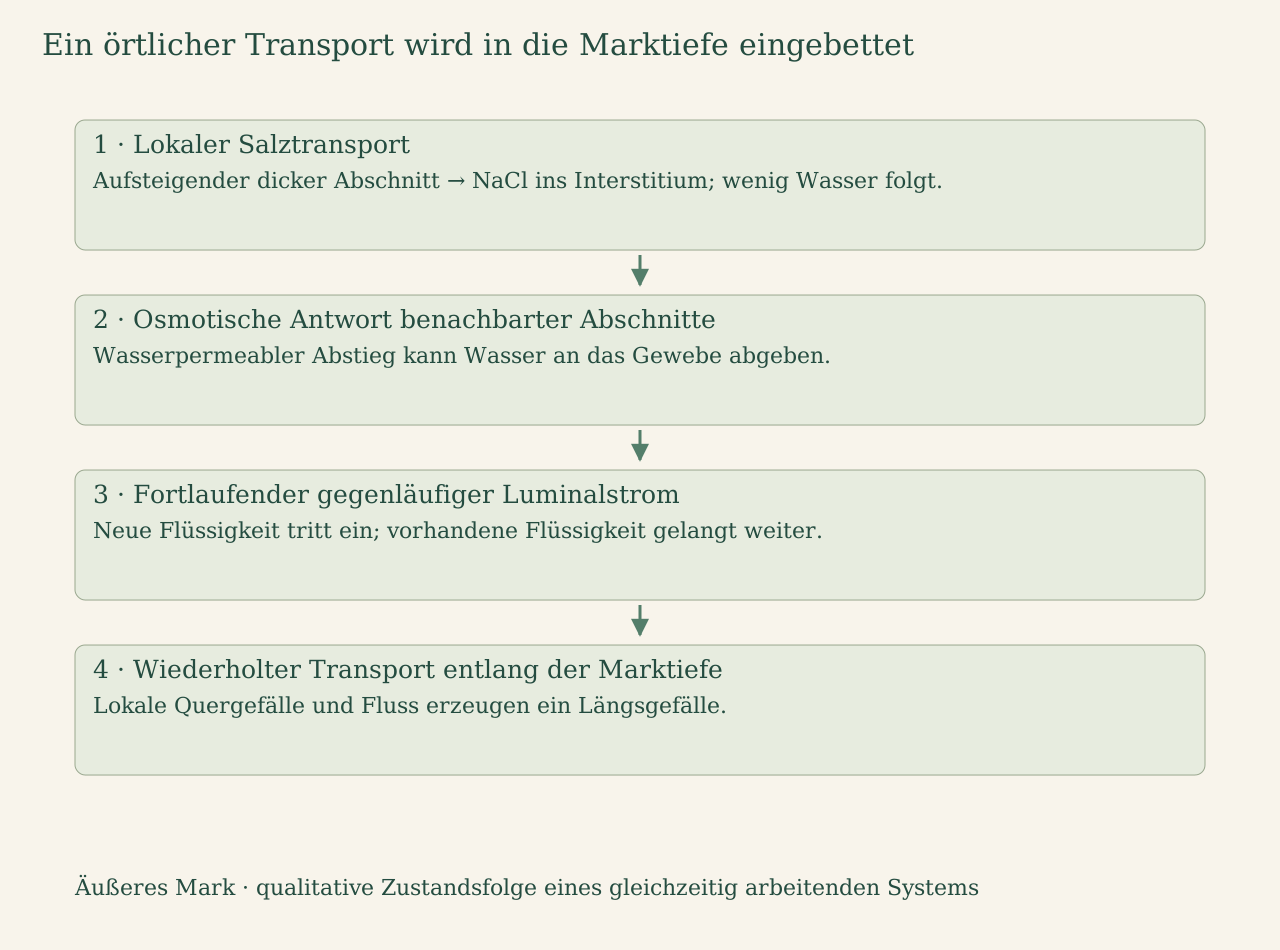
Man kann den Vorgang in einer qualitativen Zustandsfolge betrachten. Zunächst verlagert ein aufsteigender Abschnitt Salz in das Interstitium. Wasser bleibt dabei weitgehend im Lumen dieses Abschnitts. In einem benachbarten wasserpermeablen absteigenden Abschnitt kann Wasser zum nun konzentrierteren Außenmilieu austreten. Auf derselben Höhe entsteht dadurch eine geordnete Verschiedenheit zwischen aufsteigender Flüssigkeit, absteigender Flüssigkeit und Gewebe. [30] [29]
Gesundheitskapitel
Währenddessen strömt Flüssigkeit weiter: Neues Filtrat tritt von oben ein, vorhandene Flüssigkeit erreicht tiefere Abschnitte und gelangt nach der Schleifenwende wieder nach oben. Der örtliche Salztransport arbeitet fortlaufend unter veränderten Lieferbedingungen. Die Wiederholung von Transport und Fluss verknüpft viele kleine Höhenschritte. Daraus kann ein ausgeprägtes Gefälle entlang der Marktiefe entstehen, obwohl jeder einzelne lokale Transportschritt einen begrenzten Quervergleich herstellt. [29] [31]
Das Wort Multiplikation beschreibt diese räumliche Verstärkung durch gegenläufigen Fluss und wiederholte Austauschschritte. Die Energie wird über aktiven epithelialen Transport eingebracht. Die U-förmige Wegführung organisiert, wie unterschiedlich zusammengesetzte Flüssigkeiten nebeneinander vorbeifließen. Ein didaktischer Ablauf kann deshalb nacheinander Transport, osmotische Wasserbewegung, Weiterstrom und erneuten Transport zeigen. Die reale Niere führt diese Vorgänge gleichzeitig in einem dreidimensionalen Gewebe aus. [30] [33]
Die Schleife besitzt segmentabhängige Eigenschaften
Untersuchungen menschlicher Nierenpräparate zeigen im inneren Mark Gefäßbündelregionen neben Gruppen zusammenlaufender Sammelrohre. AQP1-positive lange absteigende Schenkel liegen bevorzugt an den Bündeln; ihre Markierung nimmt zur Tiefe hin ab. Auch UT-B-markierte Gefäßstrecken verändern ihre Verteilung. Zwischen den Sammelrohrgruppen verläuft ein eigenes Kapillarnetz. Diese Befunde geben dem Gegenstrommodell eine konkrete menschliche Gewebeanatomie: Die verfügbaren Membranwege und die Abstände zwischen den Röhren ändern sich innerhalb derselben Markregion. [57]
Die Ausstattung mit Kanälen, Transportern und Epithelkontakten bestimmt die Transportleistung eines Schenkels. AQP1 ermöglicht in geeigneten dünnen absteigenden Abschnitten eine hohe Wasserpermeabilität. Seine Verteilung unterscheidet sich zwischen Schleifentypen, Segmenten und untersuchten Säugetierarten. Diese örtlichen Unterschiede prägen den Wassertransport entlang der Schleife. [29] [31]
Im dicken aufsteigenden Schenkel ist die Rückgewinnung von Salz ein wesentlicher Beitrag zum Verdünnen der Tubulusflüssigkeit. Wasser folgt dort nur in geringem Umfang. Diese räumliche Trennung von Salz- und Wasserbewegung schafft die Voraussetzung dafür, dass weiter distal eine relativ verdünnte Flüssigkeit ankommen kann. Der spätere Verlauf hängt anschließend davon ab, welche Durchlässigkeit der Endstrecke zur Verfügung steht. [29] [30]
Die Transportabschnitte stehen auch unter hormonellem Einfluss. Vasopressin kann mehrere renale Zielproteine regulieren, darunter Wasserkanäle des Sammelrohrs und Transportvorgänge, die das Markmilieu unterstützen. Für das Verständnis lässt sich der Zusammenhang in zwei Aufgaben gliedern: ein geeignetes osmotisches Umfeld aufbauen und den Zugang des Sammelrohrwassers zu diesem Umfeld verändern. Beide tragen zur variablen Wasserabgabe bei. [31] [34]
Vasa recta erhalten das Milieu und führen Wasser ab
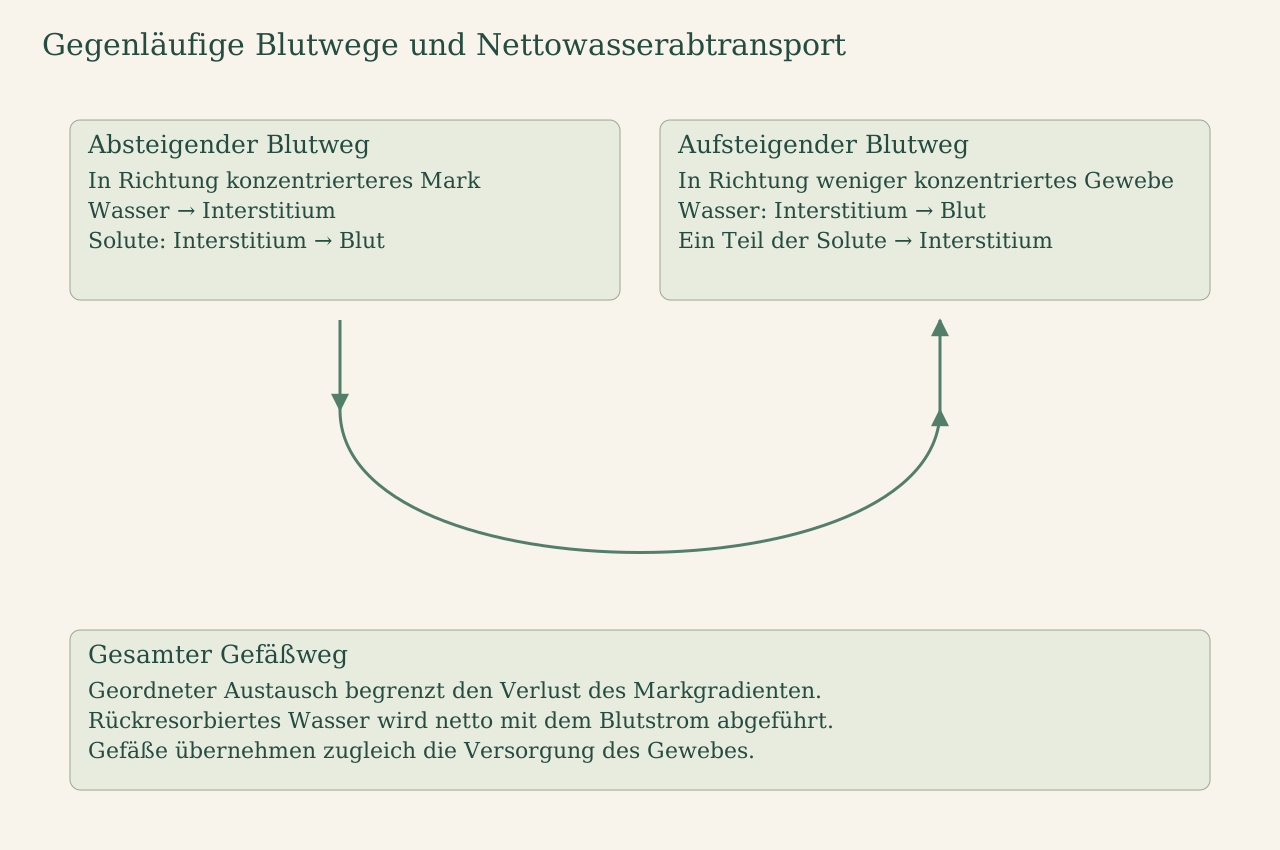
Das Gewebe benötigt einen fortlaufenden Blutstrom zur Versorgung und zum Abtransport rückgewonnenen Wassers. Gleichzeitig würde ein sehr ausgeprägter ungerichteter Austausch das Konzentrationsgefälle abtragen. Die Vasa recta verbinden diese Anforderungen durch lange gegenläufige Strecken. Absteigendes Blut trifft auf zunehmend konzentriertes Gewebe; aufsteigendes Blut gelangt anschließend wieder in weniger konzentrierte Bereiche. [30] [42]
Gesundheitskapitel
Auf dem Weg nach unten verliert das Blut osmotisch Wasser und nimmt gelöste Stoffe auf. Beim Rückweg ändern sich die Austauschbedingungen in umgekehrter Richtung: Wasser wird aufgenommen und ein Teil der zuvor aufgenommenen Stoffe kann an das Interstitium zurückgegeben werden. Die räumliche Nähe gegenläufiger Gefäßstrecken unterstützt dadurch die Erhaltung von Stoffen im Mark. [30] [32]
Über den gesamten Gefäßweg wird dennoch rückresorbiertes Wasser aus dem Mark abgeführt. Gegenstromaustausch bedeutet deshalb einen geordneten Austausch mit einer Nettobilanz. Seine Wirksamkeit hängt unter anderem von Durchblutung, Gefäßpermeabilität und räumlicher Anordnung ab. Der Gefäßweg stellt dabei eine andere Aufgabe als die aktiv transportierende Schleife bereit: Er trägt zum Erhalt und zur Versorgung des Milieus bei und nimmt den Wasserstrom des Gewebes auf. [33] [42]
Harnstoff zirkuliert zwischen mehreren Markräumen
Harnstoff entsteht überwiegend bei der Verarbeitung von Stickstoff in der Leber und gelangt mit dem Blut zur Niere. Entlang des Nephrons verändert sich sein Transport in Abhängigkeit vom jeweiligen Abschnitt. Wenn im Sammelrohr Wasser entzogen wird, kann seine luminale Konzentration steigen. Der terminale Abschnitt im inneren Mark besitzt spezialisierte Harnstoffwege, die einen raschen Austausch mit dem umgebenden Gewebe ermöglichen. [22] [34]
Im terminalen inneren Sammelrohr liegt UT-A1 vor allem apikal, UT-A3 überwiegend basolateral; seine Verteilung kann sich unter Regulation verändern. Vasopressin fördert die Harnstoffpermeabilität dieser Endstrecke. Dadurch trägt Harnstoff zur erhöhten Teilchenkonzentration des inneren Markinterstitiums bei. Von dort kann er wiederum andere Tubulus- und Gefäßabschnitte erreichen. Der Stoff wird so innerhalb der Niere mehrfach zwischen Räumen umverteilt. [22] [32]
UT-A2 kommt in bestimmten dünnen Schleifenabschnitten vor. UT-B findet sich unter anderem an absteigenden Vasa recta und an Erythrozyten. Diese Ausstattung unterstützt die tubulären und vaskulären Recyclingwege. Die örtliche Richtung eines passiven Harnstofftransports ergibt sich aus dem jeweiligen Konzentrationsgefälle. Ein schematischer Rückweg macht das Recyclingprinzip sichtbar; einzelne Transportproteine müssen dabei jeweils am tatsächlich passenden Kompartiment liegen. [33] [34]
Das Sammelrohr nutzt die Marktiefe als veränderliche Endstrecke
Der Stoffstrom durch eine Epithelwand hängt neben dem Konzentrationsunterschied auch von der verfügbaren Austauschfläche und ihrer Permeabilität ab. Während Flüssigkeit luminal weiterläuft, verändert sich ihre Zusammensetzung deshalb fortlaufend. Gleichzeitig strömt auf der Gefäßseite Blut nach. Das Markmilieu ist ein dynamischer Zustand aus Zufluss, Austausch und Abfluss. Die längliche Architektur hält diese bewegten Systeme über viele benachbarte Stellen in Kontakt und ermöglicht dabei unterschiedliche Bedingungen in verschiedenen Tiefen. [29] [31]
Unter Antidiurese wird die Wasserpermeabilität des Sammelrohrepithels erhöht. Wasser kann aus dem Lumen in Richtung des konzentrierteren Markgewebes gelangen und wird anschließend vom Blutstrom aufgenommen. Während die Flüssigkeit nach unten weiterfließt, trifft sie auf unterschiedliche osmotische Umgebungen. Der verbleibende Harn kann dadurch mit kleinerer Wassermenge und höherer Konzentration an ausscheidungspflichtigen Teilchen abgegeben werden. [31] [30]
Bei Wasserdiurese bleibt die regulierte luminale Wasserpermeabilität geringer. Eine größere Wassermenge durchläuft die Endstrecke und wird mit verdünnterem Harn ausgeschieden. Das erklärt die Bedeutung der Verbindung zwischen vorgeschalteter Verdünnung und nachgeschalteter variabler Rückgewinnung. Die genaue AQP2-Einlagerung und die hypothalamische Steuerung sind auf den Seiten zur Rückresorption und Wasserregulation dargestellt. [31] [29]
Im inneren Mark greifen Harnstoff, dünne Schleifen, Gefäßaustausch und besondere Nachbarschaften ineinander. Wie diese Beiträge die gesamte dortige Konzentrationsleistung quantitativ erklären, bleibt ein aktives Forschungsfeld. Das äußere Mark lässt sich gut über aktive Salzrückgewinnung und Gegenstrommultiplikation erschließen. Die innere Region benötigt zusätzlich ihre eigene Transport- und Raumarchitektur; neue Rechenmodelle werden an Messungen und anatomischen Befunden geprüft. [29] [30]
Ein Konzentrationsbild lässt sich über vier Wege erschließen
Zum Lesen einer Markabbildung helfen vier aufeinanderfolgende Fragen. Zuerst wird der Tubulusweg von der Rinde über seine Schleife zurückverfolgt. Dann folgt der getrennte Sammelrohrweg zur Papille. Anschließend wird der ab- und aufsteigende Blutweg markiert. Schließlich werden die Austauschpfeile zwischen diesen Röhren und dem Interstitium ergänzt. Diese Reihenfolge hält Flussrichtung, Transport und räumliche Nachbarschaft übersichtlich. [22] [29]
Die Wasserbilanz ergibt sich aus allen Wegen gemeinsam. Schleifenabschnitte verändern Salz- und Wasserverteilung, Harnstoff ergänzt das innere Milieu, Gefäße übernehmen Versorgung und Abtransport, das Sammelrohr bestimmt einen großen Teil der variablen Endabgabe. So verbindet ein fein gegliedertes Gewebe die Filtration des Blutes mit einer anpassbaren Ausscheidung von Wasser und gelösten Stoffen. [30] [42]
Bauteile und Funktionen im Zusammenhang
| Bauteil oder Vorgang | Funktion im Zusammenhang |
|---|---|
| Quergefälle | Lokales Quergefälle Unterschiede zwischen Lumen und Interstitium auf derselben Höhe entstehen durch Transporteigenschaften und Stoffbewegung. [29] [31] |
| Längsgefälle | Die Zusammensetzung des Markmilieus verändert sich entlang der Tiefe. Fortlaufender Gegenstrom verbindet viele lokale Austauschstellen. [29] [30] |
| Dicker Aufstieg | Aktive Salzrückgewinnung bei geringer Wasserpermeabilität unterstützt äußere Markkonzentrierung und luminale Verdünnung. [30] [31] |
| Vasa recta | Geordneter Austausch erhält das Milieu, während rückresorbiertes Wasser netto abgeführt wird. [30] [32] [33] |
| Harnstoffwege | Terminales Sammelrohr, bestimmte dünne Schleifen und Gefäße besitzen unterschiedliche UT-Proteine und Recyclingbeiträge. [22] [34] |
| Sammelrohr | Regulierte Wasserpermeabilität bestimmt, wie stark der verbleibende Harn vom äußeren Milieu osmotisch beeinflusst wird. [31] |
Begriffe zum Weiterlesen
- Multiplikation
- Räumliche Verknüpfung lokalen Transports mit gegenläufigem Fluss; besonders gut am äußeren Mark erklärbar. [29] [30]
- Gegenstromaustausch
- Austausch zwischen gegenläufigen Wegen, der Stoffe im Mark erhält und Nettowasserabtransport ermöglicht. [30]
- UT-A1 / UT-A3
- Harnstoffproteine des terminalen inneren Sammelrohrs mit regulierbarer Verteilung und Aktivität. [22] [31]
- UT-B
- Harnstoffweg unter anderem an absteigenden Vasa recta und Erythrozyten. [32] [34]
- Antidiurese
- Zustand mit verstärkter Wassererhaltung durch geeignete Sammelrohrpermeabilität und vorhandenen osmotischen Antrieb. [31]
Häufige Fragen
Was unterscheidet Multiplikation und Gegenstromaustausch?
Die Multiplikation verbindet aktiven Salztransport mit gegenläufigem Tubulusfluss und erzeugt besonders im äußeren Mark ein Tiefengefälle. Die Vasa recta tauschen entlang ihrer gegenläufigen Blutwege Wasser und gelöste Stoffe aus. Sie unterstützen den Erhalt des Milieus und transportieren rückgewonnenes Wasser netto ab. [29] [30] [42]
Welche Rolle spielt das Sammelrohr?
Seine regulierte Wasserpermeabilität bestimmt, wie gut das Wasser des verbleibenden Harns den osmotischen Antrieb des Markmilieus nutzen kann. Bei Antidiurese gelangt mehr Wasser durch das Epithel in Richtung Interstitium und Blut. Bei geringerer luminaler Permeabilität verbleibt mehr Wasser im später ausgeschiedenen Harn. [29] [30] [31]
Hier geht das Wissen weiter
Quellen und Weiterlesen
- Urea and Ammonia Metabolism and the Control of Renal Nitrogen Excretion (2015) Urea Transport; Urea Handling; Rapid Regulation; Ammonia introduction. DOI 10.2215/CJN.10311013. Abgerufen am 07.11.2026.
- Nawata, Pannabecker: Mammalian urine concentration: a review of renal medullary architecture and membrane transporters (2018) Introduction; outer medullary concentration; architecture and descending thin limb AQP1 distribution. DOI 10.1007/s00360-018-1164-3. Abgerufen am 07.11.2026.
- Sands, Layton: The Physiology of Urinary Concentration: an Update (2009) Countercurrent multiplication/exchange; Urea Recycling; Fig. 3. DOI 10.1016/j.semnephrol.2009.03.008. Abgerufen am 07.11.2026.
- Knepper, Kwon, Nielsen: Molecular Physiology of Water Balance (2015) Vasopressin Receptors; Aquaporins; Vasopressin-regulated Urea Channel, Zeilen129–198. DOI 10.1056/NEJMra1404726. Abgerufen am 07.11.2026.
- Urea transporter proteins as targets for small-molecule diuretics UTs in kidney function: UT-A1/3, UT-A2, UT-B and vascular exchange. Abgerufen am 07.11.2026.
- Urea Transporter Physiology Studied in Knockout Mice Physiological Role of UTs: tubular/vascular recycling and experimental limitations. Abgerufen am 07.11.2026.
- Molecular Mechanisms of Urea Transport in Health and Disease UT localization and vasopressin regulation of UT-A1. Abgerufen am 07.11.2026.
- Edwards, Kurtcuoglu: Renal blood flow and oxygenation (2022) Anatomy; autoregulation; hormonal signals; Oxygenation/Regulation mechanisms and Fig.2. DOI10.1007/s00424-022-02690-y. Abgerufen am 07.11.2026.
- Wei, Rosen, Dantzler, Pannabecker: Architecture of the human renal inner medulla and functional implications (2015) Abstract; Methods; Results: Two lateral regions of the inner medulla und CD cluster region; Fig.3–12. DOI10.1152/ajprenal.00236.2015. Abgerufen am 07.11.2026.