Auf einen Blick
- Reninzellen verknüpfen Gefäßwand-, Tubulus- und sympathische Information.
- Renin spaltet Angiotensinogen; ACE bildet daraus über Angiotensin I das Peptid Angiotensin II.
- Gefäßtonus, Natriumtransport, Aldosteron und Wasserregulation antworten an unterschiedlichen Zielorten.
Am Gefäßpol treffen mehrere Informationswege zusammen
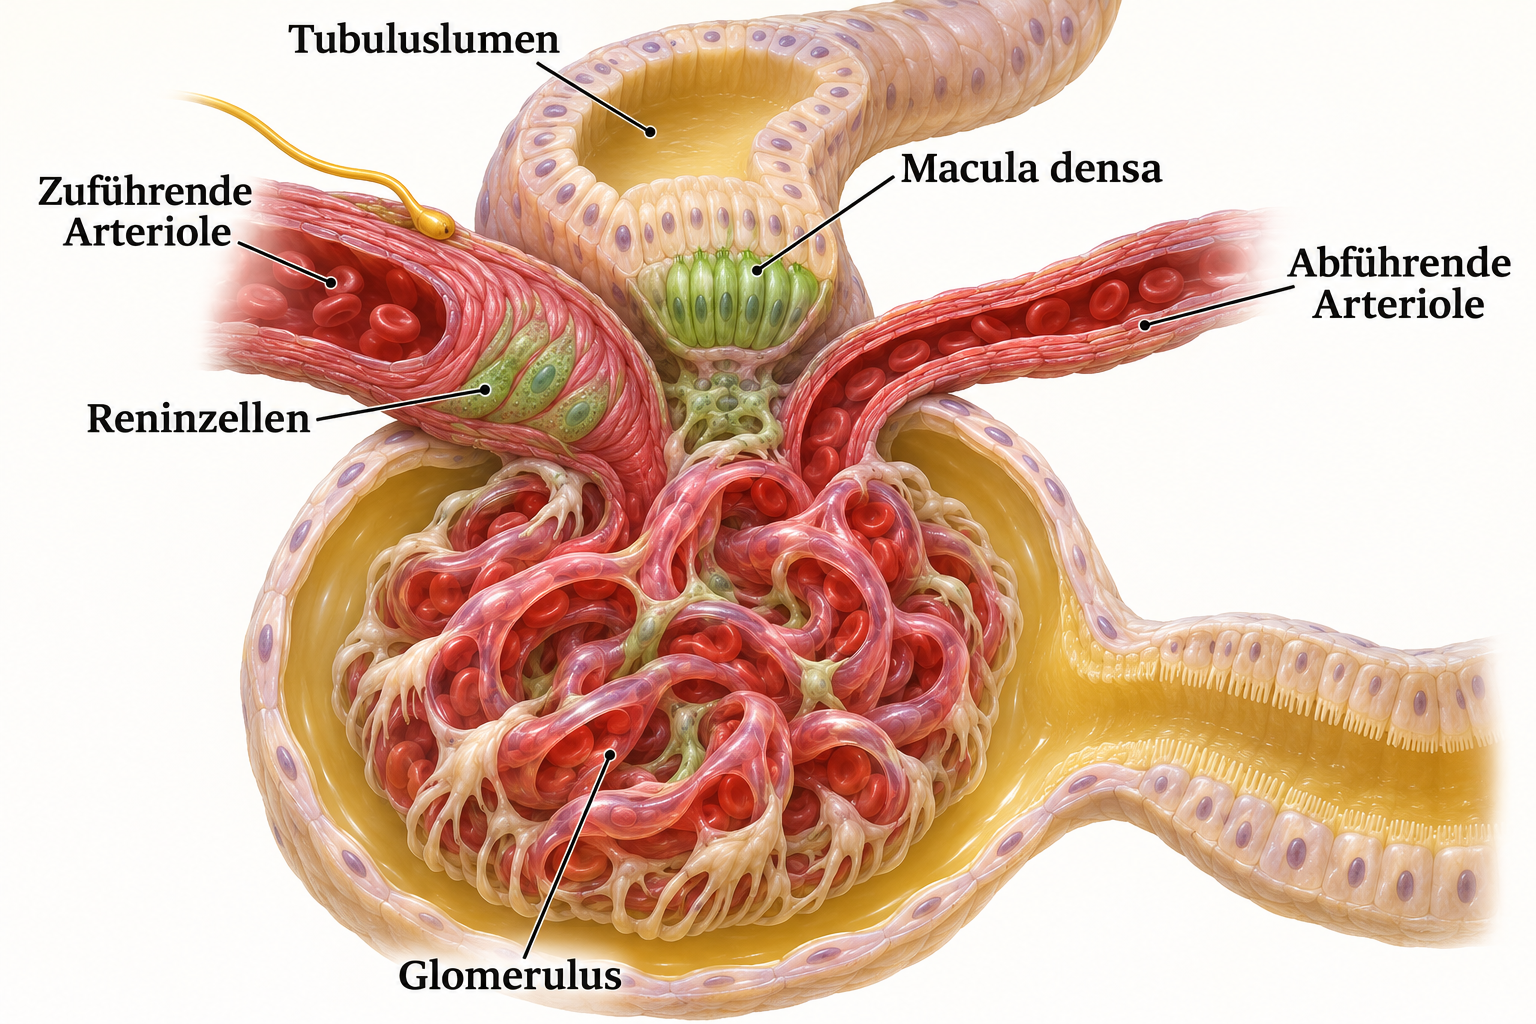
Jedes Nierenkörperchen besitzt einen Gefäßpol mit zuführender und abführender Arteriole. Hier kehrt ein weiter stromabwärts gelegener Tubulusabschnitt in die Nähe seines eigenen Glomerulus zurück. Seine spezialisierten Macula-densa-Zellen liegen an der luminalen Seite des Tubulus. In der Wand der vor allem zuführenden Arteriole befinden sich granuläre, reninbildende Zellen. Dazwischen und angrenzend liegt extraglomeruläres Mesangialgewebe. [12] [43]
Gesundheitskapitel
Gesundheitskapitel
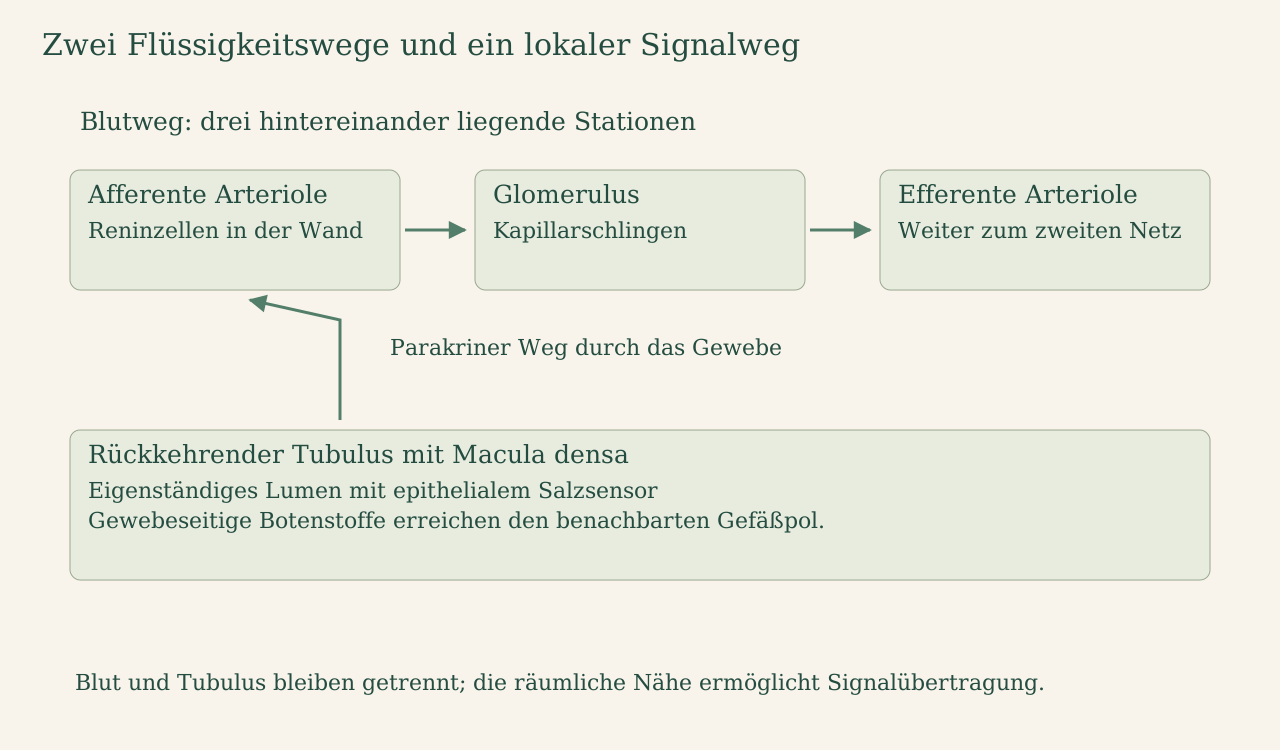
Diese Anordnung schafft eine räumliche Nachbarschaft zwischen Gefäßwand und Tubulusinformation. Die granulären Zellen gehören zur spezialisierten Gefäßwand und können Renin in die Blutbahn abgeben. Die Macula densa verarbeitet dagegen die Zusammensetzung der vorbeifließenden Tubulusflüssigkeit. Für den Einstieg ist deshalb die Trennung von zwei Räumen hilfreich: Der Blutweg bringt Perfusionsinformation an die Gefäßwand; das Tubuluslumen liefert ein spätes Rückmeldesignal aus der Verarbeitung des Filtrats. [12] [13]
Aus dieser Nachbarschaft entstehen mehrere Regelwege. Die tubuloglomeruläre Rückkopplung passt örtlich den afferenten Gefäßtonus an. Die Reninfreisetzung eröffnet außerdem eine weiter reichende hormonelle Antwort. Beide Wege nutzen denselben anatomischen Begegnungsort, besitzen jedoch unterschiedliche Ausgänge und Zeithorizonte. Die genaue lokale Durchflussrückkopplung wird im Beitrag zur Nierenkreislaufregelung vertieft. [43] [42]
Drei Eingangssignale erreichen die Reninzellen
Ein Eingang betrifft den Perfusionszustand des reninbildenden Gefäßabschnitts. Sinkende Druck- beziehungsweise Wandspannungsinformation kann die Freisetzung von Renin fördern. Die Zellen verknüpfen mechanische Bedingungen mit ihrem sekretorischen Programm. Untersuchungen zur molekularen Druckwahrnehmung zeigen ein Netzwerk aus Zellkontakten, Zytoskelett und Genregulation; einzelne experimentell identifizierte Komponenten stammen aus Tier- und Zellmodellen. [12] [14]
Ein zweiter Eingang kommt von der Macula densa. Eine verringerte NaCl-Lieferung beziehungsweise deren veränderte Aufnahme wird dort in lokale Botenstoffsignale übersetzt. Unter entsprechenden Bedingungen fördert ein Prostaglandinweg die Reninantwort benachbarter granulärer Zellen. So kann die Niere auf das Ergebnis der vorangegangenen Filtration und Rückresorption reagieren. Die luminale Information enthält daher bereits den Einfluss mehrerer vorgeschalteter Nephronabschnitte. [12] [43]
Als dritter Eingang wirkt die sympathische Anregung über β-adrenerge Rezeptoren der Reninzellen. Sie koppelt die Nierenantwort an den Zustand der übergeordneten Kreislaufregulation. In der Zelle gehört cAMP zu den wichtigen Signalen für Reninbildung und -freisetzung. Die drei Eingänge können sich ergänzen; ihre jeweilige Stärke hängt vom gesamten physiologischen Zustand ab. Ein einzelnes Organ erhält dadurch Informationen aus verschiedenen funktionellen Blickrichtungen. [13] [14]
Enzym und Substrat besitzen unterschiedliche Ursprünge
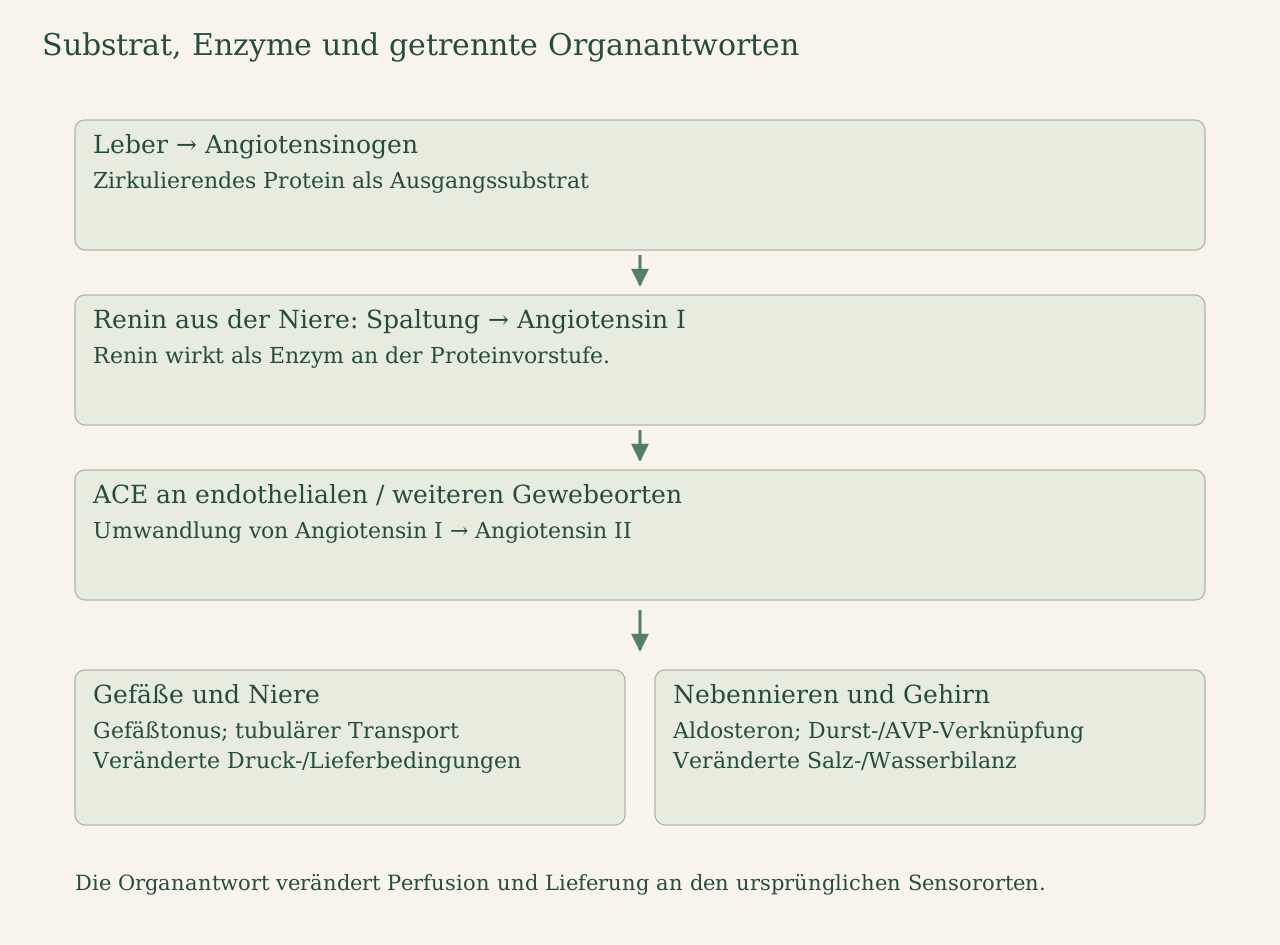
Das wichtigste zirkulierende Ausgangssubstrat ist Angiotensinogen, ein überwiegend von der Leber bereitgestelltes Protein. Renin spaltet daraus das Peptid Angiotensin I ab. An diesem Reaktionsschritt wirkt Renin als Enzym: Es ermöglicht die Umwandlung des Substrats. Die nachfolgenden Peptide werden aus der vorhandenen Proteinvorstufe herausgelöst und anschließend weiterverarbeitet. [13] [14]
Gesundheitskapitel
Das Angiotensin-konvertierende Enzym ACE wandelt Angiotensin I in Angiotensin II um. ACE kommt an verschiedenen endothelialen Oberflächen und in weiteren Geweben vor. Die ausgedehnte Lungenstrombahn ist ein wichtiger Kontaktort des zirkulierenden Systems; auch andere Gefäßgebiete tragen zur Umwandlung bei. Ein anatomisch genauer Kaskadenplan zeigt deshalb die Leber als wesentlichen Substratursprung, die Niere als Reninquelle und mehrere endotheliale Umwandlungsorte. [14] [13]
Angiotensin II erreicht über den Kreislauf verschiedene Zielgewebe. Dort bestimmt die Ausstattung mit Rezeptoren und nachgeschalteten Signalwegen die Antwort. Zusätzlich werden Komponenten des Renin-Angiotensin-Systems innerhalb einzelner Gewebe gebildet und verarbeitet. Für das Verständnis der Gesamtregulation genügt zunächst der gut überschaubare Blutweg; lokale Systeme ergänzen diese Ebene um gewebespezifische Bedingungen und Wirkungen. [13] [18]
Gefäßantworten verändern Druck und Verteilung
Angiotensin II kann über AT1-Rezeptoren den Tonus glatter Gefäßmuskulatur erhöhen. Ein veränderter Widerstand beeinflusst die Verteilung des Blutstroms und den arteriellen Druck. In der Niere ist die Lage des Widerstands besonders bedeutsam: Vor und hinter den glomerulären Kapillaren liegen regulierbare Gefäßabschnitte. Ihre unterschiedliche Antwort verändert das Verhältnis zwischen Plasmafluss und Filtration. [42] [13]
Unter geeigneten Bedingungen kann eine stärkere efferente Widerstandswirkung den glomerulären Druck gegenüber einem sinkenden Zufluss stützen. Dabei verändern sich zugleich der Plasmafluss und der Konzentrationsanstieg der Plasmaproteine entlang der Filtration. Das Ergebnis hängt vom Ausgangszustand und von der Stärke der Gefäßantwort ab. Die physiologische Wirkung ergibt sich somit aus mehreren gekoppelten Größen: Zufluss, Abflusswiderstand, Filtrationsdruck und onkotischer Gegenkraft. [42] [45]
Lokale Faktoren wie Stickstoffmonoxid und Prostaglandine gestalten die Gefäßantwort mit. Sympathische Aktivität und andere Hormone wirken ebenfalls auf die Nierendurchblutung. Angiotensin II ist dadurch in eine regelnde Umgebung eingebettet. Das erklärt, weshalb ein Wirkstoff oder Botenstoff in einem isolierten Gefäß eine klare Reaktion auslösen kann, während die Organantwort im lebenden Körper von mehreren gleichzeitig aktiven Partnern geprägt wird. [43] [14]
Die Niere verbindet Kreislaufantwort und Natriumbilanz
In den Tubuli beeinflusst Angiotensin II unter anderem die Rückgewinnung von Natrium. Eine wichtige Zielregion ist der proximale Tubulus mit seinen luminalen Aufnahmewegen und der basolateralen Natriumpumpe. Werden Transportaktivitäten angepasst, verändern sich die nachfolgenden Lieferungen an weiter distal gelegene Abschnitte. Damit wirkt die Kaskade sowohl auf die Filtrationsbedingungen als auch auf die Verarbeitung der entstandenen Tubulusflüssigkeit. [13] [18]
Die Bilanz von Natrium beeinflusst längerfristig das extrazelluläre Flüssigkeitsvolumen. Wasserverteilung und Wasseraufnahme werden zugleich über weitere Systeme reguliert. Deshalb ist es hilfreich, zwei Verbindungen nebeneinander zu verfolgen: die Änderung des Gefäßwiderstands und die Änderung der renalen Stoffausscheidung. Eine Kreislaufantwort kann unmittelbar den Tonus verändern und zusätzlich über die Bilanz von Salz und Wasser den Füllungszustand des Systems beeinflussen. [14] [36]
Angiotensin II steht außerdem mit zentralen Durst- und Vasopressinwegen in Verbindung. Diese beeinflussen die Wasseraufnahme und die Wasserdurchlässigkeit später Nephronabschnitte. Die einzelnen Ausgänge ergänzen sich funktionell: Gefäßtonus verändert Strömungsbedingungen, Natriumtransport die äußere Stoffbilanz und Vasopressin die Abgabe von Wasser. Der Beitrag zur Wasser- und Elektrolytregulation erläutert die zugehörige Osmosensorik ausführlicher. [31] [13]
Aldosteron eröffnet einen zweiten Hormonweg
In der Nebennierenrinde fördert Angiotensin II die Aldosteronfreisetzung. Aldosteron ist ein Steroidhormon, das die Nebennierenzelle enzymatisch aus einer Cholesterinvorstufe bildet. Das Peptid Angiotensin II wirkt dabei als anregendes Signal am Rezeptor. Anschließend gelangt Aldosteron zu seinen Zielzellen und beeinflusst dort über den Mineralokortikoidrezeptor unter anderem den epithelialen Transport. [14] [15]
Der Mineralokortikoidrezeptor kann auch Glucocorticoide binden. In geeigneten epithelialen Zielzellen schafft das Enzym 11β-Hydroxysteroid-Dehydrogenase Typ 2 eine lokale Selektivität: Es wandelt Cortisol in Cortison um und begrenzt dadurch den Zugang des aktiven Glucocorticoids zum Rezeptor. Der Rezeptor, die örtliche Enzymausstattung und die nachgeschalteten Transportproteine bilden zusammen eine funktionelle Einheit. [15] [16]
Diese Selektivität ist gewebespezifisch. Mineralokortikoidrezeptoren kommen auch außerhalb der klassischen aldosteronsensitiven Epithelien vor; dort kann die lokale Steroidumgebung anders aussehen. Am distalen Nephron werden über die Aldosteronantwort unter anderem Natriumaufnahme und Kaliumabgabe angepasst. Die vollständige Funktionsantwort hängt zusätzlich davon ab, wie viel Natrium und Flüssigkeit die Zielregion tatsächlich erreichen. [17] [18]
Die Ausgangsbedingungen bestimmen das Ergebnis
Die Zielwege besitzen unterschiedliche zeitliche Antwortmöglichkeiten. Eine Gefäßmuskelzelle kann ihren Tonus über vorhandene Rezeptoren und intrazelluläre Signale verändern. Bei epithelialen Aldosteronantworten gehören zusätzlich Rezeptorbindung, Regulation von Proteinen und die Verfügbarkeit von Transportwegen zum Ablauf. Eine fortbestehende Aktivierung kann deshalb über den ersten Druckeffekt hinaus die Verarbeitung der Tubulusflüssigkeit verändern. Im Funktionsschema lohnt sich eine eigene Zeitspur für Gefäßantwort und Stoffbilanz: Beide werden durch denselben Ausgang angestoßen und beeinflussen anschließend unterschiedliche Seiten des Kreislaufzustands. [13] [15]
Eine volumenbezogene Anregung und eine kaliumbezogene Anregung können beide mit Aldosteron verbunden sein. Bei verminderter Kreislauffüllung werden vorgeschaltete Natriumrückgewinnung und Gefäßantworten mit einbezogen. Bei einer erhöhten Kaliumbelastung ist die verstärkte distale Kaliumausscheidung ein wesentlicher Ausgang. Die unterschiedlichen Begleitsignale und Lieferbedingungen erklären, weshalb derselbe Hormonname in mehreren physiologischen Situationen auftaucht. [35] [36]
Verbessern sich Perfusion und bilanzbezogene Bedingungen, verändern sich auch die ursprünglichen Reninreize. Die Rückkopplung verläuft damit über den tatsächlichen Zustand von Gefäßwand, Tubuluslieferung und sympathischer Aktivität. Direkte zelluläre Kurzschleifen werden experimentell weiter präzisiert. Für das Organverständnis steht die nachvollziehbare Gesamtverbindung im Vordergrund: Die bewirkte Antwort verändert die Größen, die zuvor zur Aktivierung beigetragen haben. [12] [43]
Das System lässt sich beim Lesen von vier Fragen her erschließen: Woher stammt das Ausgangssignal? Welcher enzymatische Schritt folgt? Welches Zielgewebe antwortet? Welche Ausgangsgröße verändert sich dadurch? Ein klar beschriftetes Schema trennt deshalb Substrate, Enzyme, Hormone und Organantworten. So wird die Kaskade zu einer verständlichen Verbindung zwischen lokaler Niereninformation und der Regulation des gesamten Kreislaufs. [14] [44]
Bauteile und Funktionen im Zusammenhang
| Bauteil oder Vorgang | Funktion im Zusammenhang |
|---|---|
| Granuläre Zelle | Spezialisierte Gefäßwandzelle mit Reninfreisetzung. Perfusionsinformation und adrenerge Signale verbinden lokale und zentrale Kreislaufbedingungen. [12] |
| Macula densa | Luminale Salzverarbeitung erzeugt lokale Botenstoffsignale zum Gefäßpol. TGF und Reninantwort besitzen unterschiedliche Ausgänge. [43] [49] |
| Vorstufe | Angiotensinogen Überwiegend aus der Leber bereitgestelltes Protein; Renin löst daraus Angiotensin I. [13] [14] |
| ACE | Enzymatische Weiterverarbeitung zu Angiotensin II an verschiedenen endothelialen und weiteren Gewebeorten. [14] |
| Zielgewebe | Vaskuläre, tubuläre, adrenale und zentrale Antworten verändern verschiedene Größen desselben Kreislauf- und Bilanzsystems. [13] [42] |
| MR-Zugang | MR-Selektivität Lokale 11β-HSD2-Aktivität begrenzt in geeigneten Epithelzellen den Cortisolzugang zum Mineralokortikoidrezeptor. [15] [16] [17] |
Begriffe zum Weiterlesen
- Renin
- Proteinspaltendes Enzym aus spezialisierten Nierengefäßzellen; beginnt die zirkulierende Angiotensinkaskade. [12] [14]
- Angiotensin I
- Durch Reninspaltung entstehende Peptidvorstufe für die ACE-vermittelte Weiterverarbeitung. [13]
- Angiotensin II
- Peptidsignal mit mehreren Zielgeweben; AT1-Antworten verknüpfen Gefäßtonus und Transport. [13]
- 11β-HSD2
- Enzym, das in geeigneten Zielzellen Cortisol in Cortison umwandelt und damit Rezeptorselektivität ermöglicht. [15] [17]
- Juxtaglomerulärer Apparat
- Räumliche Verbindung von Gefäßwandzellen, Macula densa und extraglomerulärem Mesangium. [12] [43]
Häufige Fragen
Welche Signale fördern die Reninfreisetzung?
Granuläre Zellen verarbeiten den Perfusionszustand ihrer Gefäßwand, lokale Signale aus der Macula densa und sympathische β-adrenerge Anregung. Verringerte Druckinformation oder eine entsprechend veränderte NaCl-Lieferung können die Reninantwort fördern. Die Eingänge wirken abhängig vom gesamten Kreislauf- und Transportzustand zusammen. [12] [13] [43]
Wie entsteht daraus eine Aldosteronantwort?
Renin löst Angiotensin I aus dem überwiegend von der Leber bereitgestellten Angiotensinogen. ACE bildet anschließend Angiotensin II. Dieses Peptidsignal fördert in der Nebennierenrinde die Freisetzung von Aldosteron. Das Steroidhormon erreicht seine Zielzellen und beeinflusst dort unter anderem epithelialen Natrium- und Kaliumtransport. [13] [14] [15]
Hier geht das Wissen weiter
Quellen und Weiterlesen
- Yamaguchi, Gomez, Sequeira-Lopez: Renin Cells, From Vascular Development to Blood Pressure Sensing (2023) Renin cells and RAS; Fig. 1: Gefäßwandzellen, Druckinformation, β-adrenerger cAMP-Weg und Macula-densa/PGE2. DOI 10.1161/HYPERTENSIONAHA.123.20577. Abgerufen am 07.11.2026.
- Sparks et al.: Classical Renin-Angiotensin System in Kidney Physiology (2014) Classical components; Angiotensin receptors; proximal and vascular actions. DOI 10.1002/cphy.c130040. Abgerufen am 07.11.2026.
- Physiology, Renin Angiotensin System Kaskadenkomponenten: Angiotensinogen, Reninspaltung und endotheliales ACE. Abgerufen am 07.11.2026.
- 11β-Hydroxysteroid Dehydrogenases: Intracellular Gate-Keepers of Tissue Glucocorticoid Action 11β-HSD2, mineralocorticoid receptor selectivity and distal nephron. Abgerufen am 07.11.2026.
- Cellular selectivity of aldosterone action: role of 11 beta-hydroxysteroid dehydrogenase Abstract: Rezeptoraffinität und lokale enzymatische Selektivität. Abgerufen am 07.11.2026.
- The role of 11beta-hydroxysteroid dehydrogenase in steroid hormone specificity Abstract: renale Typ-2-Isoform, Cortisol/Cortison und MR-Schutz. Abgerufen am 07.11.2026.
- Glucocorticoids and renal Na+ transport: implications for hypertension and salt sensitivity MR affinity; 11β-HSD1 versus 11β-HSD2 and epithelial sodium transport. Abgerufen am 07.11.2026.
- Knepper, Kwon, Nielsen: Molecular Physiology of Water Balance (2015) Vasopressin Receptors; Aquaporins; Vasopressin-regulated Urea Channel, Zeilen129–198. DOI 10.1056/NEJMra1404726. Abgerufen am 07.11.2026.
- Potassium homeostasis: sensors, mediators, and targets (2022) Fig. 2–3; distal secretion; DCT sensing, Kir4.1/5.1, chloride-WNK-SPAK/NCC. PMID35727363. Abgerufen am 07.11.2026.
- Palmer: Regulation of Potassium Homeostasis (2015) Fig. 4–6; ROMK/BK, flow, distal delivery and aldosterone contexts. DOI 10.2215/CJN.08580813. Abgerufen am 07.11.2026.
- Edwards, Kurtcuoglu: Renal blood flow and oxygenation (2022) Anatomy; autoregulation; hormonal signals; Oxygenation/Regulation mechanisms and Fig.2. DOI10.1007/s00424-022-02690-y. Abgerufen am 07.11.2026.
- Carlström, Wilcox, Arendshorst: Renal Autoregulation in Health and Disease (2015) Introduction; myogenic response; MD-TGF; adenosine A1/A2 and Fig.6. DOI10.1152/physrev.00042.2012. Abgerufen am 07.11.2026.
- The Gomez equations and renal hemodynamic function in kidney disease research Introduction: RPF, GFR, filtration fraction and modeled afferent/efferent resistance. Abgerufen am 07.11.2026.
- Fundamental equations and hypotheses governing glomerular hemodynamics Einleitung: afferent/efferent resistance, net filtration and GFR/RPF definition. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology, 25.7 Regulation of Renal Blood Flow Sympathetic Nerves; Autoregulation; Arteriole Myogenic Mechanism. Abgerufen am 07.11.2026.