Auf einen Blick
- Glanzstreifen verbinden Herzmuskelzellen mechanisch und elektrisch.
- Calciumeinstrom löst an der Dyade eine verstärkte Freisetzung aus dem SR aus.
- ATP versorgt Querbrückenarbeit, Calciumrücknahme und Ionenhaushalt.
Verzweigte Zellen in einem dicht versorgten Verband
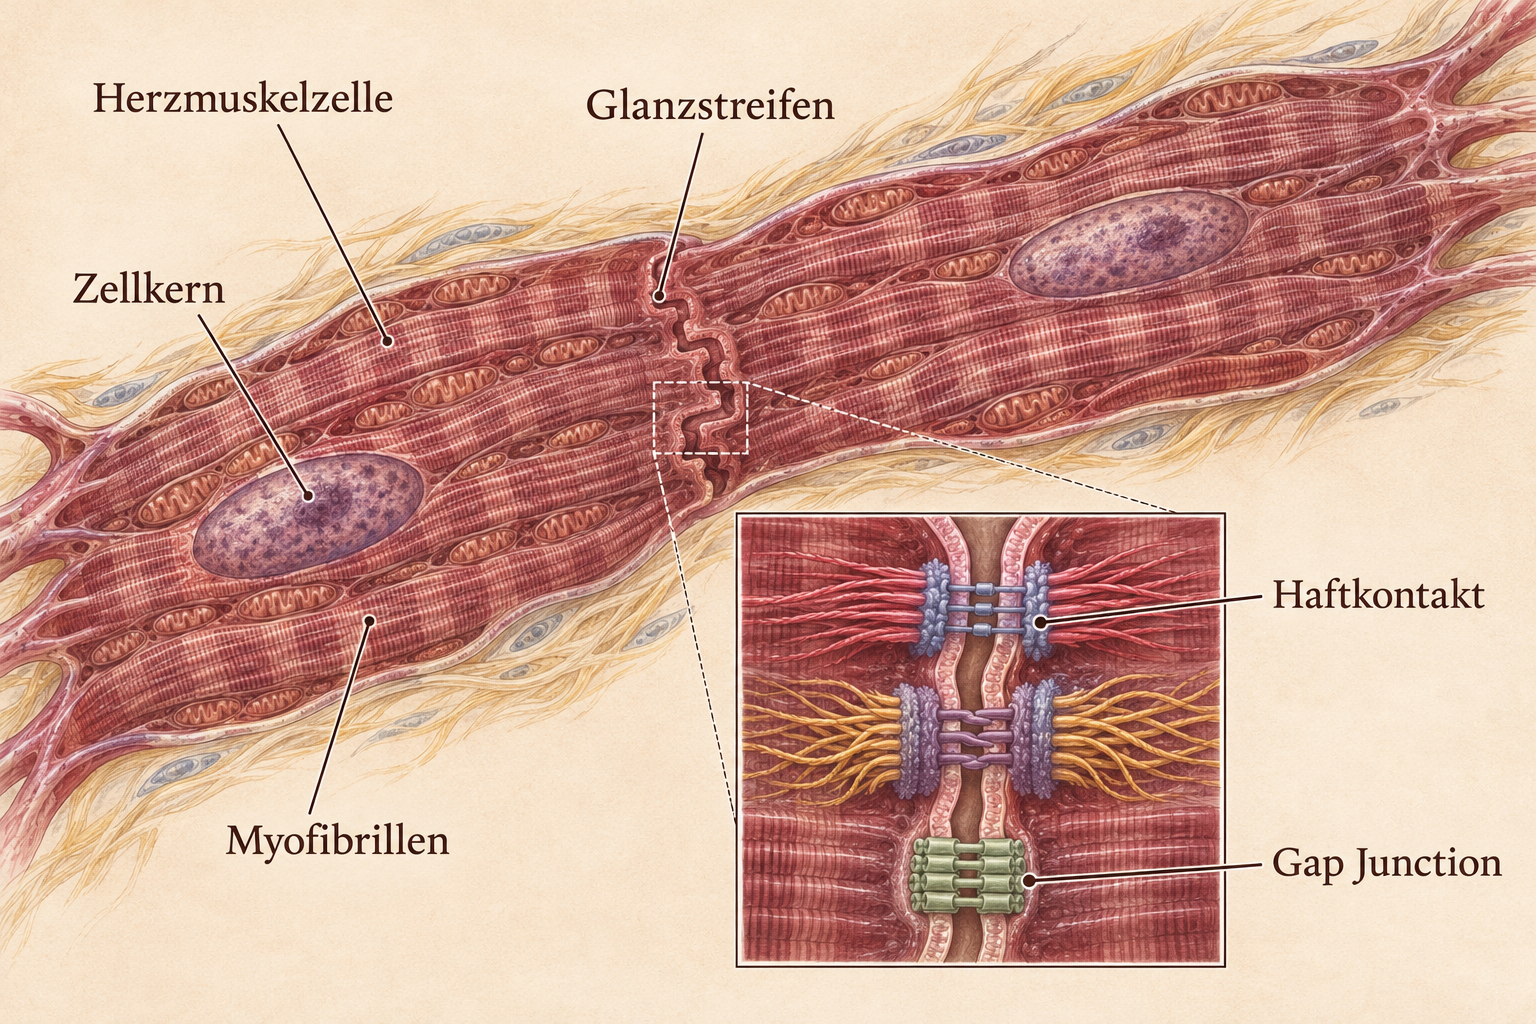
Die arbeitenden Zellen des Herzmuskels heißen Kardiomyozyten. Sie besitzen längs angeordnete Myofibrillen und meist einen zentralen Zellkern; auch zwei Kerne können vorkommen. Die Zellen verzweigen sich und schließen mit Glanzstreifen an benachbarte Zellen an. Zwischen ihnen liegt Bindegewebe mit zahlreichen Kapillaren. In einem Gewebeschnitt zeigen deshalb längs und quer getroffene Zellprofile zusammen die räumliche Organisation des Myokards. [43] [60]
Die Querstreifung entsteht aus der regelmäßigen Anordnung kontraktiler Proteine in den Sarkomeren. Viele Sarkomere stehen innerhalb einer Myofibrille hintereinander; mehrere Myofibrillen liegen in derselben Zelle nebeneinander. Zwischen ihnen befinden sich zahlreiche Mitochondrien und Anteile des Membran- und Calciumspeichersystems. Die Zellarchitektur bringt so die Kraft erzeugenden, Energie bereitstellenden und steuernden Strukturen in enge räumliche Nachbarschaft. [42] [45]
Kapillaren verlaufen im bindegewebigen Zwischenraum nahe an den Muskelzellen. Dadurch bleiben die Transportstrecken für Sauerstoff und gelöste Stoffe kurz. Fibroblasten und extrazelluläre Matrix ergänzen den Zellverband; sie formen seine mechanische Umgebung. Der Herzmuskel lässt sich deshalb auf drei miteinander verbundenen Ebenen lesen: einzelne Kardiomyozyten, Kontakte zwischen ihnen und das versorgende beziehungsweise kraftübertragende Gewebe dazwischen. [43] [60]
Glanzstreifen übertragen Zugkräfte und elektrische Aktivierung
Ein Glanzstreifen ist eine spezialisierte Kontaktregion zwischen zwei Herzmuskelzellen. Sein Verlauf kann im Schnitt gestuft oder zickzackförmig erscheinen. Die Membranen der Nachbarzellen liegen dabei eng einander gegenüber, behalten aber ihre eigene Begrenzung. Verschiedene Kontaktkomplexe übernehmen unterschiedliche Aufgaben. Die hochauflösende Betrachtung macht sichtbar, wie mechanische Verankerung und elektrische Verbindung an derselben Zellgrenze organisiert sind. [41] [60]
Gesundheitskapitel
An Adhärenskontakten sind Aktinfilamente der endständigen Sarkomere mit der Zellgrenze verbunden. Desmosomen koppeln das Intermediärfilamentsystem und erhöhen die mechanische Festigkeit des Zellverbands. Dazwischen und in weiteren Kontaktabschnitten liegen Gap Junctions. Deren gekoppelten Kanalkomplexe erlauben den Durchtritt kleiner Ionen und Moleküle zwischen den Zellen. Die Kontaktarten bilden gemeinsam ein funktionell aufeinander abgestimmtes Gefüge. [44] [42]
Die Gap Junctions ermöglichen lokale Ströme, die eine benachbarte Zelle erregen können. Anschließend entwickelt jede aktivierte Zelle ihren eigenen Calcium- und Kraftverlauf. Die Haftverbindungen übertragen die dabei entstehenden Kräfte über die Zellgrenzen hinweg. Auf diese Weise wird aus vielen einzeln umhüllten Zellen ein gemeinsam arbeitender Muskelverband. Die Anschlussfähigkeit beruht zugleich auf elektrischen und mechanischen Eigenschaften. [41] [44]
Ein Sarkomer übersetzt Calciumfreigabe in gerichtete Kraft
Das Sarkomer liegt zwischen zwei Z-Scheiben. Dünne, überwiegend aus Aktin aufgebaute Filamente sind an den Endbereichen verankert; dicke Myosinfilamente liegen im mittleren Abschnitt. Die Überlappung beider Systeme verändert sich bei der Verkürzung. Myosinköpfe können vorübergehend an Aktin binden und durch ihre zyklischen Zustandswechsel Kraft übertragen. Viele gleichzeitig aktive Querbrücken summieren sich zur Zugkraft eines Sarkomers. [42] [38]
An den dünnen Filamenten steuert der Troponin-Tropomyosin-Komplex die Zugänglichkeit der Bindungsstellen. Wenn die Calciumkonzentration im Zellplasma ansteigt, bindet Calcium an Troponin C. Die dadurch ausgelöste Formänderung erleichtert die Wechselwirkung zwischen Aktin und Myosin. Mit abnehmendem Calcium wird die Aktivierung wieder zurückgenommen. Die Calciumbewegung bildet damit das zeitliche Bindeglied zwischen elektrischer Membranantwort und mechanischer Kraftentwicklung. [38] [39]
Für die Querbrückenzyklen wird ATP benötigt. Die Bindung von ATP unterstützt die Lösung eines Myosinkopfs vom Aktin; seine Spaltung stellt den energiereichen Zustand für einen weiteren Zyklus bereit. Elastische Proteine und Matrixverbindungen tragen zusätzlich zur Form- und Kraftübertragung bei. Im gesamten Muskel greifen deshalb aktive Querbrückenkräfte und elastische Eigenschaften ineinander, während sich Kammerwand und Hohlraum verformen. [42] [45]
Die kardiale Dyade hält zwei Membransysteme dicht beieinander
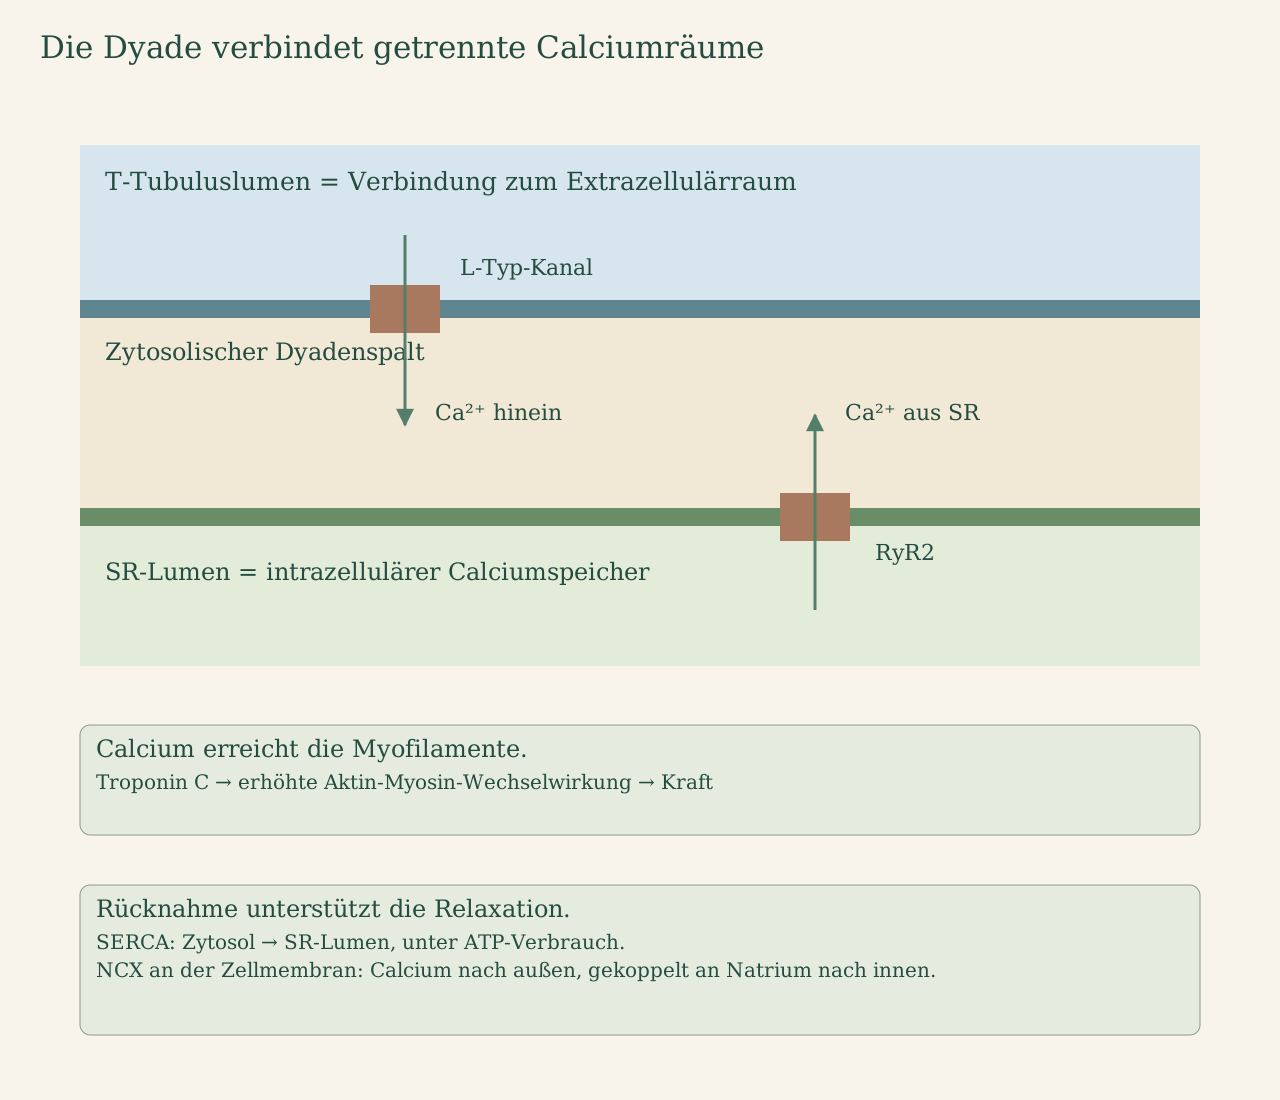
Ein T-Tubulus ist eine Einstülpung der Zellmembran. Sein Lumen steht mit dem Extrazellulärraum in Verbindung; die Membran bringt die elektrische Aktivierung tief in die Zelle. Neben dem T-Tubulus liegt eine terminale Zisterne des sarkoplasmatischen Retikulums, kurz SR. Diese enge Nachbarschaft heißt kardiale Dyade. Sie verbindet die äußere Zellmembran funktionell mit dem intrazellulären Calciumspeicher. [37] [40]
Gesundheitskapitel
Die beiden Membranen liegen dicht beieinander, umschließen jedoch getrennte Räume. Zwischen der Tubulusmembran und der SR-Membran befindet sich ein schmaler zytosolischer Spalt. In der Tubulusmembran liegen L-Typ-Calciumkanäle; gegenüber besitzt das SR Ryanodinrezeptoren vom Typ RyR2. Der präzise Schichtplan zeigt deshalb drei klar unterscheidbare Flüssigkeitsbereiche: Tubuluslumen, zytosolischer Zwischenraum und SR-Lumen. [37]
Während der elektrischen Aktivierung öffnet sich ein Teil der L-Typ-Calciumkanäle. Calcium strömt aus dem Tubuluslumen in den kleinen zytosolischen Bereich der Dyade. Dieser lokale Anstieg erhöht die Öffnungswahrscheinlichkeit benachbarter RyR2-Kanäle. Daraufhin tritt Calcium aus dem SR ins Zellplasma. Die Bezeichnung calciuminduzierte Calciumfreisetzung beschreibt diese zweistufige Signalverstärkung unmittelbar. [39] [40]
Viele lokale Freisetzungsereignisse bilden einen gemeinsamen Calciumtransienten
Über die Zelle verteilt liegen zahlreiche Kopplungsstellen von Membran und SR. Ihre Aktivierung erzeugt viele kleine lokale Calciumfreisetzungen, die zum zeitlichen Calciumanstieg der ganzen Zelle beitragen. Calcium erreicht die Myofilamente und fördert die Bindung an Troponin C. Auf den elektrischen Aufstrich folgt somit erst die Calciumantwort und daraus die Kraftantwort; die drei Vorgänge haben aufeinander bezogene, aber unterschiedliche Zeitverläufe. [38] [39]
Wie stark die Zelle Kraft entwickelt, hängt unter anderem von der Calciumantwort und von der Empfindlichkeit der Myofilamente ab. Auch die Ausgangslänge der Sarkomere beeinflusst ihre Aktivierung und die erreichbare Kraft. Diese längenabhängige Komponente trägt zum Frank-Starling-Verhalten der Kammer bei. Die Organfüllung verändert dadurch die mechanischen Ausgangsbedingungen, auf denen die anschließende elektrische Aktivierung und Calciumfreisetzung wirksam werden. [20] [38]
Der Umfang des SR-Vorrats entsteht aus der Bilanz vieler aufeinanderfolgender Schläge. Ein Teil des aktivierenden Calciums ist neu über die Zellmembran eingeströmt, ein größerer gespeicherter Anteil kann pro Schlag aus dem SR mobilisiert und anschließend wieder aufgenommen werden. Die laufende Rückgewinnung und die Abgabe über die Zellmembran halten den Calciumhaushalt im zeitlichen Gleichgewicht. Diese Bilanz ist eine eigene Aufgabe neben der einzelnen schnellen Freisetzung. [38] [64]
Relaxation braucht Calciumrücknahme und verfügbare Energie
Für die Erschlaffung sinkt die freie Calciumkonzentration im Zellplasma. Die SR-Calcium-ATPase SERCA transportiert Calcium unter ATP-Verbrauch in das SR zurück. Ein weiterer wichtiger Weg führt über den Natrium-Calcium-Austauscher NCX durch die Zellmembran nach außen. In seiner für die Calciumelimination typischen Betriebsrichtung ist der Calciumausstrom an einen Natriumeinstrom gekoppelt. Die beteiligten elektrochemischen Gradienten werden durch weitere Membrantransporte aufrechterhalten. [64] [38]
Mit der geringeren Calciumbindung an Troponin nimmt die Aktivierung der Myofilamente ab. Querbrücken lösen sich, und die aktive Spannung geht zurück. Gleichzeitig wirken elastische Rückstellkräfte und die dreidimensionale Wandgeometrie auf die Formänderung. Im Kammerzyklus kann der Druck dadurch fallen, bis die nächste Füllung beginnt. Die Entspannung besitzt damit eine konkrete biochemische und eine damit gekoppelte mechanische Grundlage. [38] [13]
Die Geschwindigkeit der Calciumrücknahme lässt sich durch regulierende Proteine und Signalwege verändern. Phospholamban steht beispielsweise in einer funktionellen Beziehung zur SERCA-Aktivität. Beta-adrenerge Signale können über Phosphorylierung mehrere Schritte der Calciumverarbeitung beeinflussen. Dadurch werden bei veränderten Anforderungen Kraftentwicklung und Relaxation gemeinsam angepasst. Die Mechanik eines Herzschlags hängt somit auch davon ab, wie die Zelle den nächsten Schlag vorbereitet. [39] [40]
Kontinuierliche Energieumsetzung hält den Rhythmus arbeitsfähig
Herzmuskelzellen stellen einen großen Teil ihres ATP oxidativ in den Mitochondrien bereit. Sie können unterschiedliche Substrate nutzen, darunter Fettsäuren, Glucose und Lactat; deren Beitrag hängt von Angebot und Stoffwechsellage ab. Die kontinuierliche Sauerstoffzufuhr über die Koronargefäße und der zelluläre Substratumsatz gehören deshalb eng zusammen. Der ATP-Verbrauch betrifft sowohl die Kraft erzeugenden Proteine als auch die aktiven Transportsysteme. [45]
Das Kreatinkinase-Phosphokreatin-System puffert und verteilt energiereiche Phosphatgruppen zwischen Orten der Bereitstellung und des Verbrauchs. Zusammen mit den räumlich zahlreichen Mitochondrien unterstützt es die zeitnahe Versorgung der Myofibrillen und Membranpumpen. Besonders verständlich wird dadurch die Verbindung von Kontraktion und Entspannung: Für die fortlaufende Pumpfunktion müssen Kraftentwicklung, Ionenhaushalt und Calciumrücknahme gleichermaßen energetisch versorgt werden. [45]
Vom mikroskopischen Schnitt zur funktionellen Einheit
Im Längsschnitt fallen die Querstreifung und die stufenförmigen Zellgrenzen auf. Im Querschnitt zeigen sich unterschiedlich geformte Profile mit oder ohne getroffenen zentralen Kern. Manche helleren Bereiche um den Kern enthalten zahlreiche Organellen und Speicherstoffe. Kleine, mit Erythrozyten gefüllte Gefäßprofile zwischen den Zellen kennzeichnen das Kapillarnetz. Erst das Zusammensehen verschiedener Schnittrichtungen vermittelt die verzweigte Form der einzelnen Muskelzellen. [43] [60]
Für die Funktion kann ein einzelner Schlag in vier zelluläre Schritte aufgelöst werden: Die Membran wird aktiviert, Calcium wird örtlich freigesetzt, die Myofilamente entwickeln Kraft und das Calcium wird wieder zurückgenommen. Diese Reihenfolge hält die unterschiedlichen Räume zusammen. Der präzise Dyadenplan zeigt dafür, wo die Flüssigkeitswege beginnen und enden, während das Zellbild die Lage der Struktur im größeren Muskelverband ergänzt. [37] [39]
Die Kraft einer einzelnen Zelle erreicht die Nachbarn über Haftkontakte und die umgebende Matrix. Ihre elektrische Antwort wird über Gap Junctions mit dem Verband gekoppelt. Im dreidimensionalen Myokard überlagern sich dadurch die Antworten vieler Zellen mit unterschiedlichen Ausrichtungen. Zellverbindung und räumliche Architektur erklären zusammen, wie lokale Querbrückenarbeit einen gemeinsam bewegten Kammermuskel hervorbringt. [41] [42] [46]
Die Koronarversorgung schließt diesen Zusammenhang zur Organebene. Ein erhöhter Arbeitsbedarf verändert Energieumsatz und örtliche Durchblutungsregulation. Die folgende Relaxation bereitet die Volumenaufnahme vor; diese verändert wiederum die Ausgangsdehnung des nächsten Schlags. Elektrische, biochemische, mechanische und versorgende Vorgänge bilden so einen fortlaufenden Funktionskreis, dessen einzelne Abschnitte auf den benachbarten Herzseiten vertieft werden. [45] [20]
Die räumliche Zellorientierung formt die Kammerbewegung
Die bevorzugte Längsrichtung der Herzmuskelzellen ändert sich durch die Kammerwand hindurch. Zur räumlichen Beschreibung dienen eine Längsrichtung zwischen Basis und Spitze, eine Umfangsrichtung um die Kammer und eine radiale Richtung durch die Wand. In diesen Koordinaten lassen sich Orientierungswechsel und die Verformung benachbarter Zellgruppen nachvollziehen. Die dreidimensionale Architektur verbindet lokale Verkürzung mit mehreren gleichzeitigen Bewegungsrichtungen. [46]
Während der Kontraktion verkürzt sich die linke Kammer längs und im Umfang; die Wand verdickt sich und zeigt eine Verwindungsbewegung. Umlagerungen benachbarter Zellaggregate und ihrer Matrix tragen zur radialen Verdickung bei. So entstehen aus der Verkürzung vieler länglicher Zellen deutlich veränderte Kammerformen. Die Zellbiologie dieser Seite und die Druck-Volumen-Betrachtung des Herzzyklus beschreiben damit zwei verbundene Maßstabsebenen derselben Pumpfunktion. [46]
Vier Calciumwege mit verschiedenen Zielen
| Bauteil oder Vorgang | Funktion im Zusammenhang |
|---|---|
| L-Typ-Kanal | L-Typ-Calciumkanal Calcium aus Extrazellulär-/Tubuluslumen → zytosolischer Dyadenspalt. [37] |
| RyR2 | Calcium aus dem SR-Lumen → Zytosol; verstärkt das lokale Signal. [39] |
| SERCA | Calcium aus dem Zytosol → SR-Lumen, ATP-abhängig. [38] |
| NCX | NCX bei Calciumelimination Calcium aus dem Zytosol → Extrazellulärraum, gekoppelt an Natriumeinstrom. [64] |
Begriffe zum Weiterlesen
- Kardiomyozyt
- Herzmuskelzelle mit spezialisierter kontraktiler und elektrischer Ausstattung. [43]
- Sarkomer
- Kontraktile Einheit zwischen zwei Z-Scheiben mit geordneten Aktin- und Myosinfilamenten. [42]
- Sarkolemm
- Zellmembran einer Muskelzelle, einschließlich ihrer T-tubulären Einstülpungen. [37]
- Dyade
- Enge Nachbarschaft eines T-Tubulus und einer terminalen SR-Zisterne im Herzmuskel. [37]
- CICR
- Calcium-induced calcium release: ein lokaler Calciumeinstrom löst weitere Calciumfreisetzung aus dem SR aus. [40]
- Calciumtransient
- Zeitlich begrenzter Anstieg und Abfall der freien Calciumkonzentration nach einer Aktivierung. [38]
- Phosphokreatin
- Energieträger im Kreatinkinasesystem zur Pufferung und Verteilung energiereicher Phosphatgruppen. [45]
Häufige Fragen
Wie verbindet Calcium das elektrische Signal mit der Kontraktion?
An der Dyade tritt Calcium durch L-Typ-Kanäle aus dem Tubuluslumen in den zytosolischen Spalt. Dieser lokale Anstieg aktiviert RyR2-Kanäle im benachbarten SR. Das dadurch freigesetzte Calcium bindet an Troponin C und erleichtert die Kraftentwicklung zwischen Aktin und Myosin. [37] [38] [39]
Wie entspannt sich eine Herzmuskelzelle?
SERCA transportiert Calcium unter ATP-Verbrauch in das SR zurück. Der Natrium-Calcium-Austauscher trägt Calcium über die äußere Zellmembran ab. Mit sinkender Calciumkonzentration nimmt die Aktivierung der Myofilamente ab; verfügbare Energie ermöglicht zugleich das Lösen der Querbrücken und die weitere Ionenregulation. [38] [45] [64]
Hier geht das Wissen weiter
Quellen und Weiterlesen
- Little et al.: The Cardiac Cycle and the Physiological Basis of Left Ventricular Contraction, Ejection, Relaxation, and Filling Cardiac cycle; ventricular filling; pressure-volume analysis: Öffnungs-/Schlussereignisse, Relaxation, frühe Füllung und Diastase. Abgerufen am 07.11.2026.
- StatPearls: Physiology, Frank Starling Law Introduction; mechanism: Füllung, Sarkomerdehnung und längenabhängige Aktivierung. Abgerufen am 07.11.2026.
- The architecture and function of cardiac dyads (2020) Abstract/Introduction: T-Tubulus, junctional SR, getrennter Lumenzusammenhang und calciuminduzierte Calciumfreisetzung. Abgerufen am 07.11.2026.
- Eisner et al. (2017): Calcium and Excitation-Contraction Coupling in the Heart Calcium-induced calcium release; myofilament activation; SERCA and sodium/calcium exchange. Abgerufen am 07.11.2026.
- Calcium Signaling in Cardiomyocyte Function Fig. 1 und Erklärung der acht Schritte: LTCC-Einstrom, RyR2-Freisetzung, Troponin, SERCA und NCX. Abgerufen am 07.11.2026.
- Organization of Ca2+ Signaling Microdomains in Cardiac Myocytes Calcium signaling in cardiomyocytes: SR-Vorrat, Membrannachbarschaft und CICR. Abgerufen am 07.11.2026.
- Zhao et al. (2019; online 2018): Intercalated discs: cellular adhesion and signaling in heart health and diseases Abstract: mechanische Zellkontakte und elektrische/metabolische Kommunikation. Abgerufen am 07.11.2026.
- Pruna und Ehler (2020): The intercalated disc: a mechanosensing signalling node in cardiomyopathy Drei Kontaktkomponenten; area composita; Fig. 1 mit Sarkomer, Aktin/Myosin/Titin und Kraftübertragung. Abgerufen am 07.11.2026.
- Columbia University: Cardiac Muscle, Histology Laboratory Lehrabschnitt: zentrale Kerne, Verzweigung, Glanzstreifen und kapillarreiches Endomysium. Abgerufen am 07.11.2026.
- University of Leeds: Muscle Cell Junctions Lehrabschnitt: Fascia adherens/Aktin, Desmosomen und Gap Junctions. Abgerufen am 07.11.2026.
- Bornstein, Tian und Arany (2024): Human Cardiac Metabolism Introduction; ATP; Phosphocreatine/creatine kinase: kontinuierliche oxidative ATP-Bereitstellung und Energietransfer. DOI 10.1016/j.cmet.2024.06.003. Abgerufen am 07.11.2026.
- Wilson et al. (2022): Myocardial mesostructure and mesofunction Abstract; 2.1/2.2 Cardiomyocyte orientation; Sheetlets: longitudinale, zirkumferenzielle und radiale Deformation, transmuraler Orientierungswechsel. DOI 10.1152/ajpheart.00059.2022. Abgerufen am 07.11.2026.
- Universität Basel: Cardiac muscle, longitudinal section (intercalated disks) Lehrabschnitt: Verzweigung, zentrale Kerne, Z-/Glanzstreifen und Kapillarnetz. Abgerufen am 07.11.2026.
- Calcium signaling in cardiac myocytes (2011) Erregungs-Kontraktions-Kopplung und Natrium-Calcium-Austauscher: Calciumelimination und Ionenkopplung. Abgerufen am 07.11.2026.