Auf einen Blick
- Ort: zwei kleine Kerngebiete im vorderen Hypothalamus.
- Eingang: Lichtinformationen aus retinalen Ganglienzellen.
- Zeitmessung: molekulare Rückkopplung und Kommunikation zwischen Zellen.
- Ausgang: zeitliche Signale für verknüpfte Gehirn- und Körperfunktionen.
Zwei Kerngebiete oberhalb des Chiasma opticum
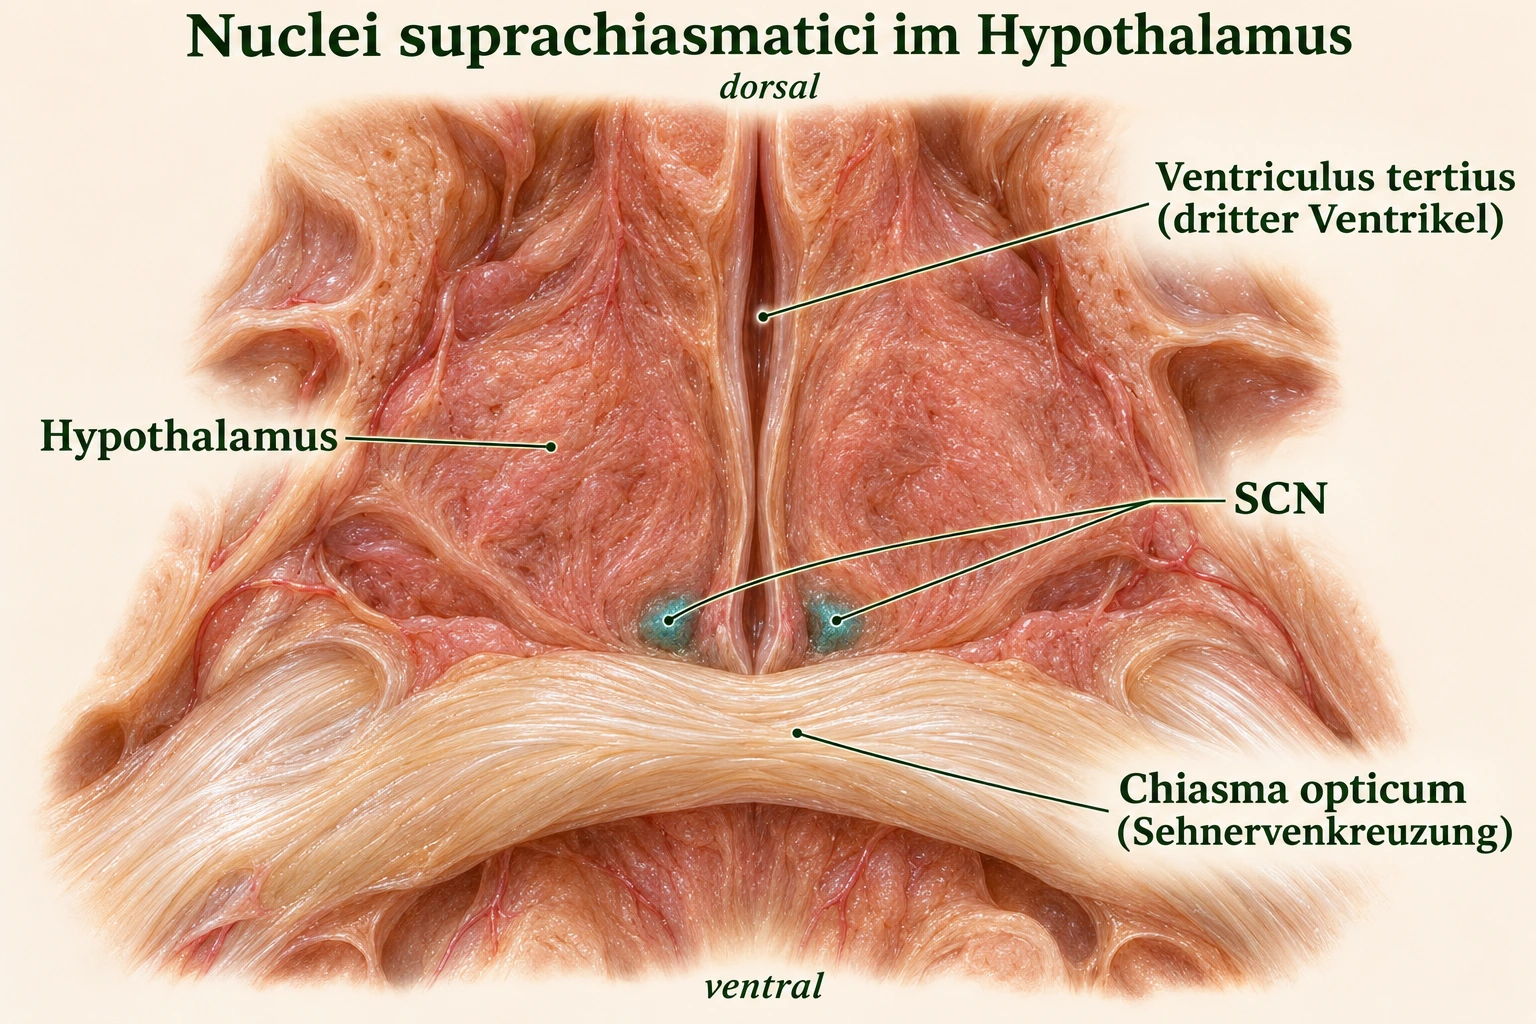
Die Nuclei suprachiasmatici liegen im vorderen Hypothalamus, einem Teil des Diencephalon (Zwischenhirns). Zwischen ihnen verläuft der Ventriculus tertius (dritte Hirnventrikel), ein mit Liquor cerebrospinalis (Hirnwasser) gefüllter Hohlraum. Ventral, in Richtung der Gehirnunterseite, liegt das Chiasma opticum (Sehnervenkreuzung). Der Name beschreibt diese Nachbarschaft: supra bedeutet oberhalb, chiasmaticus bezieht sich auf die Sehnervenkreuzung. Im Koronarschnitt (Frontalschnitt) werden beide Kerngebiete seitlich des unteren Ventrikelabschnitts sichtbar. Die Lageübersicht zeigt diese Region vergrößert; Türkis hebt die beiden SCN hervor. [1]
Gesundheitskapitel
Was circadian und freilaufend bedeuten
Circadian bezeichnet einen Rhythmus mit einer Periodendauer von ungefähr einem Tag. Unter kontrollierten Bedingungen kann sich seine Eigenperiode zeigen: Der Rhythmus läuft dann entsprechend der inneren Zeitmessung weiter. Die Anpassung an einen äußeren Tageszyklus heißt Entrainment (Synchronisation). Ein regelmäßig wirksames Umweltsignal wird als Zeitgeber bezeichnet. Beim Menschen gehören Lichtsignale zu den entscheidenden Einflüssen auf die Ausrichtung des circadianen Systems. [8]
Wie die menschliche Eigenperiode untersucht wurde
Duffy und Kollegen werteten 2011 Untersuchungen an 157 Erwachsenen im Alter von 18 bis 74 Jahren aus. Die Teilnehmenden verbrachten jeweils zwei bis sechs Wochen im Labor. Vorgegebene Ruhe-Aktivitäts-Zyklen und gedämpftes Licht erlaubten, den körpereigenen Rhythmus von der aufgeprägten Tagesstruktur zu trennen. Die aus der Körperkerntemperatur bestimmte mittlere Periode lag bei 24,15 Stunden, entsprechend 24 Stunden und neun Minuten. Bei 129 Personen ließ sie sich zusätzlich aus Melatonindaten bestimmen. Die beiden Messverfahren ergaben eng zusammenhängende Schätzungen. [8]
Periode, Phase und Amplitude beschreiben verschiedene Eigenschaften
Die Periode gibt die Dauer eines Zyklus an, die Phase seine zeitliche Position, etwa den Beginn des Melatoninanstiegs. Die Amplitude beschreibt die Ausprägung der Schwankung. Bei einer Phasenverschiebung tritt ein wiederkehrendes Ereignis früher oder später auf. [1]
Retina: Lichtempfindliche Ganglienzellen liefern das Eingangssignal
In der Retina (Netzhaut) liegen intrinsisch photosensitive retinale Ganglienzellen, kurz ipRGCs. Intrinsisch photosensitiv bedeutet, dass die Zellen selbst auf Licht reagieren können. Ihr lichtempfindliches Pigment heißt Melanopsin. Diese Ganglienzellen erhalten zusätzlich Informationen aus den Netzhautschaltungen, an denen Stäbchen und Zapfen beteiligt sind. So verbinden sich Eigenempfindlichkeit und eingehende Signale zu einer Antwort auf die Beleuchtung des Auges. [10]
Wie die Eigenempfindlichkeit einzelner Netzhautzellen nachgewiesen wurde
Berson, Dunn und Takao markierten 2002 bei Ratten Ganglienzellen, deren Fortsätze den SCN erreichen. Anschließend zeichneten sie in isolierten Netzhäuten die elektrische Antwort dieser Zellen auf Licht auf. Die Zellen depolarisierten: Ihr Membranpotenzial verschob sich und sie erzeugten Aktionspotenziale. Die Lichtantwort blieb auch bei pharmakologischer Blockade der eingehenden synaptischen Übertragung bestehen. Zudem reagierten einzelne, vom übrigen Netzhautgewebe abgetrennte Zellkörper weiterhin auf Licht. Diese Versuchsschritte machten die Lichtempfindlichkeit der untersuchten Ganglienzellen selbst sichtbar. [4]
Tractus retinohypothalamicus: der Weg zum Hypothalamus
Axone (Nervenfortsätze) entsprechender retinaler Ganglienzellen bilden den Tractus retinohypothalamicus (Netzhaut-Hypothalamus-Bahn). Ihre Endigungen übermitteln Lichtinformationen an SCN-Neurone. Glutamat und PACAP, ein Peptidbotenstoff, beteiligen sich an dieser Übertragung. Im Kerngebiet treffen damit äußere Lichtsignale auf die aktuelle Phase der Zellen. Über elektrische Aktivität und intrazelluläre Signalwege kann sich anschließend die rhythmische Genaktivität verschieben. [2]
CLOCK und BMAL1 aktivieren Uhrengene im Zellkern
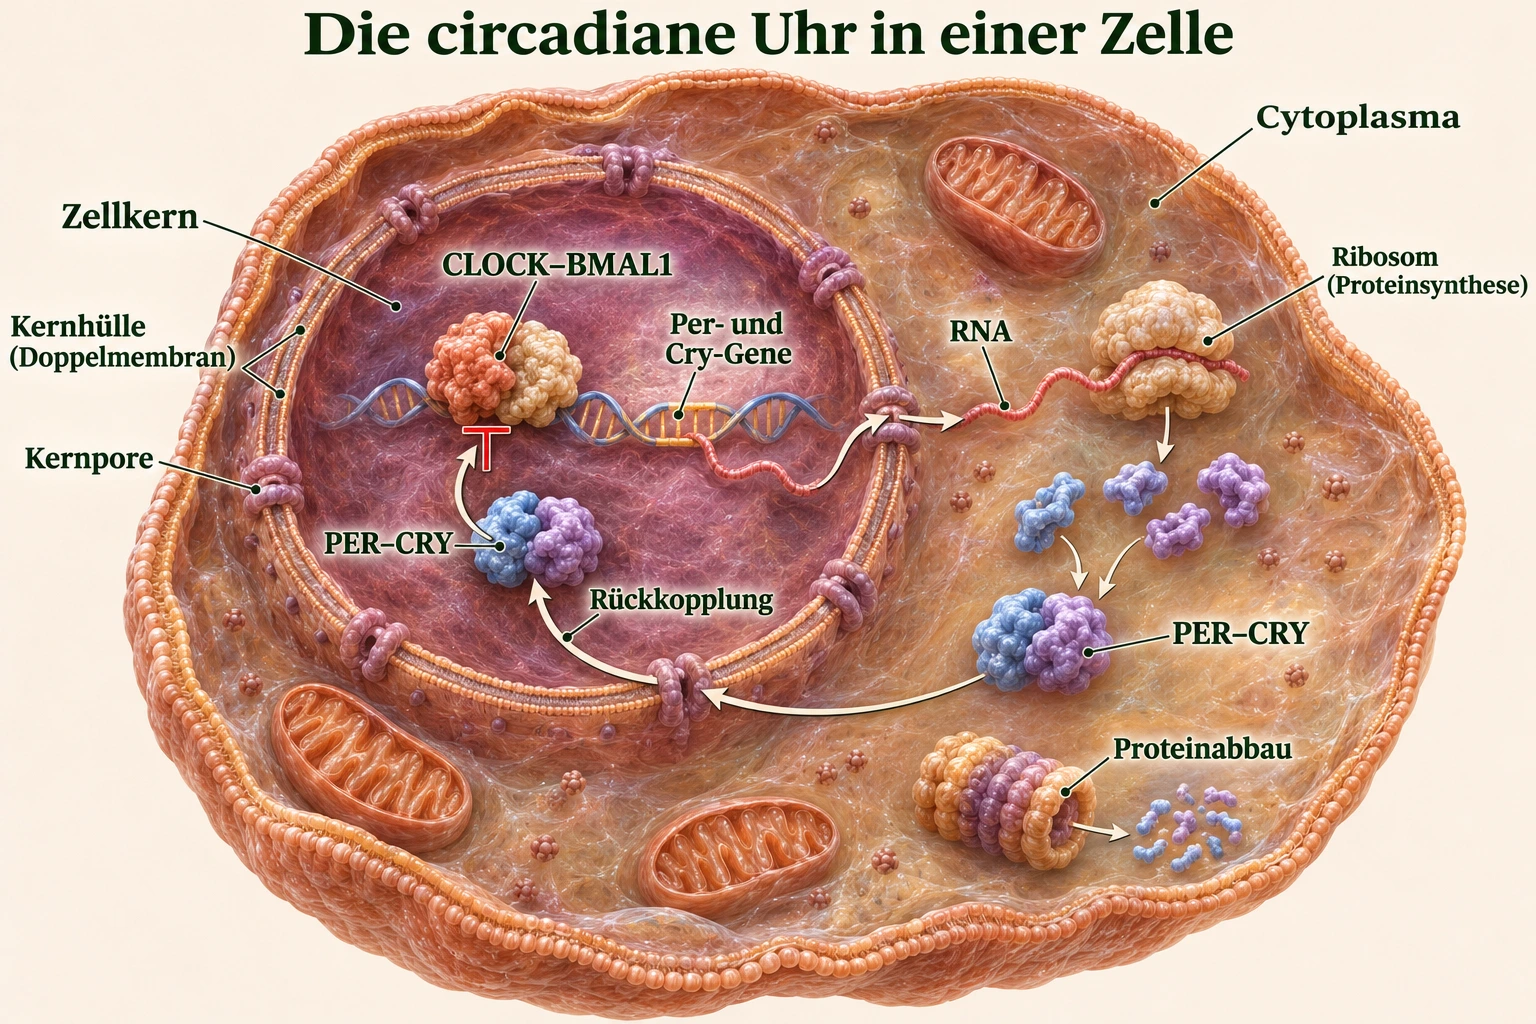
Die molekulare Zeitmessung beruht auf ineinandergreifenden Rückkopplungen. Im Nucleus cellularis (Zellkern) bilden CLOCK und BMAL1 einen Proteinkomplex. Er bindet an regulatorische DNA-Abschnitte und fördert unter anderem die Transkription (Abschrift) von Per- und Cry-Genen. Aus der genetischen Information entsteht RNA. Diese erreicht durch Kernporen das Cytoplasma (Zellplasma), wo Ribosomen die zugehörigen Proteine herstellen. [3]
Gesundheitskapitel
PER und CRY führen die Information zum Zellkern zurück
PER- und CRY-Proteine sammeln sich zeitversetzt an und bilden Komplexe. Im Zellkern begrenzen sie die CLOCK–BMAL1-vermittelte Genaktivierung. Diese negative Rückkopplung verändert die Bildung neuer Uhrproteine. Die Zeitverläufe von Herstellung, Zusammenlagerung und Kerntransport tragen zur rhythmischen Aktivität bei. [3]
Proteinabbau verändert den Verlauf des nächsten Zyklus
Phosphorylierung (Anlagerung von Phosphatgruppen) beeinflusst die Stabilität der Uhrproteine. Ubiquitin-abhängige Wege und Proteasomen vermitteln ihren Abbau. Für CRY wirken unter anderem FBXL3 und FBXL21 an dieser Regulation mit. Der Umsatz der hemmenden Proteine ermöglicht die erneute Genaktivierung. [3]
VIP und VPAC2 koppeln die einzelnen Zellrhythmen
Die Zellen des SCN kommunizieren über Botenstoffe und Rezeptoren. Ein wichtiger Peptidbotenstoff ist VIP, das vasoaktive intestinale Peptid. Sein Rezeptor VPAC2 vermittelt Signale zwischen Zellen des Kerngebiets. Dadurch beeinflussen sich die einzelnen rhythmischen Verläufe gegenseitig. Zwei Eigenschaften werden dabei untersucht: die Stabilität des Rhythmus einer Zelle und die zeitliche Abstimmung zwischen mehreren Zellen. Für das gemeinsame Ausgangssignal sind beide bedeutsam. [5]
Was bei verändertem VIP-Signalweg in Mäusen geschah
Aton und Kollegen verglichen 2005 Mäuse mit funktionsfähigem VIP-Signalweg mit Tieren, denen VIP oder der VPAC2-Rezeptor fehlte. Sie untersuchten die Laufradaktivität über längere Zeit in Dunkelheit und zeichneten die Aktivität einzelner SCN-Neurone über mehrere Tage auf. Bei den veränderten Tieren und Zellkulturen waren die circadianen Verläufe schwächer beziehungsweise zeitlich weniger abgestimmt. Die Versuche zeigen, wie die Kommunikation im Netzwerk zur rhythmischen Ordnung beiträgt. [5]
Astrozyten beteiligen sich an der Zeitmessung
Zum SCN gehören Neurone (Nervenzellen) und Astrozyten (sternförmige Gliazellen). Brancaccio und Kollegen beobachteten 2017 in SCN-Schnittkulturen von Mäusen gegensinnig verlaufende Calciumrhythmen beider Zellgruppen. Astrozytäre Signale und die Konzentration von Glutamat im Extrazellulärraum (Raum außerhalb der Zellen) nahmen während der circadianen Nacht zu. Neuronale Calcium- und Membranpotenzialrhythmen erreichten ihre Maxima während des circadianen Tages. [6]
In einem weiteren Versuch veränderte das Team die molekulare Periodenlänge gezielt in SCN-Astrozyten erwachsener Mäuse. Auch die Periode der Laufradaktivität verlängerte sich. Die Ergebnisse aus Schnittkultur und lebendem Tier erfassen unterschiedliche Ebenen derselben Zellkommunikation: molekulare Uhr, Calciumverlauf und beobachtbares Verhalten. Die untersuchten Astrozyten gehören damit zu den Zellen, die circadiane Information im SCN verarbeiten und an das Netzwerk weitergeben. [6]
Projektionswege verbinden den SCN mit weiteren Regelkreisen
SCN-Neurone senden Fortsätze vor allem zu Zielgebieten im Hypothalamus sowie zu weiteren zentralen Regionen. Zu den Verbindungen gehören Wege zum Nucleus paraventricularis (paraventrikulären Kerngebiet) und zu hypothalamischen Netzwerken für Wachheit und Nahrungsaufnahme. Über mehrstufige Schaltungen erreichen circadiane Signale auch autonome und endokrine Regelkreise. Dazu zählen Verbindungen, die den Rhythmus der Melatoninfreisetzung aus der Glandula pinealis (Zirbeldrüse) mit dem Licht-Dunkel-Wechsel verknüpfen. [2]
Gewebeuhren reagieren auch auf den Zeitpunkt der Nahrungsaufnahme
Rhythmische Genaktivität findet sich auch in peripheren Geweben. Damiola und Kollegen verglichen 2000 Mäuse, die ihre Nahrung ausschließlich tagsüber oder nachts erhielten. Nach der zeitlich veränderten Fütterung verschoben sich die untersuchten Genexpressionsrhythmen in der Leber deutlich. Im SCN blieb die Phase der gemessenen Genaktivität weitgehend erhalten. Vergleichbare Untersuchungen erfolgten unter einem Licht-Dunkel-Wechsel und bei anhaltender Dunkelheit. Der Versuch verdeutlicht, dass verschiedene Gewebe auf dieselbe zeitliche Umweltveränderung unterschiedlich reagieren können. [11]
Ein Transplantationsversuch machte die Schrittmacherfunktion sichtbar
Ralph und Kollegen nutzten 1990 Hamster mit genetisch unterschiedlicher circadianer Periodenlänge. Nach Schädigung des SCN waren regelmäßige Aktivitätsrhythmen gestört. Transplantiertes SCN-Gewebe konnte einen circadianen Aktivitätsrhythmus wiederherstellen. Dessen Periodenlänge entsprach dem Genotyp des Spendergewebes. Durch die Kombination aus genetischer Variation und Gewebeübertragung ließ sich die Zeitinformation somit räumlich dem transplantierten Kerngebiet zuordnen. Gemessen wurde der Aktivitätsrhythmus der Versuchstiere. [7]
DLMO: den Beginn des Melatoninanstiegs messen
Die innere Phase lässt sich über wiederkehrende körperliche Messgrößen erfassen. DLMO steht für dim light melatonin onset, den Beginn des Melatoninanstiegs unter gedämpfter Beleuchtung. In Lichtversuchen wird dieser Zeitpunkt vor und nach einer Exposition bestimmt. Der zeitliche Abstand zwischen beiden Messungen beschreibt dann die Phasenverschiebung. Entscheidend sind kontrollierte Lichtbedingungen und eine gleichartige Bestimmung des Beginns. [9]
Warum der Zeitpunkt eines Lichtsignals zur Versuchsbeschreibung gehört
St Hilaire und Kollegen teilten 2012 Teilnehmende zufällig einer einstündigen Exposition mit hellem weißem Licht oder einer Kontrollbedingung mit sehr schwachem Licht zu; jede Gruppe umfasste 18 Personen. Die Exposition fand zu unterschiedlichen circadianen Phasen statt. Aus dem Melatoninbeginn vor und nach dem Lichtreiz entstand eine Phasen-Antwort-Kurve. Sie beschreibt die zeitabhängige Verschiebung. Der Vergleich mit früheren längeren Expositionen zeigte zudem einen nichtlinearen Zusammenhang zwischen Dauer und Stärke der Phasenverschiebung. [9]
Melanopische EDI beschreibt Licht mit einer eigenen spektralen Gewichtung
Licht besteht aus einer Verteilung verschiedener Wellenlängen. Bei der melanopischen äquivalenten Tageslichtbeleuchtungsstärke, kurz melanopische EDI, wird diese Verteilung nach der Melanopsin-Empfindlichkeit gewichtet und auf das Standardtageslicht D65 bezogen. Der Wert wird in Lux angegeben. Die klassische photopische Beleuchtungsstärke verwendet die Gewichtung des Tagessehens. Zur Interpretation einer Lichtmessung gehören deshalb Messgröße, Spektrum und Messort. Für die Wirkung am Auge ist die dort ankommende Beleuchtung maßgeblich. [10]
Tageszeit, Expositionsdauer und vorausgehendes Licht wirken zusammen
Ein Lichtsignal trifft auf ein System mit einer eigenen laufenden Phase. Zusätzlich zu Spektrum und Intensität beeinflussen Expositionsdauer und vorausgehende Beleuchtung die gemessene Antwort. Diese Angaben machen Versuchsbedingungen vergleichbar. Im Alltag entsteht die Lichtexposition aus mehreren Situationen: Aufenthalt draußen, Innenraumbeleuchtung und Licht während der Abend- und Nachtstunden. Ihr zeitlicher Verlauf verbindet die Umgebung mit den retinalen Eingangssignalen der circadianen Uhr. [10]
Häufige Fragen
Warum gibt es zwei SCN? Das Kerngebiet ist paarig angelegt. Die beiden Zellgruppen liegen rechts und links des dritten Ventrikels unmittelbar oberhalb der Sehnervenkreuzung. [1]
Wie kommt aus vielen Zellen ein gemeinsamer Rhythmus zustande? Botenstoffe wie VIP vermitteln Signale zwischen den Zellen. Diese Kopplung unterstützt ihre rhythmische Aktivität und die zeitliche Abstimmung im Netzwerk. [5]
Was bedeutet eine frühere innere Phase? Ein gemessenes circadianes Ereignis, etwa der Melatoninbeginn, tritt im gewählten Zeitbezug früher auf. Sein Verlauf wird anhand wiederholter Messungen unter vergleichbaren Bedingungen bestimmt. [9]
Medizinische Bezeichnungen in diesem Kapitel
- Nucleus suprachiasmaticus: Kerngebiet oberhalb der Sehnervenkreuzung; Mehrzahl Nuclei suprachiasmatici.
- Diencephalon: Zwischenhirn; umfasst unter anderem Thalamus und Hypothalamus.
- Ventriculus tertius: dritter Hirnventrikel.
- Chiasma opticum: Sehnervenkreuzung.
- Retina: Netzhaut des Auges.
- Tractus retinohypothalamicus: Netzhaut-Hypothalamus-Bahn.
- Nucleus cellularis und Cytoplasma: Zellkern und Zellplasma.
- Transkription und Translation: Abschrift genetischer Information in RNA und Herstellung von Proteinen anhand der RNA.
- Astrozyten: sternförmige Gliazellen.
- Glandula pinealis: Zirbeldrüse.
- Entrainment: Synchronisation eines Rhythmus mit einem äußeren Zeitgeber.
- DLMO: Beginn des Melatoninanstiegs unter gedämpftem Licht.
Die verbundenen Strukturen vertiefen
Encephalon (Gehirn) ordnet Hypothalamus und Ventrikel räumlich ein. Hypothalamus und Hypophyse vertieft die neuroendokrinen Verbindungen. Glandula pinealis (Zirbeldrüse) und Melatonin erklärt den Nervenweg zur Melatoninfreisetzung. Retina (Netzhaut) und Sehbahn erschließt den Aufbau der retinalen Schaltungen.
Quellen und Weiterlesen
- Mitchell JW, Gillette MU (2022): Physiology of the Mammalian Circadian System In: Kryger MH, Roth T, Goldstein CA (Hrsg.), Principles and Practice of Sleep Medicine, 7. Auflage, Kapitel 36, S. 362–363 und Abb. 36.1: circadianes System und SCN-Topografie. Abgerufen am 08.11.2026.
- Hastings MH, Maywood ES, Brancaccio M (2019): The Mammalian Circadian Timing System and the Suprachiasmatic Nucleus as Its Pacemaker Biology 8(1):13. Abschnitte The SCN as the Central Circadian Pacemaker und Neurochemical Heterogeneity in the SCN: Eingänge, Projektionswege und Koordination der Gewebeuhren. Abgerufen am 08.11.2026.
- Takahashi JS (2017): Transcriptional architecture of the mammalian circadian clock Nature Reviews Genetics 18(3):164–179. Abschnitte zur Transkriptions-Translations-Rückkopplung und zur Regulation der Proteinstabilität. Abgerufen am 08.11.2026.
- Berson DM, Dunn FA, Takao M (2002): Phototransduction by Retinal Ganglion Cells That Set the Circadian Clock Science 295(5557):1070–1073. S. 1070: Ableitungen aus markierten retinalen Ganglienzellen der Ratte, synaptische Blockade und intrinsische Lichtantwort. Abgerufen am 08.11.2026.
- Aton SJ et al. (2005): Vasoactive intestinal polypeptide mediates circadian rhythmicity and synchrony in mammalian clock neurons Nature Neuroscience 8(4):476–483. Ergebnisse zu VIP/VPAC2, Laufradaktivität in Dunkelheit und mehrtägigen Einzelzellableitungen. Abgerufen am 08.11.2026.
- Brancaccio M et al. (2017): Astrocytes Control Circadian Timekeeping in the Suprachiasmatic Nucleus via Glutamatergic Signaling Neuron 93(6):1420–1435.e5. Ergebnisse zu Calciumrhythmen und Glutamat sowie zu genetisch veränderten Zelluhren in Schnittkulturen und adulten Mäusen. Abgerufen am 08.11.2026.
- Ralph MR et al. (1990): Transplanted suprachiasmatic nucleus determines circadian period Science 247(4945):975–978. DOI 10.1126/science.2305266. Transplantation und genetisch bestimmte Periodenlänge im Hamstermodell. Abgerufen am 08.11.2026.
- Duffy JF et al. (2011): Sex difference in the near-24-hour intrinsic period of the human circadian timing system PNAS 108(Suppl. 3):15602–15608. Abstract, Einleitung und Results: kontrollierte Untersuchungen der intrinsischen Periode bei 157 Erwachsenen. Abgerufen am 08.11.2026.
- St Hilaire MA et al. (2012): Human phase response curve to a 1 h pulse of bright white light Journal of Physiology 590(13):3035–3045. DOI 10.1113/jphysiol.2012.227892. Randomisierte Lichtexposition, Melatoninbeginn und Phasen-Antwort-Kurve. Abgerufen am 08.11.2026.
- Brown TM et al. (2022): Recommendations for daytime, evening, and nighttime indoor light exposure to best support physiology, sleep, and wakefulness in healthy adults PLOS Biology 20(3):e3001571. Introduction, Abb. 1 und Methodology: spektrale Gewichtung und melanopische äquivalente Tageslichtbeleuchtungsstärke. Abgerufen am 08.11.2026.
- Damiola F et al. (2000): Restricted feeding uncouples circadian oscillators in peripheral tissues from the central pacemaker in the suprachiasmatic nucleus Genes & Development 14(23):2950–2961. DOI 10.1101/gad.183500. Abstract und Ergebnisse zur zeitlich begrenzten Fütterung und Genexpression in Leber und SCN von Mäusen. Abgerufen am 08.11.2026.