Auf einen Blick
- Eine stark gefaltete Rinde umgibt weiße Substanz und tiefe Kerngebiete.
- Moos- und Kletterfasern erreichen verschiedene Stationen der cerebellären Schaltung.
- Purkinje-Zellen hemmen ihre Zielneurone; deren Einbindung in größere Schleifen bestimmt die Wirkung.
Lage zwischen Hinterhaupt und Hirnstamm
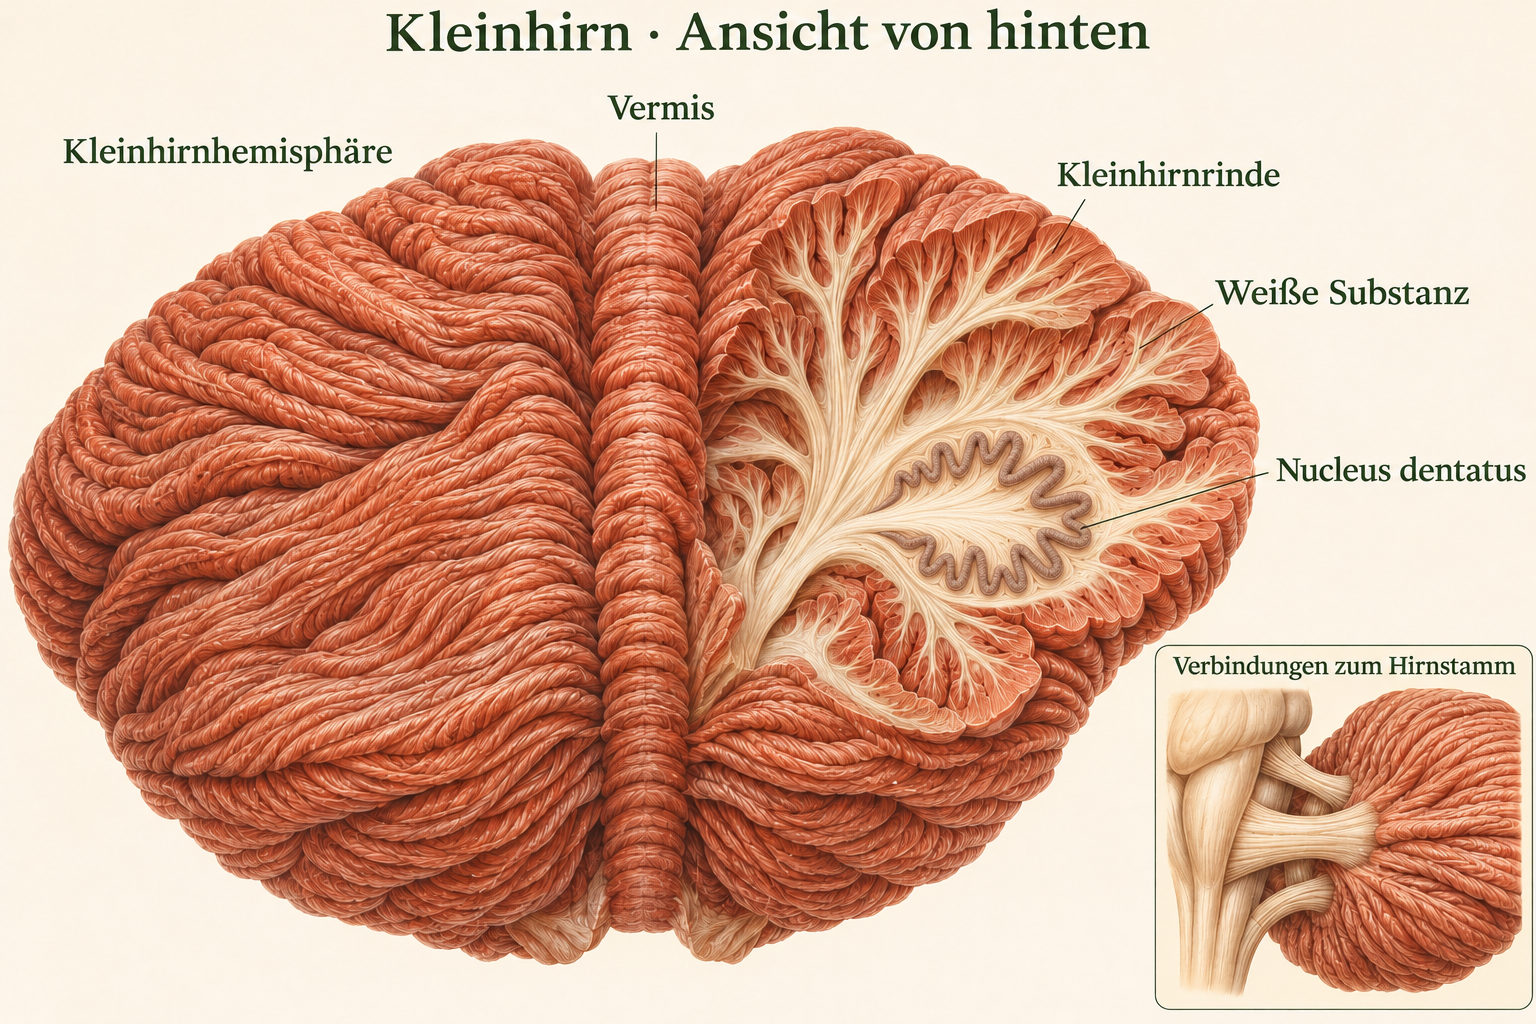
Das Kleinhirn liegt in der hinteren Schädelgrube, dorsal von Brücke und oberer Medulla. Oberhalb trennt das Kleinhirnzelt, eine Duraduplikatur, diese Region von den hinteren Anteilen des Großhirns. Zwischen Kleinhirn und Hirnstamm befindet sich der vierte Ventrikel. Zwei seitliche Hemisphären sind über den mittig gelegenen Vermis verbunden. Die Oberfläche besitzt zahlreiche schmale, annähernd quer verlaufende Blättchen, die Folia. In einem Schnitt entsteht durch die verzweigte weiße Substanz ein baumartiges Muster, der Arbor vitae. [1][51]
Große Fissuren begrenzen den vorderen, den hinteren und den flocculonodulären Lappen. Diese anatomische Einteilung lässt sich an Oberflächenmerkmalen nachvollziehen. Eine weitere, funktionelle Einteilung orientiert sich an Verbindungen zu Rückenmark, Gleichgewichtssystem und Großhirnrinde. Beide Perspektiven beschreiben dasselbe Organ unter verschiedenen Gesichtspunkten. Die funktionellen Gebiete überlappen die sichtbaren Lappengrenzen teilweise; ein äußerlich abgegrenztes Läppchen kann mit mehreren Netzwerken verbunden sein. [34][51]
Gesundheitskapitel
Rinde, Mark und tiefe Kerne
Die graue Kleinhirnrinde liegt außen. Ihre Faltungen vergrößern die Fläche, während weiße Substanz im Inneren eintreffende und ausgehende Fasern führt. In diese weiße Substanz sind beiderseits tiefe Kleinhirnkerne eingebettet. Von medial nach lateral unterscheidet man Nucleus fastigii, Nucleus globosus, Nucleus emboliformis und Nucleus dentatus. Globosus und emboliformis werden gemeinsam als Nuclei interpositi zusammengefasst. Der gezackte Nucleus dentatus ist besonders groß und lateral gelegen. [1][51]
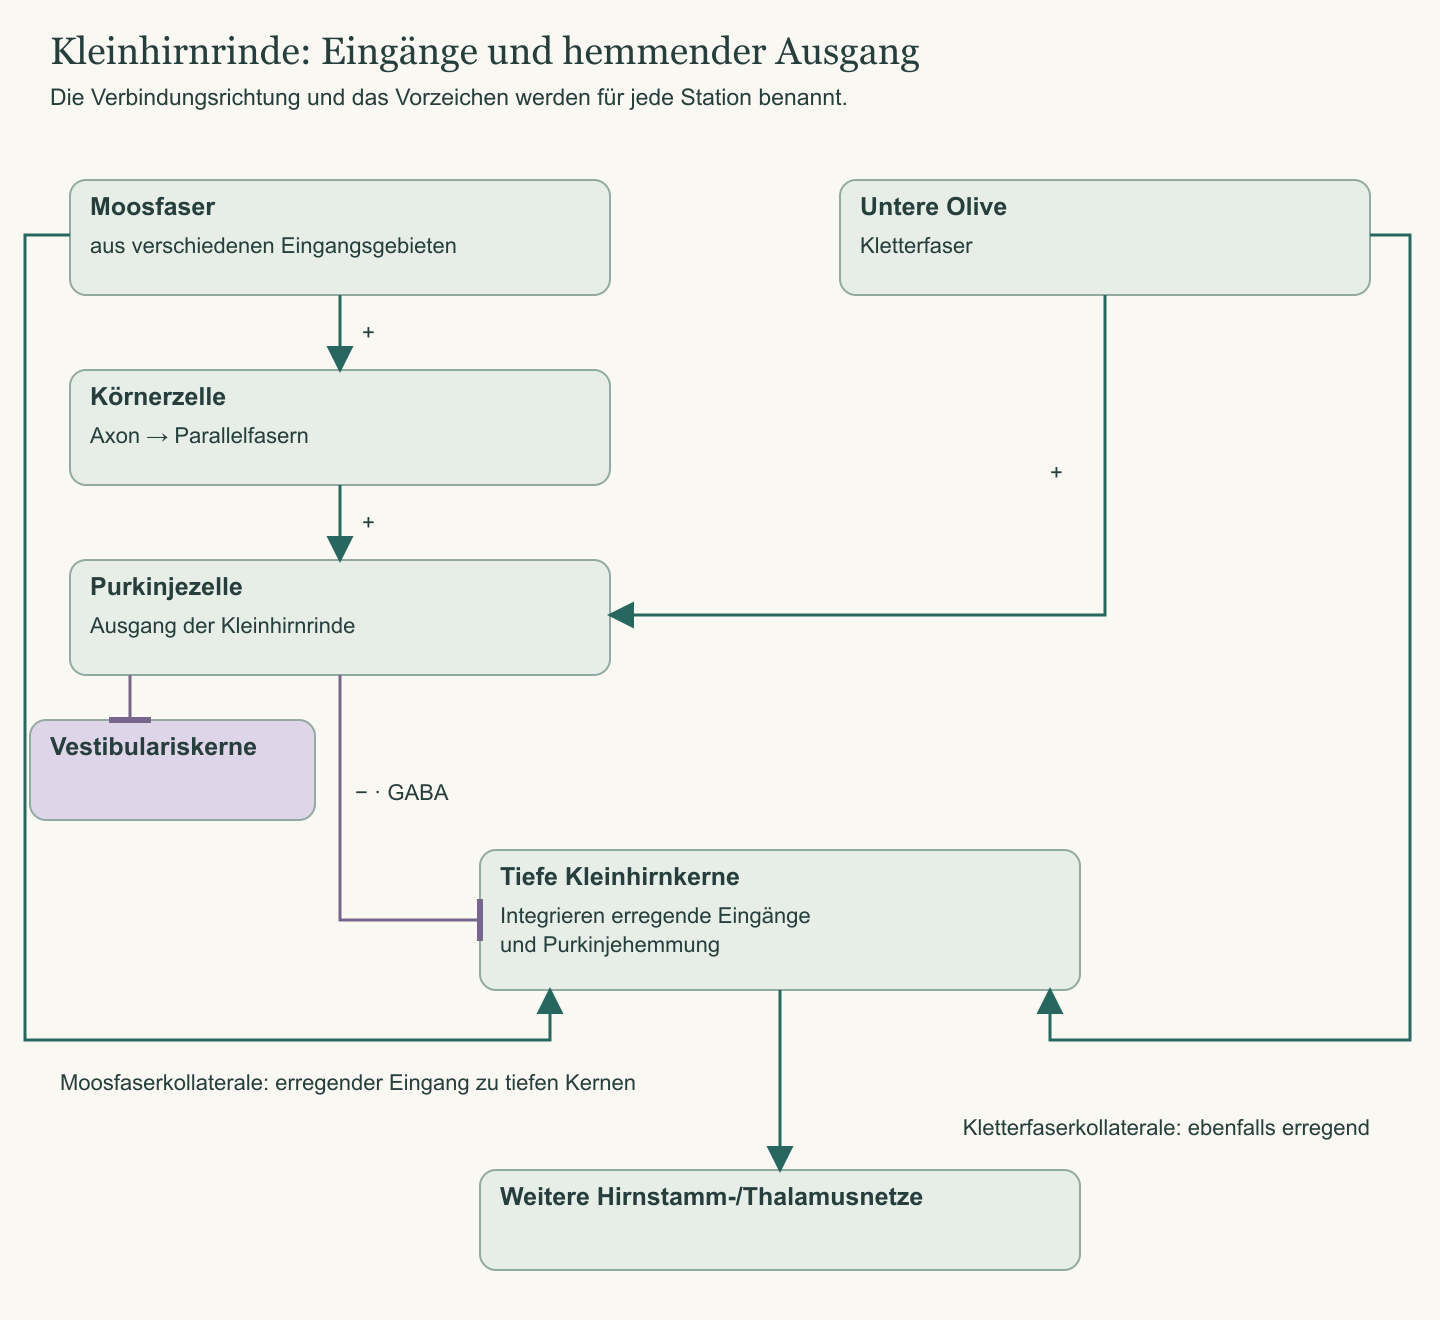
Tiefe Kerne empfangen sowohl Eingänge aus der Rinde als auch erregende Kollateralen eintreffender Fasern. Ihr Ausgang erreicht verschiedene motorische und andere Netzwerke. Ein Teil der Purkinjezellen projiziert außerdem unmittelbar auf Vestibulariskerne im Hirnstamm. Diese Kerne übernehmen damit für bestimmte vestibulozerebelläre Schaltungen eine funktionell ähnliche Ausgangsrolle. Für das Verständnis der Gesamtverschaltung lohnt es sich, den jeweiligen Rindenstreifen zusammen mit seinem zugehörigen Ausgangskern und seinen Zielgebieten zu betrachten. [1][35]
Drei Schichten mit sehr verschiedenen Zellen
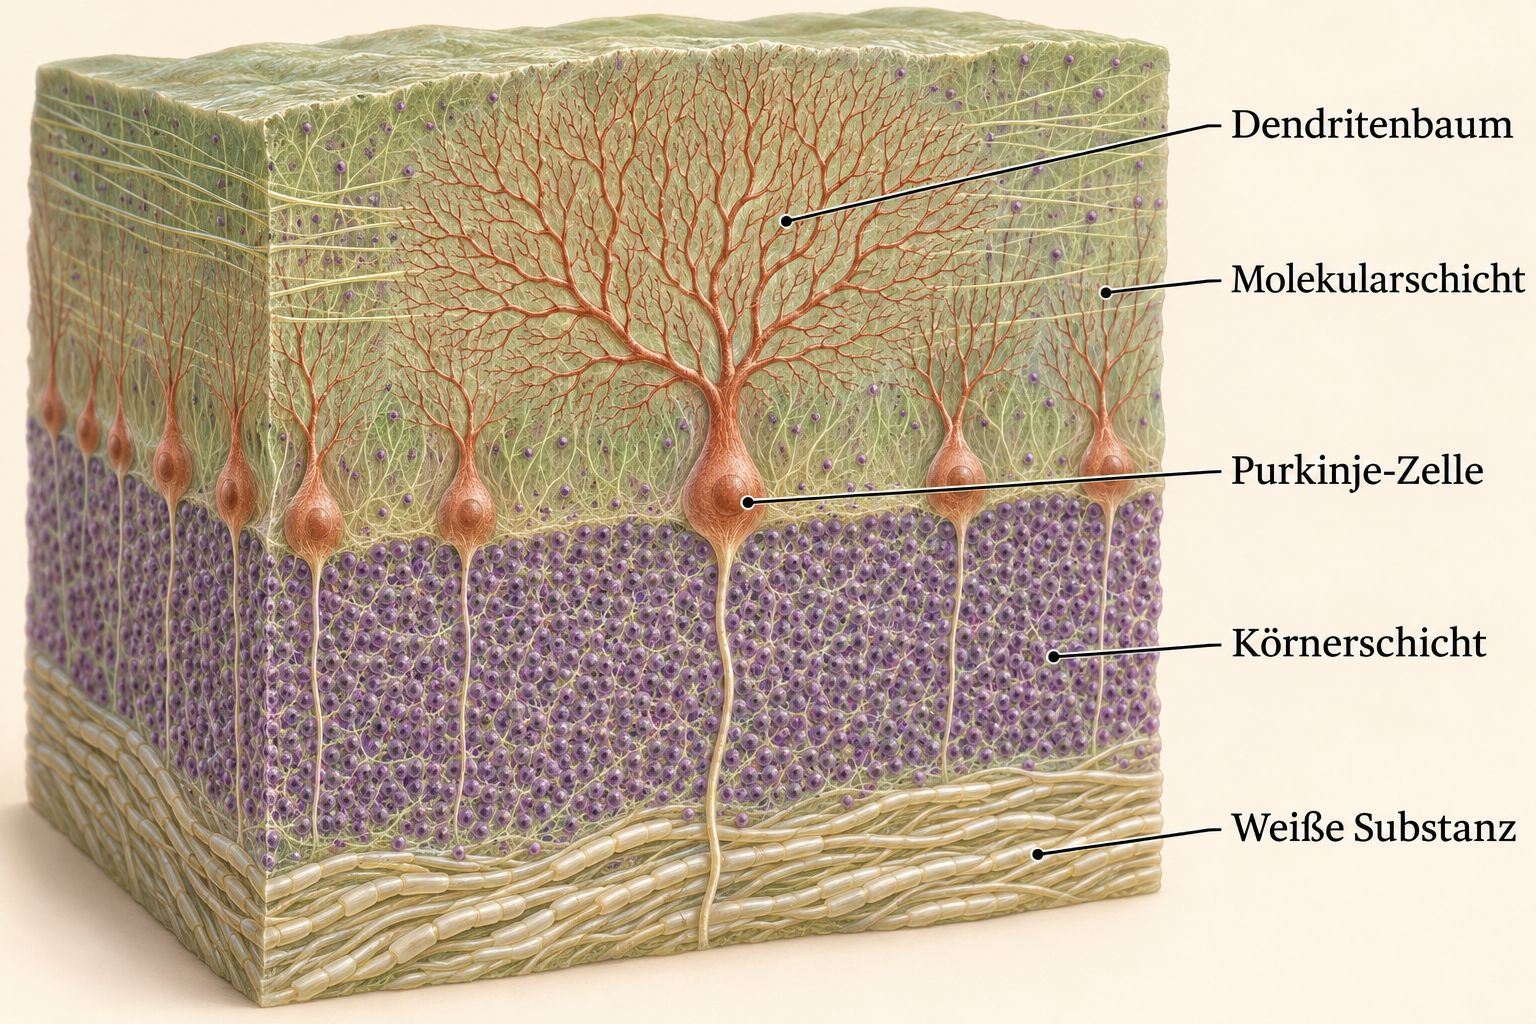
Die äußerste Molekularschicht enthält relativ wenige Zellkörper, dafür zahlreiche Dendriten und Axone. Hier breiten sich die großen Dendritenbäume der Purkinjezellen aus; Parallelfasern verlaufen quer zu deren charakteristischer Fächerorientierung. Darunter bildet die Purkinjezellschicht eine einzelne Reihe großer Zellkörper. In der tiefsten, dicht gepackten Körnerschicht liegen viele kleine Körnerzellen sowie unter anderem Golgizellen. Unter dieser grauen Rinde folgt die weiße Substanz. [15][51]
Die Schichten erfüllen unterschiedliche Aufgaben innerhalb desselben Schaltkreises. Körnerzellen leiten Eingangssignale über ihre aufsteigenden Axone und deren T-förmige Aufteilung in Parallelfasern weiter. Purkinjezellen sammeln viele synaptische Einflüsse an ihrem Dendritenbaum. Lokale hemmende Interneurone regulieren die räumliche und zeitliche Verteilung der Aktivität. Histologische Schicht und funktionelle Verbindung ergänzen sich: Eine Zelle kann ihren Zellkörper in einer Schicht haben, während ihre Fortsätze andere Schichten erreichen. [1][15]
Gesundheitskapitel
Zwei wichtige Eingangssysteme
Moosfasern stammen aus unterschiedlichen Quellen, darunter Brückenkerne, Rückenmark und vestibuläre Gebiete. In der Körnerschicht bilden ihre Endigungen zusammen mit Körnerzelldendriten und weiteren Elementen synaptische Komplexe. Der Weg zur Purkinjezelle verläuft dann über Körnerzelle und Parallelfaser. Zusätzlich erreichen Kollateralen der Moosfasern tiefe Kerngebiete. Informationen können die Ausgangsneurone somit sowohl über einen direkten Kollateralweg als auch über die Rindenverarbeitung beeinflussen. [1][34]
Kletterfasern stammen aus dem unteren Olivenkomplex. Sie kontaktieren Purkinjezellen besonders wirksam und besitzen ebenfalls Verbindungen zu tiefen Kernen. Diese Eingänge beteiligen sich an der Verarbeitung von Ereignissen, Vorhersageabweichungen und Lernsignalen, wobei ihre Bedeutung von Aufgabe und Schaltkreis abhängt. Das grundlegende Leitungsschema unterscheidet deshalb die Moosfaser-Körnerzell-Parallelfaser-Kette vom olivozerebellären Kletterfaserweg. Beide treffen auf denselben Rindentyp, bringen aber unterschiedlich organisierte Informationen ein. [1][35]
Der Purkinjeausgang ist hemmend
Purkinjezellen bilden den Ausgang der Kleinhirnrinde. Sie wirken überwiegend über den Botenstoff GABA hemmend auf ihre Zielneurone in tiefen Kernen beziehungsweise vestibulären Kerngebieten. Erregende Eingänge und zeitlich strukturierte Hemmung bestimmen gemeinsam, wie diese Ausgangsneurone reagieren. Ein hemmendes Rindenneuron kann daher die Präzision einer Bewegung unterstützen, indem es Aktivitäten passend begrenzt, zeitlich ordnet und im Zusammenspiel mit weiteren Eingängen verändert. [1][35]
Für einen anschaulichen Ablauf kann man einen eingehenden Bewegungszusammenhang verfolgen: Brücken- und andere Eingänge erreichen das Kleinhirn, Rindenschaltungen verarbeiten diese Signale, tiefe Kerne integrieren die verschiedenen Einflüsse, und ausgehende Bahnen wirken auf Hirnstamm- sowie thalamokortikale Netzwerke. Viele dieser Verbindungen sind in Schleifen organisiert. Auf diese Weise bleibt die Berechnung des Kleinhirns in laufende Handlungen und ihre sensorischen Folgen eingebunden. [34][51]
Die drei Kleinhirnstiele
Der mittlere Kleinhirnstiel ist besonders mächtig. Er führt überwiegend Fasern aus Brückenkernen, deren Verbindungen von der Großhirnrinde beeinflusst werden. Die pontozerebellären Fasern kreuzen und erreichen die gegenüberliegende Kleinhirnhemisphäre. Der untere Stiel enthält unter anderem Eingänge aus Rückenmark, unterer Olive und vestibulären Gebieten sowie bestimmte Ausgänge. Sein Bündel umfasst daher verschiedene Signalrichtungen und Quellen. [34][51]
Über den oberen Kleinhirnstiel verlassen viele Fasern der tiefen Kerne das Organ und erreichen nach Kreuzung unter anderem roten Kern und Thalamus. Er enthält zusätzlich bestimmte eintreffende Bahnen. Die Verbindung zur motorischen Großhirnrinde schließt sich über thalamische Umschaltungen; Verbindungen zu spinalen Netzwerken laufen über weitere Zentren. Die Namen oberer, mittlerer und unterer Stiel bezeichnen anatomische Zugangsregionen, während die konkreten Bahnnamen Herkunft, Verlauf und Ziel präzisieren. [1][34]
Gesundheitskapitel
Körpermitte, Gliedmaßen und Gleichgewicht
Vermale und benachbarte intermediäre Gebiete stehen eng mit axialer Haltung sowie laufender Gliedmaßenkoordination in Verbindung. Laterale Hemisphären besitzen ausgeprägte Verbindungen mit Großhirnnetzwerken und tragen unter anderem zur Planung und Abstimmung komplexer Abläufe bei. Flocculus, Nodulus und weitere vestibulär verbundene Gebiete beeinflussen Gleichgewicht und Blickstabilisierung. Diese Gliederung erleichtert die Orientierung, obwohl tatsächliche Repräsentationen feiner und über mehrere Regionen verteilt sind. [1][51]
Dass eine Kleinhirnhemisphäre bei Gliedmaßenbewegungen überwiegend mit der gleichen Körperseite zusammenhängt, ergibt sich aus den gesamten Kreuzungsverhältnissen der beteiligten Schleifen. Beispielsweise kreuzt ein wichtiger Kleinhirnausgang zum gegenüberliegenden Thalamus, während kortikospinale Einflüsse später erneut auf die andere Körperseite wechseln. Andere Verbindungen folgen eigenen Verläufen. Für die Seitenzuordnung muss deshalb die ganze Route verfolgt werden, einschließlich ihrer Umschaltungen. [1][51]
Vorhersage, Rückmeldung und Lernen
Sensorische Rückmeldungen benötigen Zeit, bis sie verarbeitet werden. Bei schnellen Handlungen arbeitet das Nervensystem daher mit vorausberechneten Folgen und laufenden Korrekturen. Kleinhirnschaltungen tragen dazu bei, erwartete und eintreffende Informationen aufeinander zu beziehen und das zeitliche Muster einer Handlung anzupassen. Die Begriffe Vorwärtsmodell und Fehlersignal beschreiben wichtige wissenschaftliche Modelle solcher Leistungen. Unterschiedliche Aufgaben beanspruchen die zugrunde liegenden Teilnetzwerke in verschiedener Weise. [1][51]
Beim wiederholten Üben verändern sich synaptische Wirkungen innerhalb mehrerer beteiligter Systeme. Die anatomisch regelmäßige Kleinhirnrinde bietet dafür viele miteinander abgestimmte Verbindungen; auch tiefe Kerne und außerhalb des Kleinhirns gelegene Netzwerke sind beteiligt. Eine beobachtete Verbesserung lässt sich deshalb sinnvoll als Leistung eines gesamten Lernnetzwerks beschreiben. Welche zelluläre Veränderung den größten Anteil besitzt, ist eine Frage der konkreten Aufgabe und der jeweiligen Untersuchung. [1][36]
Verbindungen reichen über Bewegung hinaus
Untersuchungen der funktionellen Vernetzung beim Menschen zeigen Verbindungen großer Kleinhirnanteile mit kortikalen Assoziationsnetzwerken. In einer Studie mit insgesamt 1.000 Personen wurden Muster in einer Entdeckungs- und einer unabhängigen Replikationsgruppe verglichen. Die Befunde erweitern die rein motorische Betrachtung um Netzwerke, die unter anderem an kognitiver Verarbeitung beteiligt sind. Ruhe-fMRT misst dabei Zusammenhänge zeitlicher Signale; für die anatomische Richtung einzelner Verbindungen sind zusätzliche Methoden erforderlich. [36]
Was Störungen sichtbar machen
Kleinhirnstörungen können sich als unsichere Zielbewegungen, gestörte zeitliche Abstimmung, schwankender Gang, auffällige Augenbewegungen oder veränderte Sprechkoordination zeigen. Dysmetrie bezeichnet ein unpassendes Maß einer Zielbewegung; Dysdiadochokinese eine gestörte rasche Folge gegensinniger Bewegungen. Ein Intentionstremor kann beim Annähern an ein Ziel deutlicher werden. Solche Zeichen werden im Zusammenhang von Kraft, Sensibilität, vestibulärer Funktion und weiteren neurologischen Befunden beurteilt. [1][51]
Die neurologische Untersuchung beobachtet unterschiedliche Aufgaben und Körperregionen, um das Muster zu erfassen. Bildgebung ergänzt die Frage nach Lage und Art struktureller Veränderungen. Anatomisch wichtig ist die Unterscheidung von Rinde, tiefen Kernen, Stielen und angrenzendem Hirnstamm: Sie können ähnliche Funktionen über verschiedene Stellen desselben Netzwerks beeinflussen. Dadurch wird verständlich, warum die Bezeichnung Koordinationsstörung zunächst eine beobachtete Leistung beschreibt und erst weitere Befunde den Ort genauer bestimmen. [36][51]
Stationen der cerebellären Schaltung
| Struktur oder Weg | Aufbau und Zusammenhang |
|---|---|
| Moosfaser | Erregender Eingang auf Körnerzellen sowie über Kollateralen auf tiefe Kernneurone. [1][35] |
| Körnerzelle und Parallelfaser | Das Axon steigt in die Molekularschicht und verzweigt sich; Parallelfasern erregen unter anderem Purkinje-Zellen. [1][35] |
| Kletterfaser | Stammt aus der unteren Olive und erreicht Purkinje-Zellen direkt; Kollateralen erreichen die tiefen Kerne. [1][35] |
| Purkinje-Zelle | Hemmender Rindenausgang zu tiefen Kernen oder bestimmten Vestibulariskernen. [1][34][35] |
| Tiefe Kerne | Verknüpfen direkte erregende Eingänge mit Purkinje-Hemmung und geben Ausgänge an weitere Hirngebiete ab. [1][34] |
Wichtige Begriffe
- Folia
- Schmale Blättchen der stark gefalteten Kleinhirnoberfläche. [1][15]
- Vermis
- Mittlerer Teil des Kleinhirns zwischen den Hemisphären. [1][34]
- Purkinje-Zelle
- Großes hemmendes Projektionsneuron der Kleinhirnrinde mit verzweigtem Dendritenbaum. [1][35]
- Nucleus dentatus
- Lateral gelegener tiefer Kleinhirnkern mit stark gefaltetem grauem Zellband. [1][34]
Häufige Fragen
Im Gesundheitswissen weiterlesen
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- UTHealth Houston: Cerebellum Knierim, Neuroscience Online, Section3 Chapter5, reviewed20.10.2020. Abgerufen am 07.11.2026.
- Universität Basel: Cerebellum Histologie, menschliches Kleinhirn, H&E. Abgerufen am 07.11.2026.
- Purves et al.: Organization of the Cerebellum Neuroscience, 2ndEd, Sinauer2001. Abgerufen am 07.11.2026.
- Purves et al.: Cerebellar Circuitry Neuroscience, 2ndEd, Sinauer2001. Abgerufen am 07.11.2026.
- Buckner et al.: The organization of the human cerebellum estimated by intrinsic functional connectivity J Neurophysiol106, 2322–2345, 2011. DOI10.1152/jn.00339.2011. Abgerufen am 07.11.2026.
- Naturheilpraxis Heute: Kleinhirn Bierbach, Elvira(Hrsg.):Naturheilpraxis Heute.Lehrbuch und Atlas.7.Auflage, Elsevier2024.Abschnitt 23.2.3. Abgerufen am 07.11.2026.