Auf einen Blick
- Mukosa, Submukosa, äußere Muskelwand und Bedeckung gliedern den Darm von innen nach außen.
- Apikale Aufnahme und basolaterale Weitergabe bilden den vollständigen Weg durch einen Enterozyten.
- Wasserlösliche Nährstoffe erreichen vor allem den Blutweg; Chylomikronen gelangen zunächst in die Lymphe.
Vier Wandschichten vom Lumen nach außen
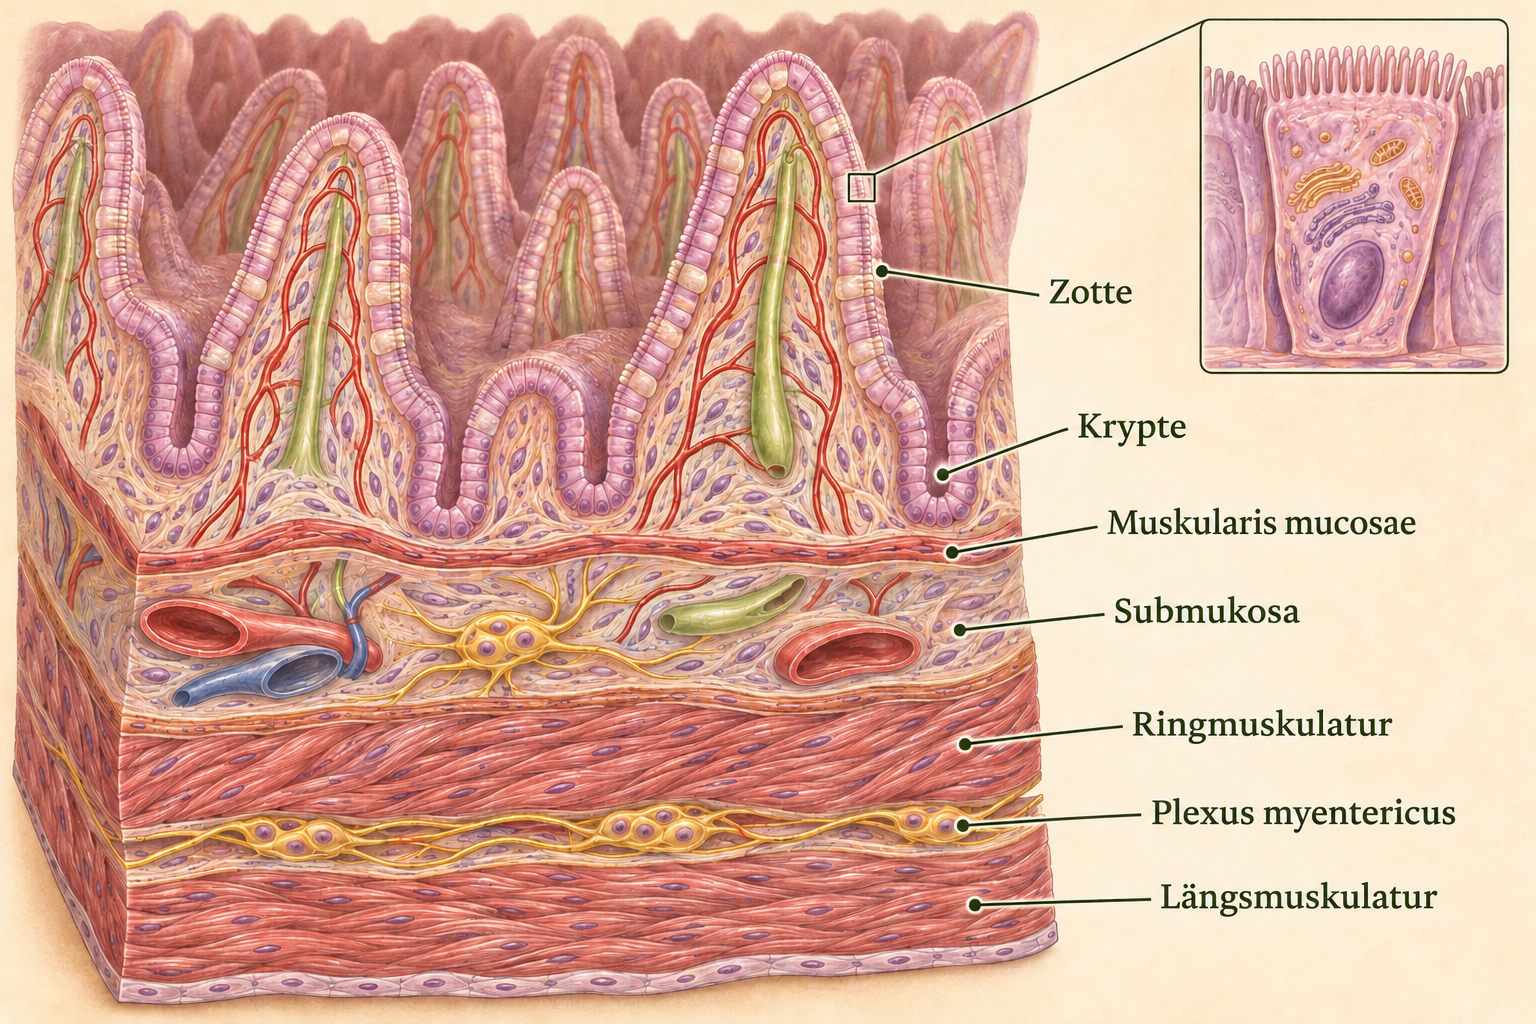
Das Darmlumen ist der mit der Außenwelt verbundene Innenraum des Darmrohrs. An ihm liegt die Mukosa, die Schleimhaut. Sie umfasst das Epithel, seine bindegewebige Unterlage, die Lamina propria, und eine dünne Muskelschicht, die Muscularis mucosae. Das Epithel stellt den unmittelbaren Zellkontakt zum Inhalt her; darunter liegen kleine Gefäße, Lymphwege und Zellen der örtlichen Abwehr. [33] [55]
Unter der Mukosa folgt die Submukosa. In ihrem Bindegewebe verlaufen größere Blut- und Lymphgefäße sowie Anteile des submukösen Nervengeflechts. Die äußere Muskularis besteht im typischen Darmabschnitt aus innerer Ring- und äußerer Längsmuskulatur. Dazwischen liegt der Plexus myentericus. Diese Anordnung verbindet eine lokale Steuerung der Schleimhaut mit der Koordination größerer Wandbewegungen. [18] [55]
Außen schließt sich je nach Lage eine Serosa oder eine Adventitia an. Eine Serosa besitzt einen glatten Mesothelüberzug und liegt an beweglichen, vom Bauchfell bedeckten Oberflächen. Adventitia bindet die Wand bindegewebig an ihre Umgebung. Ein Mesenterium führt als Aufhängung unter anderem versorgende Gefäße und Nerven zum Darm. Die Anbindung bestimmt mit, wie frei sich ein Abschnitt im Bauchraum bewegen kann. [55]
Die dünne Muscularis mucosae und die kräftige äußere Muskularis liegen auf verschiedenen Ebenen. Die erste verändert örtlich die Schleimhaut, die zweite formt die Bewegungen des Darmrohrs. Für das Lesen einer Schnittzeichnung sind diese Grenzen besonders hilfreich: Krypten gehören zur Schleimhaut, submuköse Gefäße liegen darunter, und die großen Motilitätsgeflechte befinden sich noch weiter außen zwischen den Muskelschichten. [33] [55]
Falte, Zotte und Mikrovillus sind verschiedene Ebenen
Im Dünndarm erhöhen Ringfalten die Kontaktfläche; an ihnen beteiligen sich Schleimhaut und Submukosa. Auf der Schleimhaut stehen Zotten in das Lumen vor. Jede Zotte enthält einen bindegewebigen Kern und wird von einem einschichtigen Epithel überzogen. An der einzelnen resorbierenden Zelle sitzen zusätzlich dicht nebeneinander Mikrovilli. Ihr gemeinsamer Eindruck im Lichtmikroskop heißt Bürstensaum. [33] [55]
Die Mikrovilli sind Ausstülpungen der apikalen Zellmembran. Sie vergrößern die Fläche, auf der Enzyme und Transportproteine arbeiten können. Ein Aktingerüst stabilisiert sie im Zellinneren. Am Bürstensaum treffen fertig oder teilweise vorverdaute Stoffe unmittelbar auf Enzyme und Aufnahmewege. Die Oberflächengliederung schafft dadurch Kontakt und kurze Wege zwischen Endverdauung und Transport. [33] [43]
Gesundheitskapitel
Innerhalb einer Zotte liegen Blutkapillaren und ein zentraler initialer Lymphweg, das Lacteal. Sie übernehmen unterschiedliche Transportanteile aus der Schleimhaut. Wasserlösliche Nährstoffe erreichen überwiegend die Blutbahn; größere, in der Zelle zusammengesetzte Fetttransportteilchen gelangen vor allem in den Lymphweg. Die feinen Gefäße liegen im Bindegewebe unterhalb des Epithels und besitzen eigene Wände. [43] [55]
Zwischen den Zotten senken sich Krypten in die Schleimhaut ein. Dort liegen teilungsfähige Stamm- und Vorläuferzellen. Aus ihren Nachkommen entstehen verschiedene spezialisierte Epithelzellen. Viele wandern mit ihrer Reifung in Richtung Oberfläche; Panethzellen verbleiben typischerweise tiefer im Dünndarmkryptenbereich. Die Erneuerung wird durch Signale aus epithelialen und umgebenden mesenchymalen Zellen organisiert. [33] [47]
Eine Oberfläche mit mehreren Zellaufgaben
Enterozyten stellen einen großen Teil der resorbierenden Dünndarmoberfläche. Ihre apikale Seite trägt den Bürstensaum, ihre basolaterale Seite grenzt an den Geweberaum. Becherzellen geben Muzine ab, die den Schleim bilden. Enteroendokrine Zellen reagieren auf Signale des Darminhalts und geben Botenstoffe an die Gewebeseite ab. Panethzellen beteiligen sich mit antimikrobiellen Produkten an der Kryptenumgebung. [33] [47]
Diese Zellen entwickeln sich in einer gemeinsamen epithelialen Organisation und besitzen regional unterschiedliche Verteilungen. In der Lamina propria befinden sich zusätzliche Abwehrzellen, Gefäße und Bindegewebszellen. Dadurch können aufgenommenes Material, epitheliale Signale und die örtliche Immunantwort räumlich aufeinander bezogen werden. Geordnete Zellkontakte halten die Oberfläche während laufender Zellneubildung zusammen. [47] [62]
Im Dickdarm besitzt die Oberfläche tiefe Krypten und zahlreiche Becherzellen, während Dünndarmzotten fehlen. Resorbierende Kolonozyten verarbeiten dort vor allem Wasser, Elektrolyte und mikrobielle Stoffwechselprodukte. Der Grundplan aus Epithel, Bindegewebe und Muskelschichten bleibt erhalten, wird aber für die Aufgaben des jeweiligen Abschnitts anders ausgestaltet. [25] [49]
Mikroorganismen des Dickdarms bilden durch Fermentation unter anderem Acetat, Propionat und Butyrat. Diese kurzkettigen Fettsäuren können von der Schleimhaut aufgenommen und weiterverarbeitet werden; Butyrat trägt wesentlich zur Energieversorgung von Kolonozyten bei. Damit wird auch ein Teil des im Lumen verbliebenen Materials auf einem zusätzlichen Weg für das Gewebe nutzbar. [43] [60] [61]
Resorption braucht einen Eintritt und einen Austritt
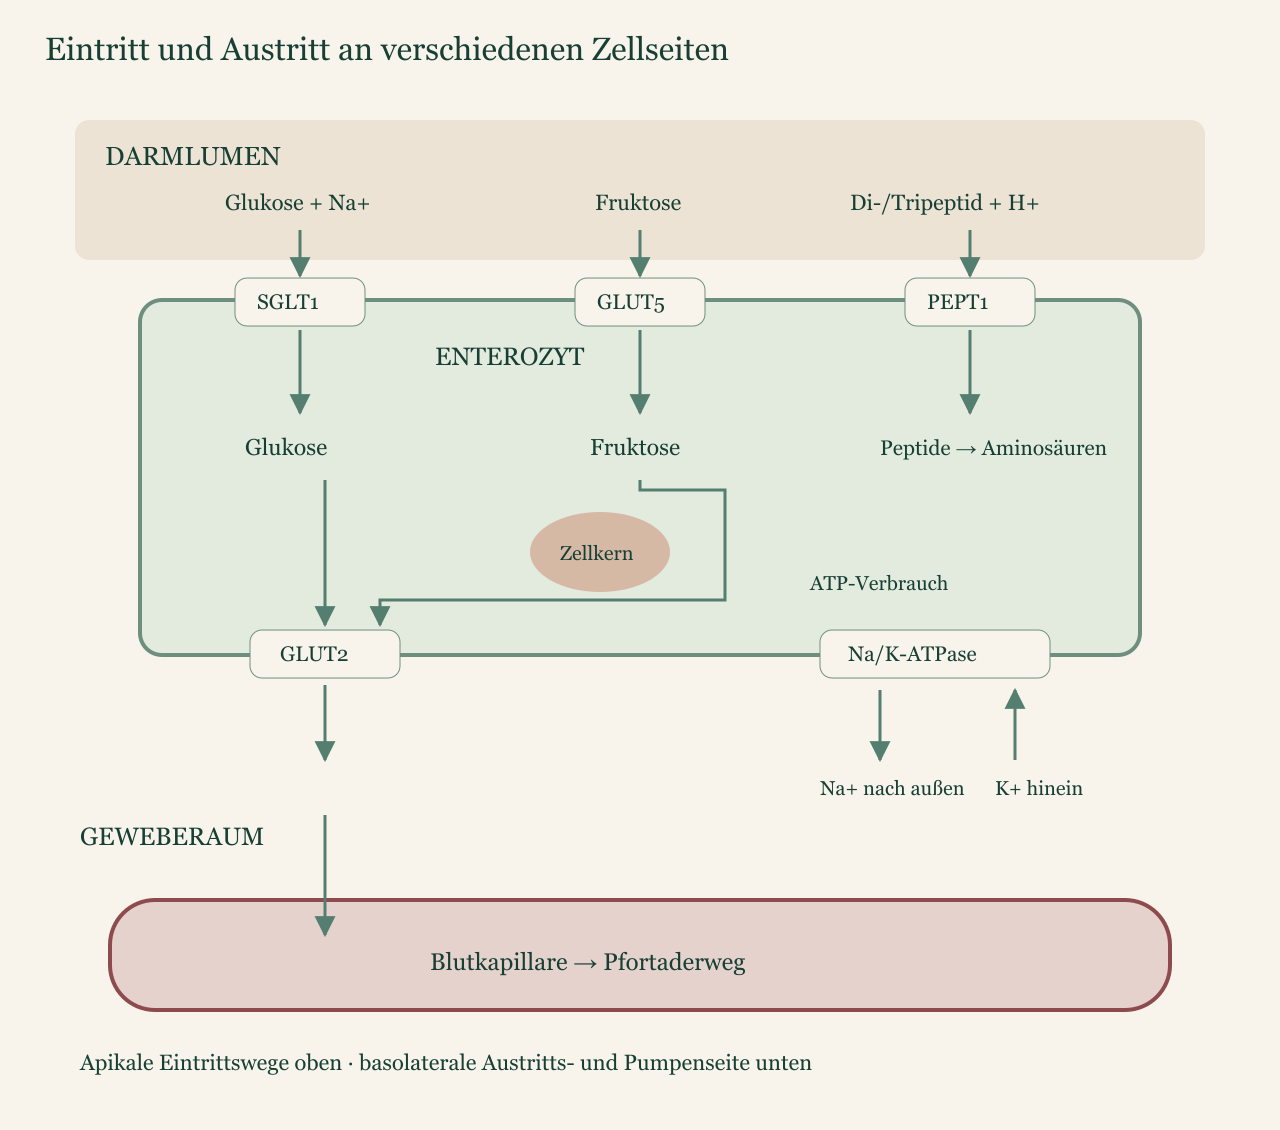
Ein Stoff, der aus dem Darmlumen in die Blutbahn gelangen soll, muss mehrere Grenzen überwinden. Beim transzellulären Weg tritt er durch die apikale Membran in eine Epithelzelle ein und verlässt sie über die basolaterale Membran wieder. Danach folgen der Geweberaum und die Gefäßwand. Die Aufnahme in die Epithelzelle und ihre Weitergabe an das Gewebe bilden aufeinanderfolgende Abschnitte dieses Transportwegs. [43]
Apikale und basolaterale Zellmembran besitzen unterschiedliche Transportproteine. Die basolaterale Na/K-ATPase exportiert unter ATP-Verbrauch Natrium und nimmt Kalium auf. Dadurch bleibt die Natriumkonzentration im Zellinneren niedrig. Verschiedene apikale Cotransporter nutzen den Natriumeinstrom, um Nährstoffe mitzunehmen. Die dafür nötige Energie wird auf diese Weise indirekt über den aufgebauten Ionengradienten bereitgestellt. [12] [44]
Daneben besteht ein parazellulärer Weg zwischen den Zellen. Tight Junctions regulieren dessen Durchlässigkeit nach Größe, Ladung und molekularer Ausstattung. Bestimmte Ionen und Wasser können diese Wege im physiologischen Betrieb nutzen. Die Transportleistung der Schleimhaut ergibt sich aus der Kombination von Membrantransport, Zellzwischenräumen, Konzentrationsgefällen und den Bedingungen im angrenzenden Gewebe. [62]
Zucker erreicht über unterschiedliche Carrier die Pfortader
Stärke und Zweifachzucker werden vor der Aufnahme in geeignete kleine Einheiten zerlegt. Amylasen arbeiten bereits im Mund und später im Dünndarmlumen; Enzyme des Bürstensaums vervollständigen wesentliche Schritte. Laktase spaltet beispielsweise Laktose in Glukose und Galaktose. Die Produkte erreichen die Transportproteine an der apikalen Membran. [12] [43]
SGLT1 transportiert Glukose beziehungsweise Galaktose zusammen mit Natrium aus dem Lumen in die Zelle. Für Fruktose ist GLUT5 ein wichtiger apikaler Transporter, der erleichterte Diffusion ermöglicht. Der basolaterale Austritt der aufgenommenen Einfachzucker erfolgt wesentlich über GLUT2. Diese unterschiedliche Verteilung erklärt, wie sich Aufnahme und Abgabe innerhalb einer polarisierten Zelle ergänzen. [12]
Gesundheitskapitel
Nach dem Austritt liegen die Einfachzucker zunächst im Zwischenzell- und Bindegewebsraum. Über die Blutkapillaren der Schleimhaut gelangen sie in die venöse Sammlung und mit dem Pfortaderblut zur Leber. Der Transport verknüpft somit luminale Endverdauung, gerichteten Zelltransport und einen bestimmten Gefäßweg. Die Leber übernimmt anschließend einen wesentlichen Teil der Verarbeitung und Verteilung. [43] [55]
Aminosäuren und kleine Peptide
Eiweiße werden durch aufeinanderfolgende Spaltungsschritte zu kleineren Peptiden und freien Aminosäuren verarbeitet. Im Dünndarm aktiviert die Enteropeptidase zunächst Trypsinogen zu Trypsin; Trypsin beteiligt sich dann an der Aktivierung weiterer pankreatischer Enzymvorstufen. Peptidasen im Lumen und am Bürstensaum ergänzen die Spaltung. Dadurch entstehen verschiedene Substrate für die epithelialen Aufnahmewege. [43] [55]
Freie Aminosäuren nutzen mehrere Transportersysteme mit unterschiedlicher Substratauswahl und Ionenkopplung. Di- und Tripeptide können über PEPT1 zusammen mit Protonen in den Enterozyten gelangen. Ein apikaler Natrium-Protonen-Austausch unterstützt die Voraussetzungen dieses H+-gekoppelten Wegs. In der Zelle spalten Peptidasen die aufgenommenen kleinen Peptide weiter. [32] [43]
Über weitere Transportproteine an der basolateralen Seite verlassen Aminosäuren die Schleimhautzelle und erreichen den Blutweg. Der Bissen wird dadurch auf der Gewebeseite überwiegend in Form von Aminosäuren weitergegeben. Die vielfältigen Transporter erlauben eine abgestimmte Verarbeitung verschiedener Aminosäuregruppen und berücksichtigen zugleich den Eigenbedarf der Epithelzelle. [32] [43]
Fettaufnahme verbindet Bürstensaum, Zellinneres und Lymphe
Die Fettverdauung benötigt eine gute Verteilung der wasserunlöslichen Bestandteile. Gallensalze unterstützen ihre Zugänglichkeit für Enzyme. Pankreaslipase und weitere Enzyme wirken an der Spaltung mit. Aus ihr entstehen unter anderem freie Fettsäuren und Monoacylglycerine. Zusammen mit weiteren lipophilen Stoffen bilden sie gemischte Mizellen, die Spaltprodukte durch die wässrige Umgebung nahe an die apikale Zelloberfläche bringen. [43] [55]
Die Fettbestandteile treten aus diesem Kontaktbereich in den Enterozyten ein. Langkettige Fettsäuren und Monoacylglycerine werden im Zellinneren wieder zu Triglyzeriden verarbeitet. Zusammen mit anderen Lipiden und Proteinen entstehen Chylomikronen. Diese Partikel werden an der basolateralen Seite abgegeben und erreichen über die Lamina propria die initialen Lymphwege der Zotten. [43]
Die Darmlymphe fließt über größere Lymphgefäße und schließlich den Brustlymphgang in den venösen Kreislauf. Kurzkettige und viele mittelkettige Fettsäuren können dagegen bevorzugt den Blutweg zur Pfortader nehmen. Der unterschiedliche Weg hängt unter anderem von Kettenlänge und weiterer Verpackung ab. Die Seiten zu Galle und Lymphsystem erklären die beiden angeschlossenen Systeme. [43] [55]
Manche Nährstoffe besitzen besonders wichtige Aufnahmeorte
Die unterschiedlichen Dünndarmabschnitte besitzen überlappende und zugleich spezialisierte Leistungen. Vitamin B12 zeigt das Zusammenspiel mehrerer Organe besonders deutlich: Nach der Freisetzung aus der Nahrung bindet es zunächst an Haptocorrin. Im Dünndarm ermöglichen pankreatische Enzyme den Wechsel zum Intrinsic Factor aus dem Magen. Der Komplex wird im distalen Ileum rezeptorvermittelt aufgenommen. [53]
Für Nicht-Häm-Eisen ist der obere Dünndarm ein wichtiger Aufnahmeort. Nach geeigneter Aufbereitung kann zweiwertiges Eisen über DMT1 an der apikalen Seite eintreten. Im Enterozyten wird es gespeichert oder über Ferroportin an der basolateralen Seite weitergegeben. Hepcidin aus der Leber kann die Verfügbarkeit von Ferroportin begrenzen. Die Aufnahme wird dadurch mit dem Eisenhaushalt des Körpers verbunden. [54]
Im terminalen Ileum werden außerdem erhebliche Anteile der Gallensalze zurückgewonnen und über den Pfortaderweg erneut zur Leber gebracht. Dieser Kreislauf erhält Stoffe, die zuvor für die Fettverarbeitung in den Darm abgegeben wurden. Regionale Spezialisierung bedeutet daher sowohl Nährstoffaufnahme als auch gezielte Rückführung körpereigener Verdauungshilfen. [55]
Wasser und Elektrolyte bewegen sich mit den gelösten Stoffen
Mit Getränken und Verdauungssekreten kommt fortlaufend Flüssigkeit in das Darmlumen. Der Dünndarm nimmt den größten Teil wieder auf; der Dickdarm verarbeitet den verbliebenen Anteil weiter. Wasser folgt den osmotischen Bedingungen, die durch Stoffaufnahme und Sekretion entstehen. Aufnahme und Abgabe sind gleichzeitig möglich, während für den Gesamteffekt die Bilanz über einen Abschnitt zählt. [44] [49] [55]
Neben der nährstoffgekoppelten Natriumaufnahme trägt der Natrium-Protonen-Austauscher NHE3 wesentlich zur Salzaufnahme bei. Zusammen mit einem Chlorid-Bikarbonat-Austausch kann dies eine gekoppelte Nettoaufnahme von Natriumchlorid ermöglichen. Im distalen Dickdarm kommt Natriumaufnahme über ENaC hinzu. Die eingesetzten Transportwege und ihre Regulation unterscheiden sich entlang des Darmrohrs. [44] [49]
Sekretorische Zellen können Chlorid über apikale Kanäle wie CFTR in das Lumen abgeben. Basolaterale Transporter versorgen sie mit den nötigen Ionen; Natrium und Wasser folgen den resultierenden Verhältnissen. Solche Sekretion trägt zur Beschaffenheit der luminalen Flüssigkeit bei. Ihre Abstimmung mit Resorption und Motilität hält den Inhalt gleitfähig und verarbeitet die laufend eintreffenden Mengen. [44] [49]
Die Stuhlkonsistenz hängt deshalb von mehreren Vorgängen ab: vom verfügbaren osmotisch wirksamen Material, der epithelialen Aufnahme, der Sekretion und der Verweildauer. Entzündliche oder andere Veränderungen können mehrere dieser Ebenen gleichzeitig betreffen. Durchfall lässt sich physiologisch als veränderte Flüssigkeitsbilanz und Passage verstehen, deren konkrete Ursache gesondert geklärt werden muss. [43] [44] [49]
Schleim und Zellkontakte bilden eine regulierte Grenzfläche
Becherzellen liefern mit Muzinen das Gerüst des Schleims. Im Kolon bildet MUC2 einen dichten oberflächennahen und einen lockereren äußeren Bereich. Untersuchungen an menschlichen Sigmabiopsien zeigen, dass gesunde Schleimstrukturen den direkten Kontakt der dichten mikrobiellen Besiedlung mit dem Epithel begrenzen. Der äußere Schleimraum steht dagegen in engem Austausch mit Mikroorganismen. [45] [46]
Unter dem Schleim kontrollieren Zellkontakte den Durchtritt zwischen Nachbarzellen. Die Tight Junction besitzt selektive Wege für kleine Ionen und andere Stoffgruppen; eine tatsächliche Schädigung mit Verlust von Epithelzellen schafft wiederum andere Durchtrittsbedingungen. Schleim, Epithel, Zellkontakte, ständige Erneuerung und örtliche Abwehr tragen gemeinsam zur Barrierefunktion bei. [48] [62]
Die Nervengeflechte der Darmwand stimmen Bewegungen und Sekretion mit lokalen Bedingungen ab. Epitheliale Sinneszellen, Nerven, Glia und Immunzellen tauschen dabei Botenstoffe aus. Die Schleimhaut erfüllt Aufnahme und Schutz im selben Gewebe und verändert ihre Aktivität entsprechend der Situation. Diese örtliche Organisation beschreibt die Vertiefung zum enterischen Nervensystem. [18]
Die Organseite zum Dünndarm ordnet Duodenum, Jejunum und Ileum räumlich ein. Dickdarm und Rektum führt Wasserhaushalt, Schleim und Entleerung weiter. Gemeinsam erklären diese Ebenen, wie der Verdauungsweg die Mahlzeit bewegt und verwertbare Stoffe in Blut und Lymphe überführt. [25] [33] [43]
Wichtige Aufnahmewege im Überblick
| Struktur oder Weg | Wesentlicher Beitrag |
|---|---|
| Glukose und Galaktose | Apikal natriumgekoppelt über SGLT1; basolaterale Abgabe wesentlich über GLUT2 zum Blutweg. [12] |
| Fruktose | Apikaler Eintritt wesentlich über GLUT5; Weitergabe über die Gewebeseite zum Blutweg. [12] |
| Aminosäuren und kleine Peptide | Mehrere Aminosäuretransporter; H+-gekoppelter PEPT1 nimmt Di-/Tripeptide auf. [32] [43] |
| Langkettige Fettbestandteile | Intrazelluläre Verarbeitung und Verpackung in Chylomikronen; Weitergabe vor allem an die Lymphe. [43] |
| Vitamin B12 | Aufnahme des Intrinsic-Factor-Komplexes im distalen Ileum. [53] |
| Nicht-Häm-Eisen | Wichtige Aufnahme im oberen Dünndarm; DMT1 und basolaterales Ferroportin. [54] |
| Wasser und Elektrolyte | Nährstoffgekoppelte sowie weitere Ionenwege erzeugen osmotische Bedingungen für Wasserbewegung. [44] [49] |
Wichtige Begriffe
- Darmlumen (Lumen)
- Innenraum des Darmrohrs mit Kontakt zu Nahrung und Verdauungssekreten. [55]
- Mukosa (Mucosa)
- Schleimhaut aus Epithel, Lamina propria und Muscularis mucosae. [55]
- Epithel (Epithelium)
- Unmittelbare Zellschicht zur Lumenseite. [33] [55]
- Lamina propria
- Bindegewebiges Lager der Schleimhaut mit Gefäßen und örtlichen Abwehrzellen. [55]
- Muscularis mucosae
- Dünne eigene Muskelschicht der Schleimhaut. [55]
- Submukosa (Submucosa)
- Bindegewebe unterhalb der Mukosa mit größeren Gefäßen und Nerven. [55]
- Plexus submucosus (Submucosal plexus)
- Nervengeflechte innerhalb der Submukosa. [18] [55]
- Plexus myentericus (Myenteric plexus)
- Nervengeflecht zwischen Ring- und Längsmuskulatur. [18] [55]
- Muskularis (Muscularis)
- Äußere Muskelwand des Darmrohrs. [55]
- Ringmuskulatur (Circular muscle)
- Innerer zirkulärer Anteil der äußeren Muskelwand. [55]
- Längsmuskulatur (Longitudinal muscle)
- Äußerer longitudinaler Anteil der äußeren Muskelwand. [55]
- Serosa
- Äußere glatte Bedeckung mit Mesothel an bauchfellbedeckten Flächen. [55]
- Mesenterium (Mesentery)
- Aufhängung und Gefäßführungsweg des Darms. [55]
- Enterozyt
- Polarisierte resorbierende Dünndarmepithelzelle mit apikaler Bürstensaumfläche. [33][43]
- Mikrovillus
- Aktinstabilisierter Fortsatz der apikalen Membran einer einzelnen Zelle. [33]
- SGLT1
- Apikaler natriumgekoppelter Transporter für Glukose und Galaktose. [12]
- PEPT1
- Protonengekoppelter apikaler Transporter für Di- und Tripeptide. [32][43]
- Chylomikron
- Im Enterozyten aufgebautes Lipid-Protein-Partikel für den lymphatischen Abtransport von Nahrungsfetten. [43]
Häufige Fragen
Warum braucht eine Darmzelle unterschiedliche Membranseiten?
Zur Lumenseite nehmen spezialisierte Transporter Stoffe auf, zur Gewebeseite geben andere Proteine sie weiter. Die basolaterale Natrium-Kalium-Pumpe erhält ein Ionengefälle, das mehrere apikale Aufnahmewege antreibt. Anschließend folgen Bindegewebe und Gefäßwand. [12][43][44]
Welchen Weg nehmen langkettige Nahrungsfette nach der Aufnahme?
Enterozyten verarbeiten die aufgenommenen Fettbestandteile und verpacken sie in Chylomikronen. Diese verlassen die basolaterale Seite, gelangen in den Lymphweg der Zotte und erreichen über größere Lymphgefäße und den Brustlymphgang den venösen Kreislauf. [43][55]
Quellen und Weiterlesen
- Glucose transporters in the small intestine in health and disease (2020) Pflügers Archiv 472(9):1207–1248. DOI 10.1007/s00424-020-02439-5. Abstract: SGLT1, GLUT2, GLUT5 und apikal/basolaterale Polarität. Abgerufen am 07.11.2026.
- Sharkey KA, Mawe GM (2023): The enteric nervous system Physiol Rev 103(2):1487–1564. DOI 10.1152/physrev.00018.2022. Abstract, General Structure, ICC/SIP-System sowie extrinsische Afferenzen und autonome Einflüsse. Abgerufen am 07.11.2026.
- University of Leeds: Large Intestine Kolonmukosa, Krypten ohne Zotten, Becherzellen und Tänien. Abgerufen am 07.11.2026.
- H+-coupled nutrient, micronutrient and drug transporters in the mammalian small intestine Abschnitt PepT1 als apikaler Di-/Tripeptidtransporter und H+-gekoppelte Aufnahme. Abgerufen am 07.11.2026.
- University of Leeds: Small Intestine Abschnitte Digestion, Crypts und Duodenum: Bürstensaum, Zellerneuerung, Paneth-/Becher-/endokrine Zellen und Brunner-Drüsen. Abgerufen am 07.11.2026.
- Kiela PR, Ghishan FK (2016): Physiology of Intestinal Absorption and Secretion Functional anatomy; Intestinal Na+ absorption; Chloride absorption; Sugar transport; Amino acids and peptide absorption; Lipid Absorption. Best Pract Res Clin Gastroenterol 30:145–159. DOI 10.1016/j.bpg.2016.02.007. Abgerufen am 07.11.2026.
- Regulation of Electroneutral NaCl Absorption by the Small Intestine (2011) Abstract; Introduction; Regulation of ion transporters in epithelial cells: NHE3, Chlorid-Bikarbonat-Austauscher, CFTR und basolaterale Na/K-ATPase. Annu Rev Physiol 73:261–281. DOI 10.1146/annurev-physiol-012110-142244. Abgerufen am 07.11.2026.
- Johansson MEV et al. (2008): The inner of the two Muc2 mucin-dependent mucus layers in colon is devoid of bacteria Discussion: dichte innere und lockere äußere Kolonschleimschicht; Muc2-Modell, Unterschied zum Dünndarm. PNAS 105:15064–15069. DOI 10.1073/pnas.0803124105. Abgerufen am 07.11.2026.
- Johansson MEV et al. (2013): Bacteria penetrate the normally impenetrable inner colon mucus layer in both murine colitis models and patients with ulcerative colitis Originalabstract, Methods and Results: normale humane Sigmabiopsien und Vergleich mit aktiver Colitis. Abgerufen am 07.11.2026.
- Cellular origins and lineage relationships of the intestinal epithelium (2021) Abschnitte crypt-villus architecture, stem-cell niche and differentiated epithelial lineages. Abgerufen am 07.11.2026.
- Song C et al. (2023): Intestinal mucus components and secretion mechanisms: what we do and do not know Abstract; Introduction und mucus-barrier components. Exp Mol Med 55:681–691. DOI 10.1038/s12276-023-00960-y. Abgerufen am 07.11.2026.
- Colonic Fluid and Electrolyte Transport 2022: An Update Originalabstract: CFTR, ENaC, NHE und basolateraler NKCC1 bei Sekretion. Abgerufen am 07.11.2026.
- NIH Office of Dietary Supplements: Vitamin B12 – Health Professional Fact Sheet Introduction: Haptocorrin, pankreatische Freisetzung, Intrinsic Factor und rezeptorvermittelte Aufnahme im distalen Ileum. Abgerufen am 07.11.2026.
- Mechanistic and regulatory aspects of intestinal iron absorption (2014) Abschnitte nonheme iron transport und hepcidin: apikales DMT1, basolaterales Ferroportin, Hepcidinbindung. PMID 24994858. Abgerufen am 07.11.2026.
- Bierbach E (Hrsg.): Naturheilpraxis Heute, 7. Auflage. Elsevier, 2024 Kapitel 13 Verdauungstrakt: 13.2.2 Feinbau der Wand; 13.2.4 Verdauung; 13.2.5 Flüssigkeitsumsatz; 13.2.13 Dünndarm. Abgerufen am 07.11.2026.
- Louis P, Flint HJ (2017): Formation of propionate and butyrate by the human colonic microbiota Originalabstract: Fermentation nicht verdaulicher Kohlenhydrate und mikrobielles Cross-feeding. Environ Microbiol 19:29–41. DOI 10.1111/1462-2920.13589. Abgerufen am 07.11.2026.
- Short-Chain Fatty Acid Transporters: Role in Colonic Homeostasis (2018) Originalabstract: SCFA-Aufnahme; MCT1=SLC16A1 und SMCT1=SLC5A8 unterschieden, H+- und Na+-gekoppelte Carrier. Compr Physiol 8:299–314, 2018. DOI 10.1002/cphy.c170014. Abgerufen am 07.11.2026.
- Paracellular permeability and tight junction regulation in gut health and disease (2023) Box 1; Pore and leak pathway functions in health: selektive parazelluläre Wege und Unterschied zur Barrierezerstörung. Abgerufen am 07.11.2026.