Auf einen Blick
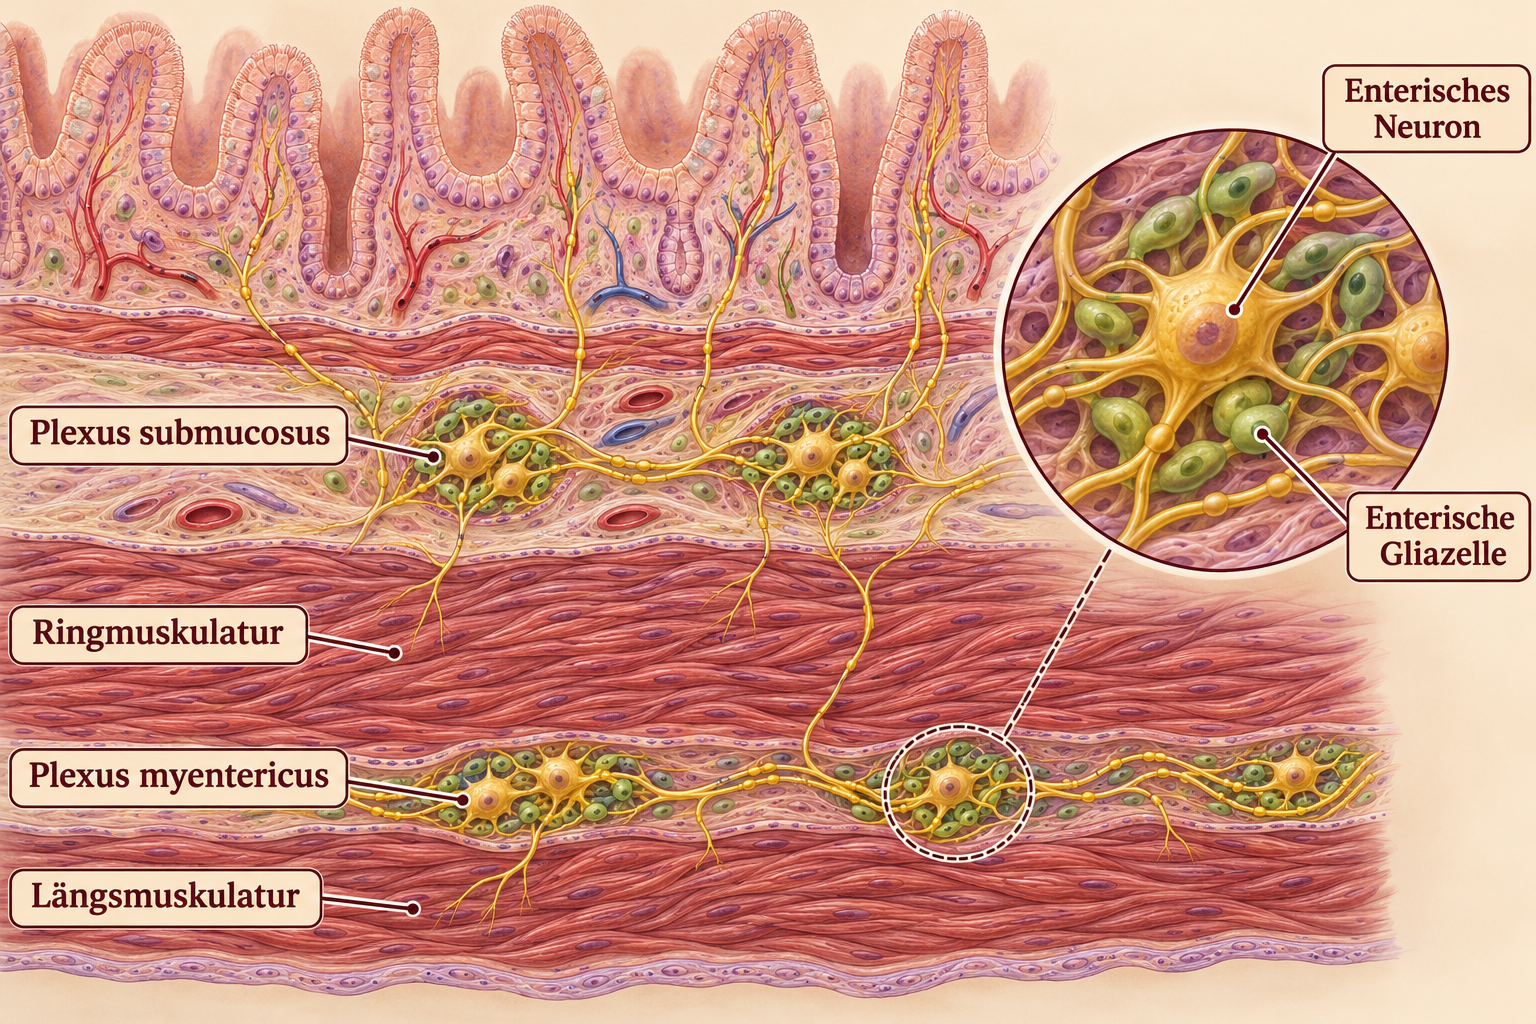
- Der myenterische Plexus liegt zwischen Ring- und Längsmuskulatur, der submuköse Plexus weiter innen.
- Örtliche Schaltungen verbinden sensible Eingänge mit Muskel-, Sekretions- und Gefäßantworten.
- Glatte Muskelzellen, Cajal-Zellen und PDGFRα-positive Zellen bilden den elektrisch gekoppelten SIP-Verbund.
Zwei große Geflechtsysteme in verschiedenen Wandschichten
Das enterische Nervensystem, kurz ENS, ist ein ausgedehntes Netzwerk in der Wand des Verdauungstrakts. Nervenzellkörper liegen in kleinen Ganglien, die durch Faserzüge miteinander verbunden sind. Neurone und enterische Glia bilden gemeinsame örtliche Einheiten. Ihre Fortsätze erreichen unterschiedliche Zielschichten und verbinden Nachbarabschnitte miteinander. [18] [50]
Der Plexus myentericus liegt zwischen innerer Ring- und äußerer Längsmuskulatur. Er wird auch Auerbach-Plexus genannt. Seine räumliche Lage passt zur Koordination größerer Wandbewegungen und zum Austausch mit den Muskel- und interstitiellen Zellen. Der Plexus submucosus, Meissner-Plexus, liegt weiter innen im Bindegewebe unter der Mukosa. [18]
Gesundheitskapitel
Im menschlichen Darm kann die submuköse Organisation mehrere Teilgeflechte umfassen. Ihre Nervenzellen tragen unter anderem zur Regulation von Sekretion und örtlicher Durchblutung bei. Die beiden großen Plexussysteme kommunizieren miteinander. Die Zuordnung myenterisch zur Motilität und submukös zur Schleimhaut beschreibt daher Schwerpunkte innerhalb eines verbundenen Systems. [18] [20]
Die Schleimhaut besitzt zusätzlich ein feines Fasernetz unter dem Epithel und innerhalb der Zotten beziehungsweise Kryptenumgebung. Nervensignale erreichen dort Zellen und Gefäße der Gewebeseite. Für Signale aus dem Darmlumen dienen spezialisierte Epithelzellen als Vermittler. Die anatomische Grenze zwischen luminalem Inhalt und subepithelialen Nerven bleibt dabei erhalten. [18]
Sensorische, verbindende und ausführende Funktionen
Für eine örtliche Reaktion werden mehrere Leistungen gebraucht: Ein veränderter Zustand muss erfasst, mit vorhandener Aktivität verrechnet und in eine passende Antwort übersetzt werden. Enterische Neurone können mechanische oder chemisch vermittelte Informationen aufnehmen, über Interneurone weitergeben und auf Muskel- oder Schleimhautzellen einwirken. Unterschiedliche Zellgruppen besitzen verschiedene Verbindungen und Botenstoffkombinationen. [18] [20]
Die traditionelle Einteilung unterscheidet intrinsisch sensorische Neurone, Interneurone sowie motorische, sekretomotorische und gefäßbezogene Ausgänge. Im tatsächlichen Netz können einzelne Nervenzellklassen mehrere Funktionen tragen. Zur funktionellen Beschreibung gehören Zellform, Botenstoffe, Zielkontakte und örtliche Verschaltung. [18] [50]
Untersuchungen einzelner Zellkerne aus menschlichem und murinem Darm zeigen eine große Vielfalt an neuronalen Genexpressionsmustern. Gemeinsamkeiten bestehen neben regionalen und artspezifischen Unterschieden. Solche Karten helfen, Zellgruppen und mögliche Gesprächspartner im Gewebe zu unterscheiden. Für das Grundlagenwissen folgt daraus vor allem, dass die Darmsteuerung aus vielen spezialisierten und miteinander verbundenen Populationen besteht. [50]
Wie eine Information aus dem Lumen das Nervennetz erreicht
Die Darmwand wird durch Füllung gedehnt und durch ihre eigene Bewegung verformt. Mechanisch empfindliche neuronale Strukturen können auf solche Veränderungen reagieren. Zusätzlich erfassen Epithelzellen Stoffe und mechanische Bedingungen am Lumen. Enteroendokrine und enterochromaffine Zellen geben daraufhin Botenstoffe an der Gewebeseite ab, wo Nervenausläufer und andere Zielzellen liegen. [17] [18]
Serotonin ist ein wichtiger Botenstoff enterochromaffiner Zellen und wirkt über verschiedene Rezeptoren auf enterische und extrinsische Nerven. Daneben arbeiten weitere mechanische und chemische Sensorwege. Örtliche Bewegungsmuster beziehen mehrere mechanische und chemische Eingänge ein; Serotonin ist Teil dieser verteilten Rückmeldung. [17] [18]
Aus der Gewebeperspektive können dabei Nährstoffzusammensetzung, Sekretionszustand, Dehnung und lokale Immunaktivität gleichzeitig relevant sein. Das Nervennetz erhält folglich ein veränderliches Muster aus verschiedenen Signalen. Seine Antwort richtet sich nach den verbundenen Schaltungen und dem aktuellen Zustand des Zielgewebes. [18] [20]
Ein anschaulicher örtlicher Transportreflex
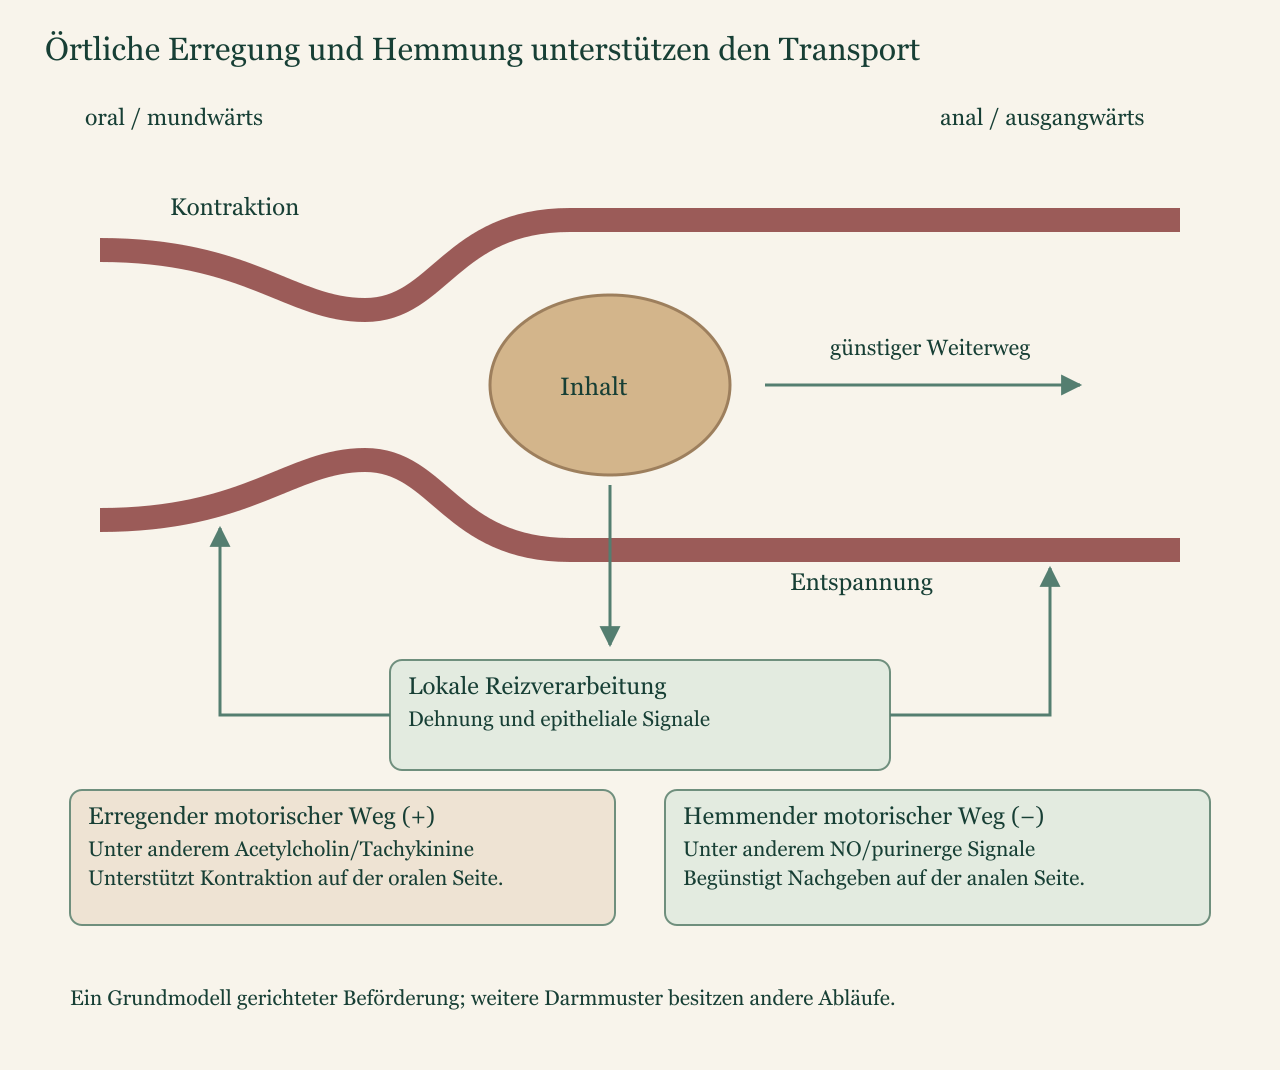
Ein klassisches Funktionsmodell beginnt mit einer örtlichen Dehnung. Auf der oral gelegenen Seite, also in Richtung Mund vor dem Weiterweg des Inhalts, kann erregende Aktivität eine Kontraktion unterstützen. Auf der anal gelegenen Seite in Richtung Darmausgang kann hemmende Aktivität den folgenden Abschnitt entspannen. So entsteht ein günstiger Druckunterschied für die Weitergabe des Inhalts. [17] [19]
An erregenden motorischen Wegen beteiligen sich unter anderem Acetylcholin und Tachykinine. Zu wichtigen hemmenden Übertragungswegen gehören Stickstoffmonoxid und purinerge Signalanteile; ihre Bedeutung variiert je nach Region und Zielzelle. Hemmung kann die glatte Muskulatur also aktiv für den kommenden Inhalt vorbereiten. Die zeitliche Abfolge von Nachgeben und Kontraktion gehört zum Transportmechanismus. [18] [19]
Gesundheitskapitel
Dieses Reflexmodell ist eine hilfreiche Lesefolge für gerichtete Beförderung. Der reale Darm zeigt außerdem Mischbewegungen, segmentale Aktivität und längere motorische Muster, bei denen mehrere Muskelanteile gleichzeitig reagieren. Auch die Kopplung zwischen Ring- und Längsmuskulatur ist vielfältiger als eine einzige schematische Kontraktionswelle. Aus dem örtlichen Grundprinzip entsteht dadurch eine ganze Gruppe regional angepasster Bewegungen. [18] [26] [31]
Nervensignale treffen auf einen elektrisch gekoppelten Zellverbund
Die Kraft der Darmbewegung liefern überwiegend glatte Muskelzellen. Ihre Erregbarkeit wird durch enterische Motorneurone und durch benachbarte interstitielle Zellen beeinflusst. Zu letzteren gehören die interstitiellen Cajal-Zellen und PDGFRα-positive Zellen. Zusammen mit der glatten Muskulatur bilden sie einen elektrisch gekoppelten Funktionsverbund, den SIP-Verbund. [66]
Bestimmte Cajal-Zellnetze erzeugen und verbreiten langsame elektrische Wellen. Diese stellen rhythmische Bedingungen bereit, unter denen die Muskulatur erregt werden kann. Ob und wie kräftig eine Kontraktion entsteht, hängt zusätzlich von nervalen und weiteren Einflüssen ab. PDGFRα-positive Zellen tragen unter anderem zur Übertragung hemmender Signale bei. Unterschiedliche Zelltypen formen so gemeinsam die Reaktion der Muskelwand. [66]
Elektrische Kopplung verbindet die einzelnen Zellen über leitende Zellkontakte zu einem funktionellen Netz. Dadurch können Änderungen der Leitfähigkeit in einer Gruppe die Erregbarkeit benachbarter Muskelzellen mitverändern. Im Ergebnis verbindet die Darmbewegung neuronale Schaltkreise, Schrittmacheraktivität, lokale Gewebesignale und die kontraktile Antwort. [31] [66]
Die Schleimhaut wird gleichzeitig mitgesteuert
Sekretomotorische Nervenzellen beeinflussen die Ionenabgabe des Epithels. Wenn beispielsweise mehr Chlorid in das Lumen abgegeben wird, verändern sich die osmotischen Bedingungen und damit die Wasserbewegung. Die Flüssigkeit unterstützt die Verarbeitung und Gleitfähigkeit des Inhalts. Auch die Schleimabgabe der Becherzellen wird nerval und durch weitere lokale Signale reguliert. [18] [44]
Gefäßbezogene Ausgänge verändern die örtliche Durchblutung und damit die Versorgung eines gerade aktiven Abschnitts. Muskel- und Schleimhautantworten müssen zusammenpassen: Inhalt soll weitergegeben werden, während Wasser, Sekret und Stoffaufnahme auf seine Beschaffenheit reagieren. Zwischen den Plexusgebieten verlaufen deshalb Verbindungen, die diese Teilaufgaben aufeinander beziehen. [18] [20]
Nerven und Immunzellen besitzen ebenfalls gegenseitige Signalwege. Neurotransmitter und bestimmte neuronale Botenstoffe können örtliche Abwehrfunktionen verändern; entzündliche Mediatoren verändern umgekehrt die Aktivität von Nerven und Epithel. Die Forschung beschreibt hierfür konkrete Zellkontakte und molekulare Wege. Diese Befunde erweitern das Bild eines Darmnervennetzes um seine Aufgaben an der Gewebegrenze. [18]
Enterische Glia arbeitet innerhalb und außerhalb der Ganglien
Enterische Gliazellen begleiten Zellkörper und Faserzüge und finden sich auch in weiteren Darmwandschichten. Sie stabilisieren die örtliche Umgebung und nehmen am Austausch von Botenstoffen teil. Ihre Formen und molekularen Eigenschaften unterscheiden sich je nach Lage. In den örtlichen Gangliennetzen begleiten Gliafortsätze die Zellkörper, Faserzüge und ihre Kontakte. [18] [19]
Experimentelle Untersuchungen zeigen, dass Glia die Aktivität bestimmter motorischer Schaltkreise beeinflussen kann. In einer entsprechenden Mausstudie wurden unterschiedliche gliale Beiträge zu verschiedenen Netzwegen untersucht. Solche Ergebnisse helfen, die Aufgaben von Glia innerhalb eines funktionierenden Gewebeverbunds genauer zu unterscheiden. Beim menschlichen Darm bleibt die Art der untersuchten Zellgruppe und Methode für die Übertragung einzelner Befunde wesentlich. [21]
Gliale, epitheliale und neuronale Signale gehören außerdem zu den untersuchten Mechanismen für Barrierefunktion und Reaktionen auf Entzündung. Diese Beziehungen arbeiten in beide Richtungen. Eine Veränderung im Gewebe kann mehrere Partner gleichzeitig aktivieren, während ihre Botenstoffe wiederum Durchlässigkeit, Sekretion oder Erregbarkeit beeinflussen. [18] [19] [20]
Verbindung zu Vagus, Sympathikus und sakralen Wegen
Parasympathische Bahnen des Vagus erreichen große Anteile des oberen Verdauungstrakts und beeinflussen die enterische Steuerung. Die regional organisierten Verbindungen beeinflussen Gruppen miteinander verschalteter Darmneurone. In distalen Darmabschnitten beteiligen sich parasympathische Wege aus sakralen Rückenmarkssegmenten. [18]
Sympathische postganglionäre Fasern kommen unter anderem aus prävertebralen Ganglien und wirken auf enterische Schaltungen, Gefäße und weitere Zielstrukturen. Ihre Einflüsse können etwa die Transmitterabgabe und die Motilitätslage verändern. Viele Wirkungen hängen von Region und Rezeptoren ab. Die autonome Versorgung stellt damit einen zusätzlichen Eingang für ein bereits örtlich verschaltetes Netz bereit. [18] [20]
Sensible vagale und spinale Fasern leiten Informationen aus dem Verdauungstrakt zum zentralen Nervensystem. Vagal zugeordnete sensible Zellkörper liegen unter anderem im Nodoseganglion, spinale in den Hinterwurzelganglien. Diese afferenten Leitungen tragen Informationen in Richtung Gehirn beziehungsweise Rückenmark; autonome Efferenzen vermitteln die Gegenrichtung zu peripheren Schaltungen und Organen. [18]
Örtliche Reflexe, längere autonome Regelkreise und bewusste Einflüsse können daher gleichzeitig wirksam sein. Ein gefüllter Darmabschnitt beeinflusst seine eigene Wand und kann über weitere Wege andere Verdauungsabschnitte mitverändern. Die Verdauung ist dadurch über räumlich kurze und längere Signalwege koordiniert. [18] [20]
Vom Wandplan zur Funktion
Für die räumliche Orientierung beginnt der Weg bei der Darmwand: Schleimhaut und submuköses Netz liegen innen, der myenterische Plexus zwischen den äußeren Muskelanteilen. Die Seite Dickdarm und Rektum zeigt regionale Bewegungs- und Verschlussaufgaben. Das autonome Nervensystem ordnet die angeschlossenen überregionalen Bahnen ein. [18]
Diese anatomische Grundlage macht verständlich, warum Verdauungsfunktion mehrere Ebenen zugleich benötigt: einen verarbeitbaren Inhalt, eine geeignete Schleimhaut, versorgtes Muskelgewebe und abgestimmte Signale. Das ENS verbindet die örtlichen Gewebebedingungen mit einer laufend anpassbaren Antwort auf den jeweiligen Inhalt. [18] [20] [66]
Zellgruppen und Ebenen der örtlichen Steuerung
| Struktur oder Weg | Wesentlicher Beitrag |
|---|---|
| Enterische Neurone | Reizverarbeitung, Verbindung und motorische, sekretorische oder gefäßbezogene Ausgänge. [18] [50] |
| Enterische Glia | Örtliche Begleitung und Beteiligung an neuronalen und geweblichen Signalwegen. [18] [19] |
| Glatte Muskelzellen | Erzeugen die Wandkraft für Bewegung und Tonus. [66] |
| Cajal-Zellen | Beteiligen sich unter anderem an langsamen elektrischen Wellen und Signalübertragung zur Muskulatur. [66] |
| PDGFRα-positive Zellen | Teil des elektrisch gekoppelten SIP-Verbunds mit eigenen Signal- und Leitfähigkeitseigenschaften. [66] |
| Extrinsische autonome Bahnen | Zusätzliche Eingänge für örtliche Schaltungen und weitere Organzielstrukturen. [18] |
| Vagale und spinale Afferenzen | Rückmeldung aus dem Verdauungstrakt in Richtung ZNS. [18] |
Wichtige Begriffe
- Plexus
- Geflecht miteinander verbundener Nervenstrukturen. [18]
- Enterisch
- Zum Darm gehörig; hier auf die eigenen Nervennetze bezogen. [18]
- Afferent
- In Richtung eines betrachteten zentralen Verarbeitungsortes leitend. [18]
- Efferenz
- Ausgang zu nachgeschalteten Schaltungen beziehungsweise Zielgewebe. [18]
- SIP-Verbund
- Elektrisch gekoppelter Funktionsverbund aus glatten Muskelzellen, interstitiellen Cajal-Zellen und PDGFRα-positiven Zellen. [66]
Häufige Fragen
Wie kann Hemmung die Weiterbeförderung unterstützen?
Hemmende motorische Wege bereiten den ausgangwärts gelegenen Abschnitt durch Nachgeben auf ankommenden Inhalt vor. Gleichzeitig kann oral gerichtete erregende Aktivität Kontraktion unterstützen. Der resultierende Druckunterschied begünstigt die Passage. [17][18][19]
Wie verbindet sich das lokale Darmnetz mit dem übrigen Nervensystem?
Vagale und sakrale parasympathische sowie sympathische Bahnen beeinflussen die örtlichen Schaltungen. Sensible vagale und spinale Leitungen melden Gewebezustände an Gehirn und Rückenmark zurück. So greifen lokale Reflexe und längere Regelwege ineinander. [18][20]
Quellen und Weiterlesen
- Enteric nervous system: sensory transduction, neural circuits and gastrointestinal motility (2020) Indexierte Originalabschnitte zu mechanosensorischen Wegen, Peristaltik und Grenzen obligatorischer epithelialer Serotonin-Auslösung. Abgerufen am 07.11.2026.
- Sharkey KA, Mawe GM (2023): The enteric nervous system Physiol Rev 103(2):1487–1564. DOI 10.1152/physrev.00018.2022. Abstract, General Structure, ICC/SIP-System sowie extrinsische Afferenzen und autonome Einflüsse. Abgerufen am 07.11.2026.
- Enteric glia: the most alimentary of all glia (2016/2017) Abschnitte Plexusorganisation und klassischer peristaltischer Reflex mit oralem erregendem und aboralem hemmendem Zweig. Abgerufen am 07.11.2026.
- Functional circuits and signal processing in the enteric nervous system (2020) Abschnitte lokale/zentrale Integration, Neuron-Glia-Signalwege und Nachbarschaft zu Muskularismakrophagen. Abgerufen am 07.11.2026.
- Circuit-specific enteric glia regulate intestinal motor neurocircuits (2021) Originalabstract zu zell-/netzwerkspezifischen Interaktionen enterischer Neurone und Glia. Abgerufen am 07.11.2026.
- First translational consensus on terminology and definitions of colonic motility in animals and humans studied by manometric and other techniques (2019) Abschnitt CMPs in adults by manometry, Tabellen 3 und 5, High-amplitude propagating contractions. Abgerufen am 07.11.2026.
- Enteric motor pattern generators involve both myogenic and neurogenic mechanisms in the human colon (2015) Abschnitte humane Muster und Unterschiede myogener/neurogener Musterbildung. Abgerufen am 07.11.2026.
- Regulation of Electroneutral NaCl Absorption by the Small Intestine (2011) Abstract; Introduction; Regulation of ion transporters in epithelial cells: NHE3, Chlorid-Bikarbonat-Austauscher, CFTR und basolaterale Na/K-ATPase. Annu Rev Physiol 73:261–281. DOI 10.1146/annurev-physiol-012110-142244. Abgerufen am 07.11.2026.
- Drokhlyansky E et al. (2020): The human and mouse enteric nervous system at single cell resolution Originalabstract: menschliche und murine ENS-Zellprofile, regionale Unterschiede und konservierte/speziesspezifische Programme. Cell 182:1606–1622.e23. DOI 10.1016/j.cell.2020.08.003. Abgerufen am 07.11.2026.
- Ca2+ dynamics in interstitial cells: foundational mechanisms for the motor patterns in the gastrointestinal tract (2024) Originalabstract und Einleitung: glatte Muskelzellen, Cajal-Zellen und PDGFRα-positive Zellen als elektrisch gekoppelter SIP-Verbund. Physiol Rev 104:329–398. DOI 10.1152/physrev.00036.2022. Abgerufen am 07.11.2026.