Auf einen Blick
- Das Membranpotenzial ist die Spannung des Zellinneren gegenüber außen.
- Selektive Leitfähigkeiten und Ionengradienten bestimmen den elektrischen Zustand.
- Eine regenerative Kanalreaktion erzeugt das fortgeleitete Aktionspotenzial.
Eine Spannung zwischen innen und außen
Das Membranpotenzial beschreibt die elektrische Potenzialdifferenz über der Zellmembran. Üblicherweise wird das Innere gegenüber dem Extrazellulärraum angegeben. Ein Wert von beispielsweise −65 Millivolt bedeutet, dass das Zellinnere gegenüber der gewählten Außenreferenz negativer ist. Millivolt sind Tausendstel Volt. Die Zahl beschreibt eine Differenz zwischen zwei Orten. [3] [8]
Eine Messelektrode im Zellinneren und eine Referenz außen machen diese Differenz zugänglich. Liegen beide Elektroden im gleichen äußeren Medium, fehlt die transmembrane Differenz in der Messanordnung. Beim Einführen der inneren Elektrode ändert sich der Messwert. Solche intrazellulären Ableitungen machten die elektrischen Zustände einzelner Nervenzellen experimentell untersuchbar. [8]
Die Trennung elektrischer Ladung betrifft vor allem die unmittelbaren Oberflächen an der Membran. Die größeren Flüssigkeitsräume bleiben insgesamt annähernd elektrisch neutral. Für eine Spannungsänderung reicht deshalb die Bewegung eines kleinen Anteils der vorhandenen Ionen. Die Ionenverteilung im gesamten Zellvolumen und die lokale elektrische Ladungstrennung sind miteinander verknüpft. [3] [28]
Konzentration und elektrische Kraft wirken gemeinsam
In einer typischen Nervenzelle ist Kalium innen höher konzentriert, Natrium außen. Geladene Teilchen können die hydrophobe Membranmitte nur über geeignete Proteine in größerem Umfang überwinden. Welche Ionen passieren können, hängt von der Ausstattung mit Kanälen und Transportern ab. Die Membran verbindet dadurch ungleiche Verteilung mit selektiver Durchlässigkeit. [3] [8] [28]
Ein Konzentrationsgefälle begünstigt die Diffusion eines Ions zur Seite mit geringerer Konzentration. Zusätzlich wirkt das elektrische Feld: Positive und negative Ladungen reagieren darauf in entgegengesetzter Richtung. Bei Kalium kann das Konzentrationsgefälle nach außen zeigen, während das negative Zellinnere eine nach innen gerichtete elektrische Kraft erzeugt. Beide Beiträge ergeben zusammen den elektrochemischen Antrieb. [8]
Das Gleichgewichtspotenzial eines Ions ist die Spannung, bei der sich seine chemische und elektrische Triebkraft ausgleichen. Die Nernst-Beziehung beschreibt dieses Potenzial aus Konzentrationsverhältnis, Ladung und Temperatur. Öffnet eine Membran bevorzugt Kanäle für dieses Ion, verschiebt sich ihre Spannung in Richtung seines Gleichgewichtspotenzials. Die aktuelle Leitfähigkeit bestimmt, wie stark dieser Beitrag wirkt. [8] [9]
Der Ausdruck Leitfähigkeit bezeichnet, wie gut eine geöffnete Route elektrischen Strom trägt. Ein Kanal kann eine bestimmte Ionenart bevorzugen, während sein Öffnungszustand durch Spannung oder Liganden verändert wird. Diese beiden Eigenschaften sind getrennt betrachtbar: die Selektivität für Teilchen und die Regelung der Öffnung. Ein Spannungsreiz und ein Transmitter können deshalb unterschiedliche Proteine aktivieren, obwohl beide die elektrische Membranantwort verändern. [3] [4] [9]
Das Ruhepotenzial ist ein dynamisch erhaltener Zustand
In Ruhe besitzt die neuronale Membran häufig eine vergleichsweise hohe Kaliumleitfähigkeit. Dadurch liegt ihr Potenzial näher am Kaliumgleichgewicht als am Natriumgleichgewicht. Weitere durchlässige Ionen und elektrogene Transportprozesse tragen zum tatsächlichen Wert bei. Das Ruhepotenzial unterscheidet sich zwischen Zelltypen und Zuständen; häufig verwendete Lehrwerte veranschaulichen eine bestimmte gewählte Ausgangslage. [8] [28]
Die Natrium-Kalium-ATPase hält die Konzentrationsgefälle unter ATP-Verbrauch aufrecht. Gleichzeitig ermöglichen offene Kanäle fortlaufende Ionenbewegungen. Erregbarkeit setzt damit einen erhaltenen Stoffwechsel voraus. Der ruhende elektrische Zustand entsteht aus dem Gleichgewicht laufender Flüsse und ihrer Regulation. Pumpe und Kanäle übernehmen dabei unterschiedliche Aufgaben im selben Membransystem. [3] [8]
Eine Änderung der Leitfähigkeit kann das Membranpotenzial auch bei zunächst weitgehend unveränderten Gesamtkonzentrationen verschieben. Werden etwa unter üblichen neuronalen Ausgangsbedingungen zusätzliche Natriumkanäle geöffnet, begünstigen Konzentrations- und elektrische Kraft gemeinsam einen Einstrom. Dieser macht das Innere weniger negativ. Die Richtung wird jeweils aus den aktuellen elektrochemischen Bedingungen und der geöffneten Ionenroute abgeleitet. [3] [8] [9]
Abgestufte Potenziale verrechnen die Eingänge
Depolarisation bezeichnet eine Verschiebung zu weniger negativen oder positiveren Werten. Hyperpolarisation bedeutet eine Verschiebung zu negativeren Werten. Kleine lokale Signale können in Amplitude und Dauer variieren. Sie entstehen beispielsweise durch synaptische Rezeptoraktivierung oder in sensorischen Strukturen. Über die Zellflüssigkeit und Membran breiten sie sich elektrisch aus. [4] [8]
Diese passive Ausbreitung wird mit zunehmender Strecke abgeschwächt. Ein Teil des Stroms fließt über die Membran ab; ein anderer verändert die Spannung benachbarter Abschnitte. Der Membranwiderstand, die Kapazität und der innere Längswiderstand bestimmen den Verlauf mit. Die Längskonstante beschreibt dabei eine charakteristische Ausbreitungsstrecke, die Zeitkonstante eine charakteristische Zeitspanne der Spannungsanpassung. [10]
Mehrere Eingänge können sich überlagern. Kommen sie rasch genug nacheinander, bleibt von einem Signal noch eine Wirkung erhalten, wenn das nächste eintrifft. Räumlich getrennte Kontakte können ebenfalls gemeinsam wirken. Ihre Summation hängt von Ort, zeitlichem Abstand und Membraneigenschaften ab. Die passive Verrechnung ergänzt sich im echten Neuron mit der Ausstattung seiner spezialisierten Membrandomänen. [4] [10] [12] [21]
Eine regenerative Reaktion erzeugt den Impuls
Am auslösenden Axonabschnitt kann eine ausreichende Depolarisation viele spannungsabhängige Natriumkanäle aktivieren. Mehr Natriumeinstrom depolarisiert die Membran weiter und öffnet zusätzliche Kanäle. Diese positive Rückkopplung macht aus einer örtlichen Änderung einen raschen regenerativen Vorgang. Die Schwelle beschreibt die Bedingung, ab der sich diese Verstärkung gegenüber den entgegenwirkenden Strömen durchsetzt. [9] [21]
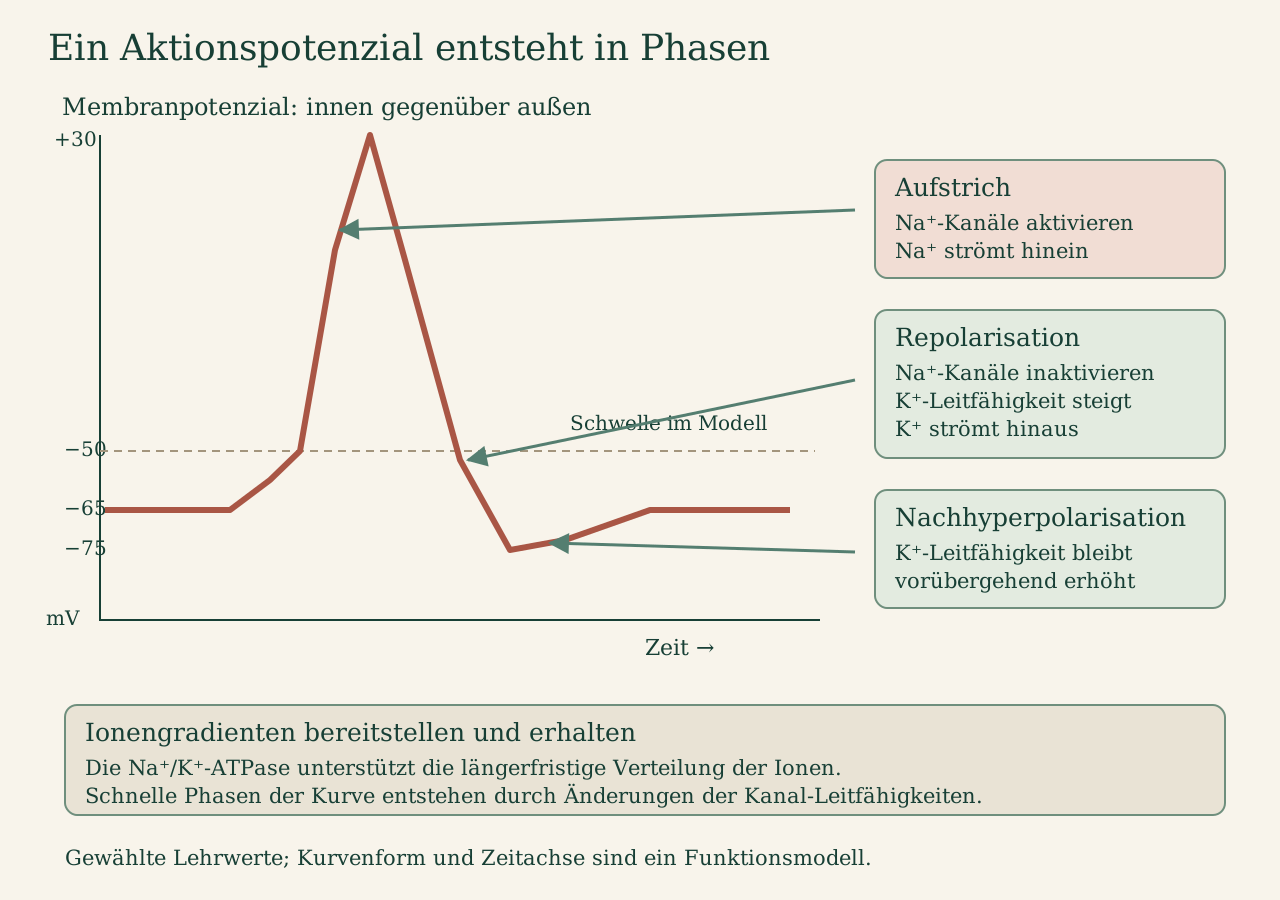
Die Schwelle ist vom Kanalbestand und seiner Vorgeschichte abhängig. Ein typisches Lehrdiagramm verwendet beispielsweise −65 Millivolt als Ruhewert und −50 Millivolt als gewählte Schwellenmarke. Die eigentliche Erklärung liegt im Verhältnis der Ströme. Solange die antreibende Rückkopplung nicht zustande kommt, bleibt die Spannungsänderung abgestuft. Bei erfolgreicher Auslösung folgt der schnelle Aktionspotenzialverlauf. [8] [9]
Unter vergleichbaren Bedingungen zeigt ein einzelner Impuls eine weitgehend reproduzierbare Form. Ein stärkerer anhaltender Eingang kann vor allem die Häufigkeit und zeitliche Organisation der Impulse verändern. Diese Alles-oder-nichts-Eigenschaft gehört zur regenerativen Auslösung. Zelltyp, Kanalzustand und Vorgeschichte beeinflussen zugleich die konkrete Form des Aktionspotenzials. [8] [9]
Die Phasen folgen den Zuständen der Kanäle
Gesundheitskapitel
In der Aufstrichphase nimmt die Natriumleitfähigkeit rasch zu. Natrium strömt in das Axoninnere, und das Membranpotenzial wird stark positiver. Kurzzeitig kann das Innere gegenüber außen positiv sein; dieser Abschnitt heißt Overshoot. Der erreichte Wert bleibt von den gleichzeitig wirksamen Leitfähigkeiten und den Gleichgewichtspotenzialen begrenzt. [8] [9]
Spannungsabhängige Natriumkanäle inaktivieren nach ihrer Öffnung. Gleichzeitig steigt bei der typischen schnellen neuronalen Impulsform die Kaliumleitfähigkeit verzögert an. Kalium verlässt unter diesen Bedingungen die Zelle und trägt positive Ladung nach außen. Beide Vorgänge verschieben das Potenzial wieder in die negative Richtung. Diese Rückkehr wird Repolarisation genannt. [9]
Manche Kaliumkanäle schließen langsam genug, dass nach der Repolarisation zunächst eine erhöhte Kaliumleitfähigkeit bestehen bleibt. Dadurch kann ein negativeres Nachpotenzial entstehen. Mit der weiteren Kanalrückstellung nähert sich das Potenzial seinem Ausgangszustand. Die schnelle Rückkehr der Spannung beruht überwiegend auf Kanalströmen; die Pumpen sichern langfristig die dafür erforderlichen Ionengradienten. [3] [9]
Die Erholung der Kanäle begrenzt die zeitliche Folge
Während der absoluten Refraktärphase können bereits inaktivierte Natriumkanäle noch nicht erneut in gleicher Weise öffnen. Ein unmittelbar folgender Impuls lässt sich daher nicht auslösen. Mit der Repolarisation kehren die Kanäle zunehmend in aktivierbare Zustände zurück. Diese zeitabhängige Erholung gehört zum Ablauf des einzelnen Impulses. [3] [9]
In der relativen Refraktärphase ist eine erneute Auslösung wieder möglich, benötigt jedoch günstigere anregende Bedingungen. Eine noch erhöhte Kaliumleitfähigkeit und der noch nicht vollständig erholte Kanalbestand tragen dazu bei. Damit beeinflusst die Vorgeschichte die nächste Antwort. Zwischen Impulsen liegt ein biologisch begrenzter Abstand, der vom Zelltyp und seinem Zustand abhängt. [3] [9]
Eine hilfreiche Folge von Kanalzuständen lautet aktivierbar geschlossen, geöffnet und inaktiviert. Geschlossen und inaktiviert führen beide zu geringerem Natriumstrom, unterscheiden sich aber in der erneuten Aktivierbarkeit. Die Rückkehr aus der Inaktivierung benötigt passende Spannungsbedingungen und Zeit. Diese Zustandsfolge erklärt, weshalb derselbe depolarisierende Eingang kurz nach einem Impuls eine andere Wirkung haben kann als nach vollständiger Erholung. [3] [9]
Lokale Ströme erreichen den folgenden Axonabschnitt
Gesundheitskapitel
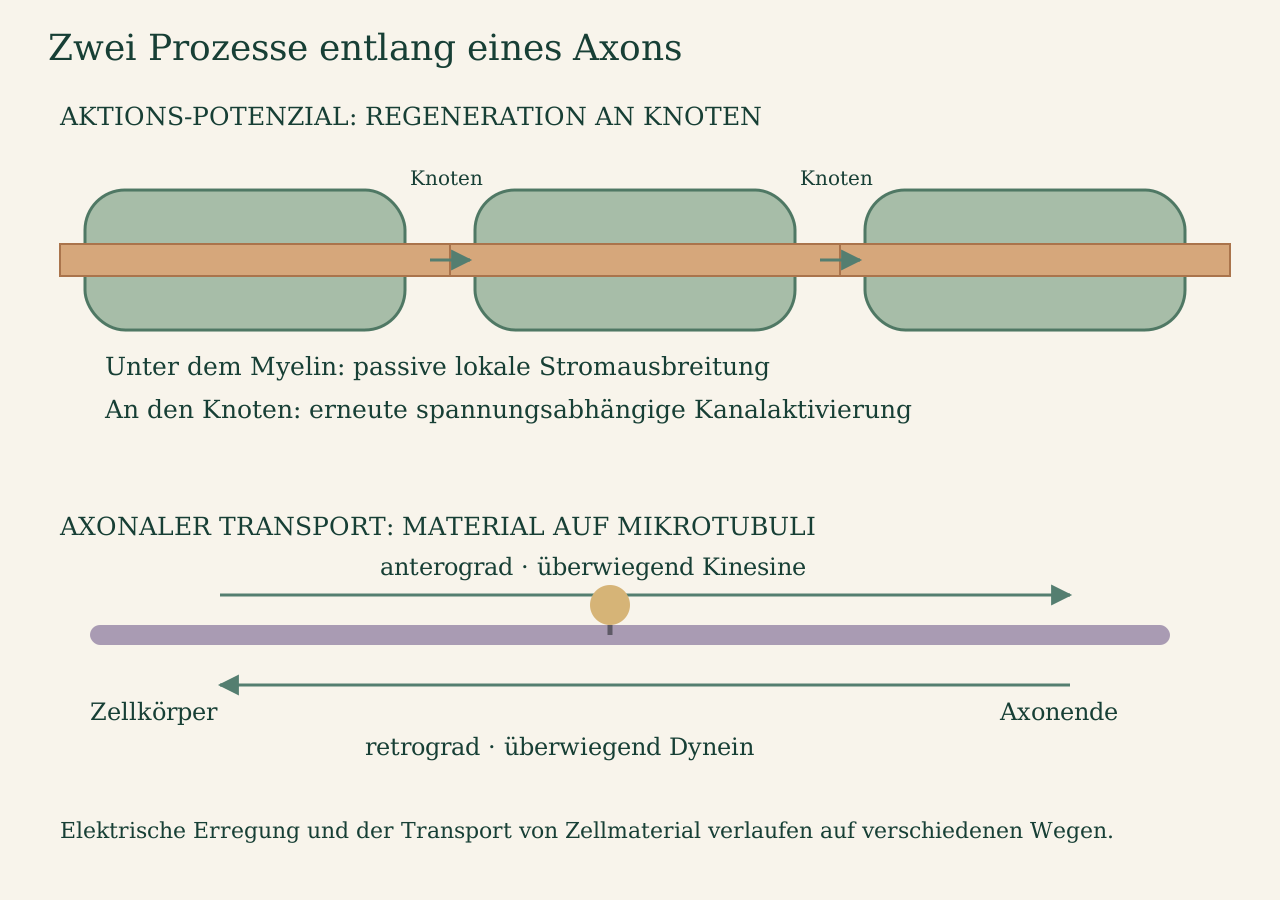
Ein aktiver Membranabschnitt erzeugt einen lokalen Strom, der benachbarte Membran depolarisiert. Wird dort die regenerative Bedingung erreicht, öffnen erneut spannungsabhängige Kanäle. So wird das Aktionspotenzial entlang der Faser wiederholt aufgebaut. Die Signalstrecke entsteht aus elektrischer Ausbreitung zwischen den Orten und lokaler aktiver Verstärkung. [8] [10]
Hinter der fortschreitenden Erregungsfront befinden sich Membranbereiche in der Refraktärphase. Das begünstigt beim gewöhnlich am Axonanfang ausgelösten Impuls die Weiterleitung zu den Endigungen. Wird ein Axon experimentell in seiner Mitte gereizt, können beide benachbarten Richtungen erregbar sein. Richtung der physiologischen Informationsverarbeitung und allgemeine elektrische Ausbreitungsfähigkeit lassen sich so getrennt verstehen. [9] [10]
Ein größerer Axondurchmesser vermindert den inneren Widerstand pro Strecke und unterstützt eine schnellere elektrische Ausbreitung. Myelin erhöht den Widerstand über der internodalen Membran und vermindert die wirksame Kapazität. An Ranvier-Schnürringen konzentriert sich die aktive Regeneration. Diese saltatorische Organisation ermöglicht schnelle Leitung bei einer gegliederten Verteilung der Ionenkanäle. [2] [10] [21]
Ein Spannungsdiagramm richtig lesen
Ein Aktionspotenzialdiagramm zeigt gewöhnlich Zeit auf der waagerechten und Membranpotenzial auf der senkrechten Achse. Die Kurve beschreibt den Verlauf an einem Messort. Eine Längszeichnung des Axons zeigt dagegen mehrere Orte entlang derselben Faser. Beide Darstellungen beantworten unterschiedliche Fragen: den zeitlichen Ablauf an einer Stelle und die räumliche Fortleitung über eine Strecke. [8] [10]
Auch elektrische Spannung und Ionentransport haben unterschiedliche Einheiten. Millivolt bezeichnen eine Potenzialdifferenz. Ein Ionenstrom beschreibt bewegte Ladung pro Zeit. Welche Spannung aus einem Strom entsteht, hängt unter anderem von Widerstand und Kapazität der Membran ab. Diese Unterscheidung erklärt, weshalb dieselbe Aktivierung an unterschiedlichen Zellabschnitten unterschiedlich starke Potenzialänderungen hervorrufen kann. [8] [10] [12]
Synaptische Rezeptoren liefern viele der lokalen Eingänge. Gliazellen unterstützen die Ionenbedingungen und bilden Myelin. Der periphere Nerv bündelt die leitenden Fasern. Der elektrische Vorgang bleibt damit in Zellstruktur, Kontaktstellen und Gewebeversorgung eingebunden. [2] [4] [23] [25]
Ein Rechenbeispiel macht die Vorzeichen greifbar: Verändert sich ein Membranpotenzial von −65 auf −50 Millivolt, beträgt die Änderung +15 Millivolt. Die Membran ist depolarisiert. Eine Änderung von −65 auf −75 Millivolt beträgt −10 Millivolt und entspricht einer Hyperpolarisation. Die benutzten Ausgangswerte sind gewählt; die Rechenrichtung folgt der Konvention Zellinneres gegenüber außen. [3] [8]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- OpenStax: Anatomy and Physiology 2e, 12.2 Nervous Tissue Betts et al., 2022. Parts/Types of a Neuron, Glial Cells und Myelin. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 12.4 The Action Potential Betts et al., 2022. Electrically Active Cell Membranes, The Membrane Potential, The Action Potential. Abgerufen am 07.11.2026.
- OpenStax: Anatomy and Physiology 2e, 12.5 Communication Between Neurons Betts et al., 2022. Graded Potentials, Summation, Synapses und Neurotransmitter Release. Abgerufen am 07.11.2026.
- Byrne JH: Resting Potentials and Action Potentials, Neuroscience Online 1.1 McGovern Medical School, UTHealth Houston. Abschnitte 1.1–1.6; Revision 17.08.2026. Abgerufen am 07.11.2026.
- Byrne JH: Ionic Mechanisms of Action Potentials, Neuroscience Online 1.2 McGovern Medical School, UTHealth Houston. Abschnitte 2.1–2.4; Revision 17.08.2026. Abgerufen am 07.11.2026.
- Byrne JH: Propagation of the Action Potential, Neuroscience Online 1.3 McGovern Medical School, UTHealth Houston. Abschnitte 3.1 und 3.2; Revision 17.08.2026. Abgerufen am 07.11.2026.
- Byrne JH: Synaptic Transmission in the Central Nervous System, Neuroscience Online 1.6 McGovern Medical School, UTHealth Houston. Abschnitte 6.1–6.6; Revision 06.07.2026. Abgerufen am 07.11.2026.
- Leterrier C: The Axon Initial Segment: An Updated Viewpoint Journal of Neuroscience 38(9), 2135–2145 (2018). DOI 10.1523/JNEUROSCI.1922-17.2018. Abstract, Introduction und Ion channels at the AIS. Abgerufen am 07.11.2026.
- Verkhratsky A, Nedergaard M: Physiology of Astroglia Physiological Reviews 98(1), 239–389 (2018). DOI 10.1152/physrev.00042.2016. Definition and Overview of Function sowie indexierte Abschnitte zu Ionen-/Transmittermilieu. Abgerufen am 07.11.2026.
- Liu Q, Wang X, Yi S: Pathophysiological Changes of Physical Barriers of Peripheral Nerves After Injury Frontiers in Neuroscience 12, 597 (2018). DOI 10.3389/fnins.2018.00597. Anatomical Structures of Peripheral Nerves und Physical Barriers. Abgerufen am 07.11.2026.
- Purves D et al. (Hrsg.): Neuroscience, 2. Auflage, Electrical Signals of Nerve Cells Sinauer Associates, 2001. Kapitel 2: Overview. Abgerufen am 07.11.2026.