Auf einen Blick
- Ein Sarkomer reicht von einer Z-Scheibe zur nächsten.
- Beim Verkürzen nimmt die Filamentüberlappung zu, während die Filamentlängen gleich bleiben.
- ATP ermöglicht Querbrückenlösung, erneute Arbeitsschritte und Calciumrücktransport.
Der Weg vom elektrischen Signal zur mechanischen Arbeit
Wenn eine Skelettmuskelfaser aktiviert wird, verbindet sie mehrere Vorgänge: Ein elektrisches Signal breitet sich an ihrer Membran aus, Calcium wird im Zellinneren freigesetzt und Proteinfilamente entwickeln gegeneinander Kraft. ATP ermöglicht die wiederholten Arbeitsschritte und den anschließenden Calciumrücktransport. Der Zusammenhang lässt sich vom Kontakt mit dem Nerv bis zum einzelnen Sarkomer verfolgen. [3][7][32]
Eine Kontraktion bezeichnet die aktive Kraftentwicklung des Muskels. Dabei kann sich der Muskel verkürzen, seine äußere Länge halten oder unter Zug länger werden. Beim Anheben, Halten und kontrollierten Absenken einer Tasche sind jeweils andere mechanische Bedingungen erfüllt. Die molekulare Aktivierung bleibt in allen drei Fällen mit dem Zusammenspiel von Calcium, Aktin und Myosin verbunden. [9][11][30]
Das Sarkomer ist zwischen zwei Z-Scheiben aufgespannt
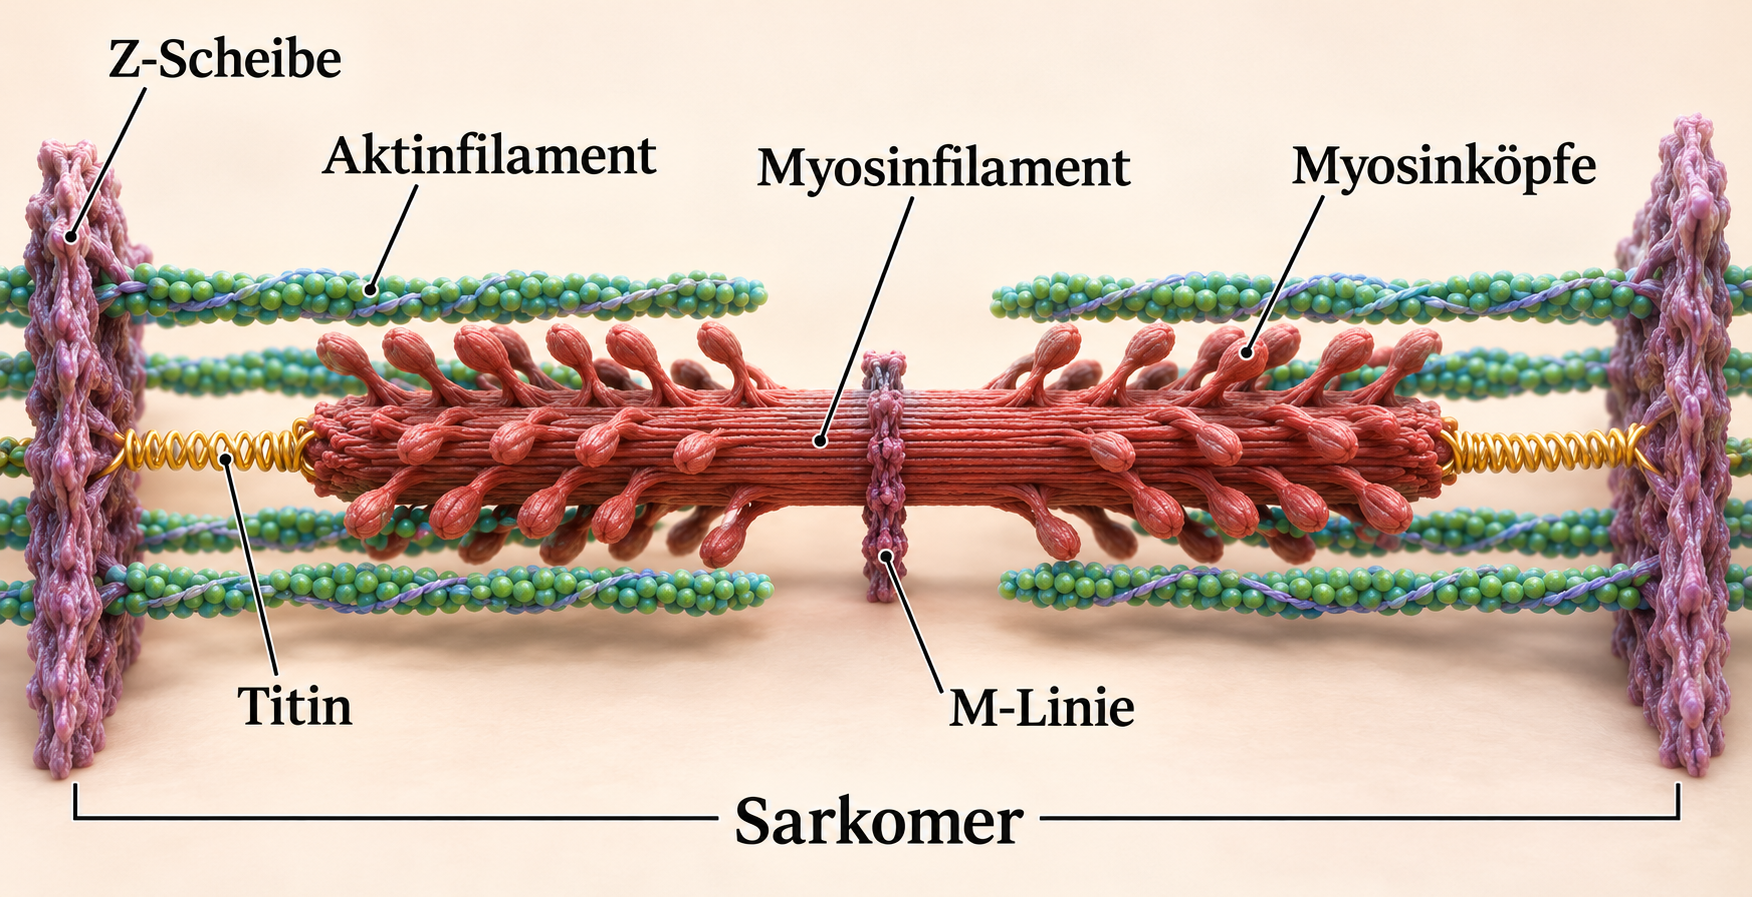
Die kontraktilen Strukturen einer Muskelfaser liegen in Myofibrillen. Jede Myofibrille besteht aus vielen hintereinandergeschalteten Sarkomeren. Ein Sarkomer reicht von einer Z-Scheibe zur nächsten. Dünne Filamente mit Aktin sind an den Z-Scheiben verankert und ragen zur Mitte. Dicke Myosinfilamente liegen zentral; ihre räumliche Ordnung wird unter anderem im Bereich der M-Linie organisiert. [3][14][15]
Titin verbindet den Bereich der Z-Scheibe mit dem dicken Filamentsystem. Das große Protein trägt zur Zentrierung und zur elastischen Spannung des Sarkomers bei. Zur Kraft des gesamten Muskels kommen außerdem Eigenschaften der Zellhüllen, der umgebenden Matrix und der Sehne hinzu. Auf dieser Grundlage lässt sich aktive Querbrückenkraft von passiven Spannungsanteilen unterscheiden. [15][30][33]
Gesundheitskapitel
A-Bande, I-Bande und H-Zone machen die Anordnung sichtbar
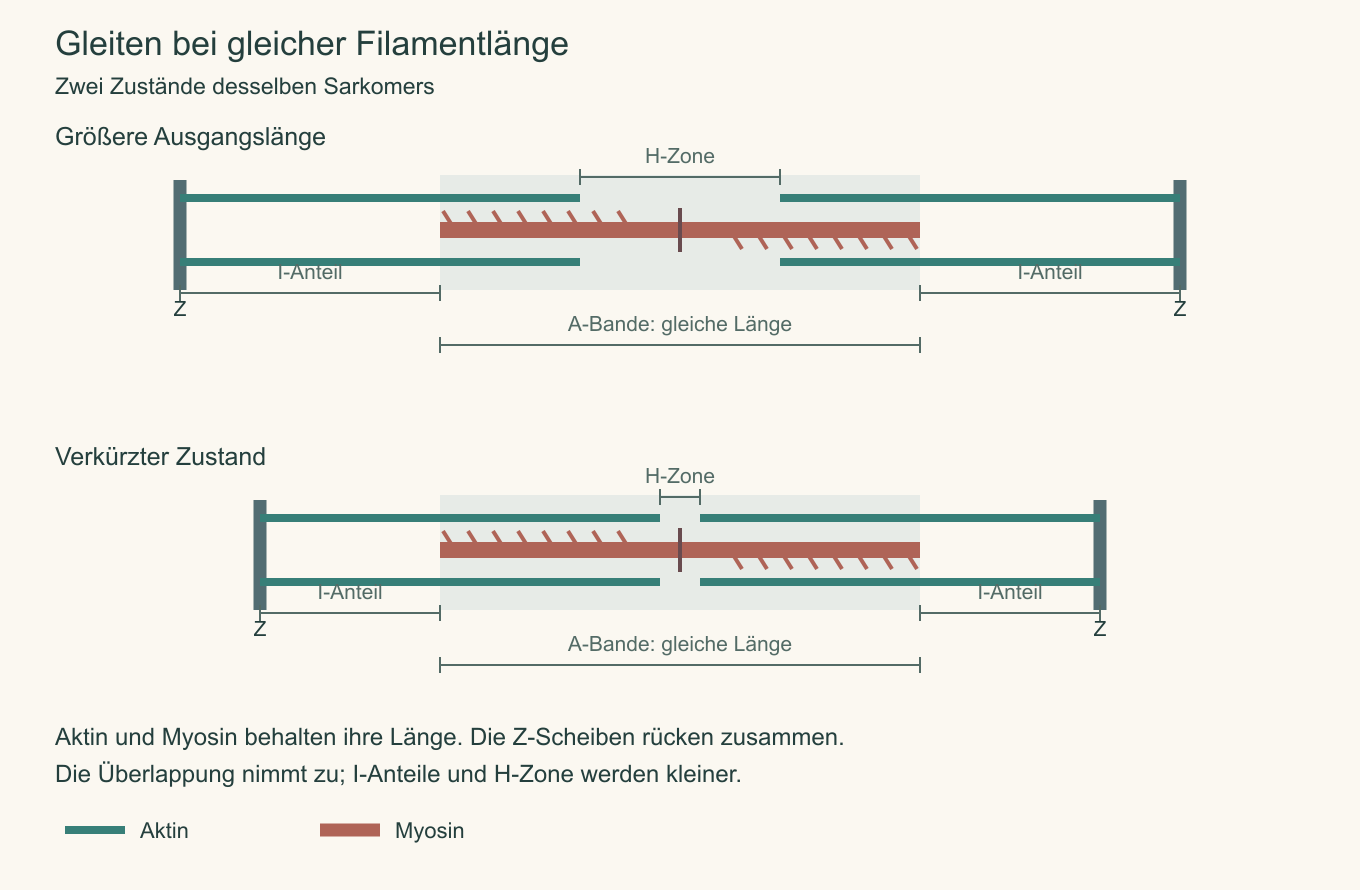
Die A-Bande umfasst die Länge der dicken Filamente, einschließlich der Bereiche, in denen sie mit dünnen Filamenten überlappen. In den I-Bereichen liegen dünne Filamente ohne überlagerte dicke Filamente. Die Z-Scheibe verläuft innerhalb des I-Bereichs. Zentral kann innerhalb der A-Bande eine H-Zone liegen, in der dicke Filamente noch ohne überlappende dünne Filamente erscheinen. [14][15]
Beim Verkürzen eines Sarkomers gleiten die dünnen Filamente weiter zwischen die dicken. Die beiden Z-Scheiben kommen einander näher; die Überlappung nimmt zu. I-Bereiche und H-Zone werden kleiner. Die Länge der A-Bande bleibt dabei erhalten, weil die dicken Filamente ihre Länge behalten. Diese räumliche Veränderung ist der Kern des Gleitfilamentprinzips. [3][14][15]
Gesundheitskapitel
Ein Nervenimpuls startet die Erregung der Muskelfaser
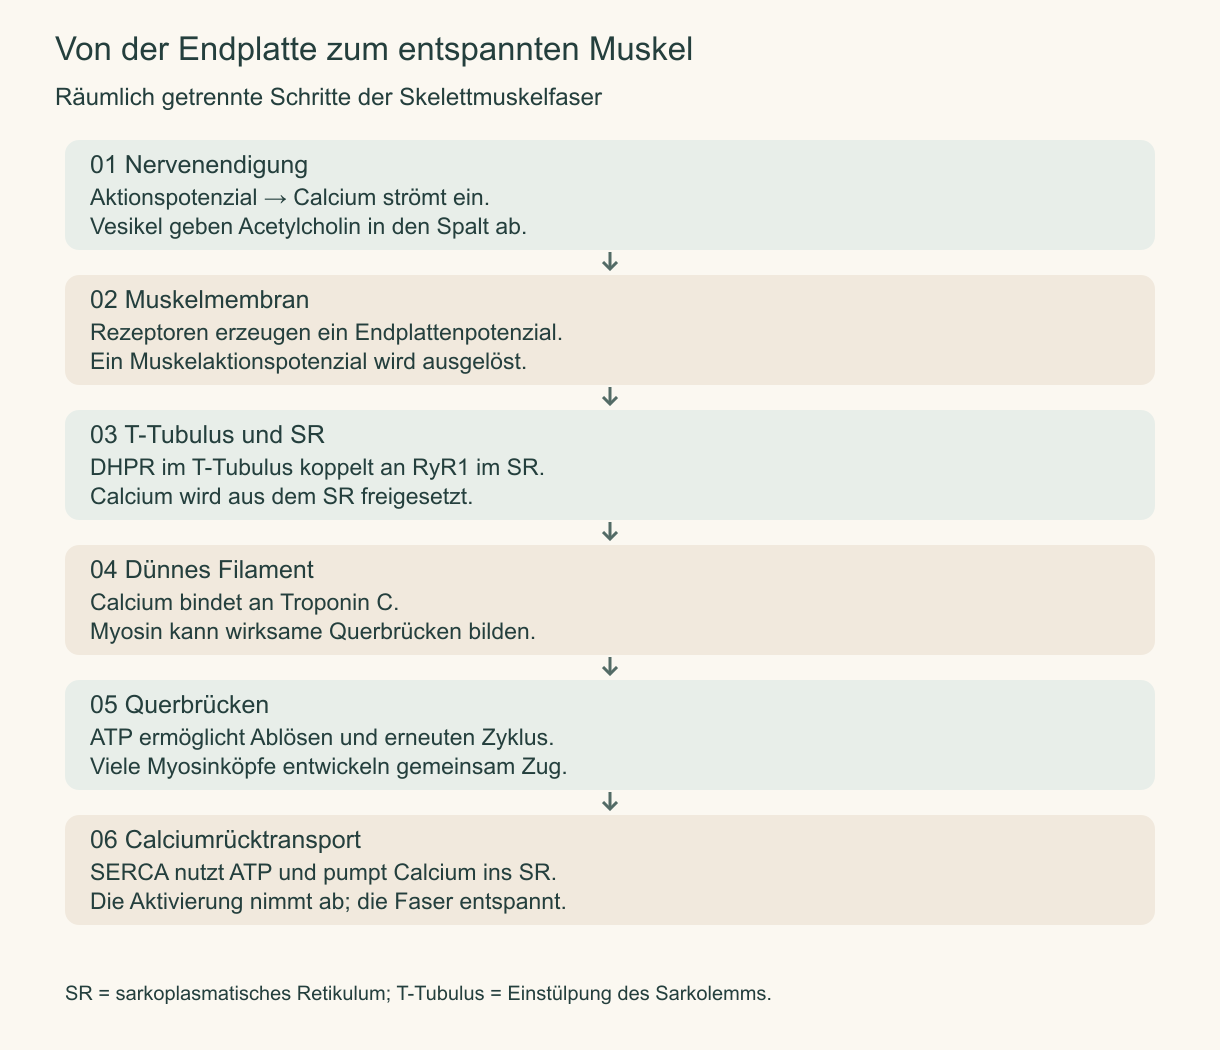
Ein motorisches Axon überträgt sein Signal an der neuromuskulären Synapse. Calcium strömt in das erregte Nervenendknöpfchen ein und ermöglicht die Freisetzung von Acetylcholin. Der Botenstoff bindet an Rezeptoren im spezialisierten Muskelmembranbereich, der motorischen Endplatte. Die dadurch ausgelöste örtliche Spannungsänderung kann ein Aktionspotenzial der Muskelfaser auslösen. [7][16][17]
Das Aktionspotenzial läuft über das Sarkolemm und über dessen Einstülpungen, die T-Tubuli, in die Tiefe der Faser. Die Tubuli führen das elektrische Signal nahe an die calciumhaltigen Speicher des sarkoplasmatischen Retikulums. Bei der Skelettmuskelfaser bildet ein T-Tubulus mit zwei benachbarten erweiterten SR-Bereichen eine Triade. [7][32]
In der Triade wird Spannung in Calciumfreisetzung übersetzt
In der T-Tubulusmembran liegt der spannungsempfindliche Dihydropyridinrezeptor, DHPR beziehungsweise CaV1.1. Seine Formänderung ist beim Skelettmuskel funktionell mit dem Ryanodinrezeptor RyR1 in der Membran des sarkoplasmatischen Retikulums gekoppelt. Dadurch öffnen sich die Calciumfreisetzungswege des Speichers. Die Calciumkonzentration im Sarkoplasma steigt. [32]
Die beiden Membransysteme bleiben räumlich getrennt: Der T-Tubulus ist eine Einstülpung der Zellmembran mit Verbindung zum Außenraum; das sarkoplasmatische Retikulum ist ein intrazelluläres Speichersystem. Gerade diese Nachbarschaft ermöglicht die rasche Kopplung. Calcium gelangt aus dem SR in das Zellinnere und erreicht die regulatorischen Proteine an den dünnen Filamenten. [7][32]
Troponin und Tropomyosin steuern die Zugänglichkeit von Aktin
Tropomyosin liegt längs an den Aktinfilamenten. Zusammen mit dem Troponinkomplex beeinflusst es, wie gut Myosinköpfe an Aktin binden können. Der Troponinkomplex besteht aus funktionell unterschiedlichen Teilen: Troponin C bindet Calcium, Troponin T verbindet den Komplex mit Tropomyosin und Troponin I trägt zur Hemmung der Aktin-Myosin-Wechselwirkung bei. [3][8][32]
Bindet Calcium an Troponin C, verschiebt sich die regulatorische Anordnung. Myosin kann nun mit zugänglichen Bindungsstellen des Aktins wirksame Querbrücken bilden. Die Kraftentwicklung wird damit über die Verfügbarkeit von Calcium und die zeitliche Aktivierung der Faser reguliert. Eine längere oder wiederholte Erhöhung des Calciums verändert den Verlauf der Kraftantwort. [8][9][32]
Der Querbrückenzyklus nutzt ATP für wiederholte Arbeitsschritte
Ein Myosinkopf durchläuft mehrere Bindungs- und Formzustände. Die Bindung eines neuen ATP-Moleküls ermöglicht das Lösen von Aktin. Durch die ATP-Spaltung entsteht ein energiereicher Zustand mit gebundenem ADP und Phosphat. Der Kopf kann erneut Kontakt mit einer geeigneten Aktinstelle aufnehmen. Mit dem Übergang in stärker gebundene Zustände, der Phosphatfreisetzung und der kraftentwickelnden Formänderung wird mechanische Arbeit möglich. [3][8]
ADP wird im weiteren Zyklus abgegeben; neues ATP ermöglicht den nächsten Ablöseschritt. Viele Köpfe arbeiten zeitlich versetzt. Ihr gemeinsames Verhalten erzeugt eine relativ gleichmäßige Zugwirkung entlang des Filaments. Ablaufgeschwindigkeit, Last und regulatorischer Zustand beeinflussen, wie lange die einzelnen Zustände besetzt sind und wie sich daraus Kraft und Verkürzung ergeben. [8][30]
Entspannung braucht Calciumrücktransport
Nach Ende der Erregung nimmt die Calciumfreisetzung ab. Calcium-ATPase-Pumpen des SR, häufig als SERCA bezeichnet, transportieren Calcium zurück in den Speicher. Sinkt das frei verfügbare Calcium im Sarkoplasma, löst es sich zunehmend von Troponin. Die regulatorische Anordnung am dünnen Filament hemmt die erneute wirksame Querbrückenbildung. [8][32]
ATP wird somit sowohl für den Querbrückenzyklus als auch für die Wiederherstellung der niedrigen Calciumkonzentration benötigt. Die Entspannungsphase ist ein geordneter physiologischer Vorgang. Das zeitliche Zusammenspiel von Freisetzung, Bindung und Rücktransport prägt die Dauer einer einzelnen Muskelzuckung und die Reaktion auf weitere Nervenimpulse. [8][9][32]
Gesundheitskapitel
Einzelzuckung und Summation verbinden Signal und Kraftverlauf
Auf einen einzelnen auslösenden Impuls folgt zunächst eine kurze Verzögerung, dann steigen und fallen die Kraftwerte der Einzelzuckung. Ein weiterer Impuls kann die Faser erreichen, während Calcium und Kraft noch erhöht sind. Die Antworten überlagern sich; bei höherer Impulsfrequenz wird der Kraftverlauf zunehmend gleichmäßig. [9][39]
Im ganzen Muskel kommt die Rekrutierung weiterer motorischer Einheiten hinzu. Eine motorische Einheit umfasst ein Alpha-Motoneuron und alle von ihm innervierten Muskelfasern. Wie viele Einheiten aktiv sind und wie häufig ihre Axone entladen, beeinflusst die Gesamtmuskelkraft. Das Alles-oder-nichts-Verhalten des einzelnen Aktionspotenzials und die abgestufte Kraft eines Muskels gehören damit zu unterschiedlichen Beschreibungsebenen. [9][39]
Ausgangslänge und Verkürzungsgeschwindigkeit beeinflussen die Kraft
Bei sehr großer Sarkomerlänge überlappen sich dünne und dicke Filamente weniger. Bei sehr kurzer Länge werden die räumlichen Bedingungen ebenfalls ungünstiger. Dazwischen liegt ein Bereich günstiger Überlappung für aktive Kraft. Gleichzeitig verändern sich die passiven Spannungsanteile von Titin und Matrix mit der Dehnung. Die gemessene Gesamtkraft setzt sich aus diesen Anteilen zusammen. [9][15][30]
Auch die Geschwindigkeit spielt eine Rolle. Bei rascher konzentrischer Verkürzung können weniger krafttragende Bindungen gleichzeitig wirksam sein als bei langsamer Verkürzung unter höherer Last. Bei aktiver Verlängerung wirken andere Querbrückenbedingungen und elastische Beiträge zusammen. Für eine konkrete Bewegung kommen Muskelfaserarchitektur, Sehnennachgiebigkeit und der jeweilige Gelenkhebel hinzu. [11][30][31]
Drei mechanische Situationen im Alltag
Beim konzentrischen Arbeiten wird die aktivierte Muskel-Sehnen-Einheit kürzer: Die Tasche steigt. Beim isometrischen Halten bleibt ihre äußere Länge annähernd gleich. Innerhalb der Einheit können sich Faserlänge und Sehnendehnung dennoch gegeneinander verändern. Beim exzentrischen Arbeiten entwickelt der Muskel Zug, während die Einheit unter der äußeren Last länger wird: Die Tasche wird kontrolliert abgesenkt. [11][30]
Diese Begriffe beschreiben den Bewegungszustand unter Kraft. Für die Beobachtung ist deshalb der Bezug wichtig: Gelenkwinkel, Länge der gesamten Einheit und Länge einzelner Fasern können unterschiedliche Verläufe zeigen. Gerade eine nachgiebige Sehne kann einen Teil der Längenänderung aufnehmen. Der molekulare Ablauf wird so in eine aufgabengerechte Bewegung des ganzen Körpers übersetzt. [30][33]
Im Gesundheitswissen weiterlesen
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- Bierbach, Elvira (Hrsg.): Naturheilpraxis Heute. Lehrbuch und Atlas. 7. Auflage. Elsevier, 2024. 7. Auflage, Elsevier 2024. Abschnitt 7.11.7 Muskelgewebe: Skelettmuskel. Abgerufen am 07.11.2026.
- OpenStax / Rice University: Skeletal Muscle Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- OpenStax / Rice University: Muscle Fiber Contraction and Relaxation Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- OpenStax / Rice University: Nervous System Control of Muscle Tension Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- OpenStax / Rice University: Interactions of Skeletal Muscles, Their Fascicle Arrangement, and Their Lever Systems Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- Columbia University: Skeletal Muscle Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- University of Leeds: Muscle Ultrastructure Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- University of Leeds: Neuromuscular Junction Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- University of Texas at Austin / Josef Spacek: Structure of the Neuromuscular Junction Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- Lieber / Ward: Skeletal muscle design to meet functional demands Phil Trans R Soc B 2011;366:1466–1476. DOI 10.1098/rstb.2010.0316. Abgerufen am 07.11.2026.
- Ward et al.: Are current measurements of lower extremity muscle architecture accurate? Clin Orthop Relat Res 2009;467:1074–1082. DOI 10.1007/s11999-008-0594-8. Abgerufen am 07.11.2026.
- Washington University in St. Louis: Muscle Fibers – Structure & Function Anatomische und physiologische Fachinformationen. Abgerufen am 07.11.2026.
- Csapo / Gumpenberger / Wessner: Skeletal Muscle Extracellular Matrix Front Physiol 2020;11:253. DOI 10.3389/fphys.2020.00253. Abgerufen am 07.11.2026.
- Enoka / Duchateau: Rate Coding and the Control of Muscle Force Cold Spring Harb Perspect Med 2017;7:a029702. DOI 10.1101/cshperspect.a029702. Abgerufen am 07.11.2026.