Auf einen Blick
- Dünne Septen verbinden alveoläre Luft mit vorbeiströmendem Kapillarblut.
- Typ-I-Zellen bilden große Austauschflächen; Typ-II-Zellen liefern Surfactant und erneuern Epithel.
- Jedes Gas folgt seinem Partialdruckgefälle; Hämoglobin übernimmt den größten Teil des Sauerstofftransports.
Vom letzten leitenden Luftweg zum Acinus
Gesundheitskapitel
Die terminale Bronchiole endet als letzter Abschnitt mit einer vollständig leitenden Wand. Die anschließenden respiratorischen Bronchiolen besitzen bereits einzelne Alveolen. Danach öffnen sich Alveolargänge zu zahlreichen Alveolen und Alveolarsäckchen. Das gesamte gasaustauschende Gebiet hinter einer terminalen Bronchiole heißt Acinus. Diese räumliche Einheit verbindet die feinste Luftverteilung mit der zugehörigen Mikrozirkulation. [6][12]
Eine Alveole lässt sich als seitlich und nach außen begrenzter Luftraum mit einer Öffnung zum gemeinsamen Luftwegsystem verstehen. Nachbaralveolen teilen sich Septen, in denen Kapillaren, Zellen und Bindegewebsfasern liegen. Am Alveolargang reihen sich viele Öffnungen aneinander. Seine Begrenzung wird dadurch vorwiegend von den freien Rändern der Alveolarsepten gebildet. [11]
Diese Organisation vergrößert die Oberfläche innerhalb eines begrenzten Organvolumens. Alveolenzahl und Lungengröße unterscheiden sich zwischen Menschen. Eine stereologische Originalstudie an sechs erwachsenen menschlichen Lungen fand 274 bis 790 Millionen Alveolen, mit einem Mittelwert von 480 Millionen. Die Spannweite erklärt, weshalb eine einzelne feste Zahl die individuelle Lungenarchitektur nur grob beschreibt. [13]
Das Septum verbindet Austauschfläche und Tragwerk
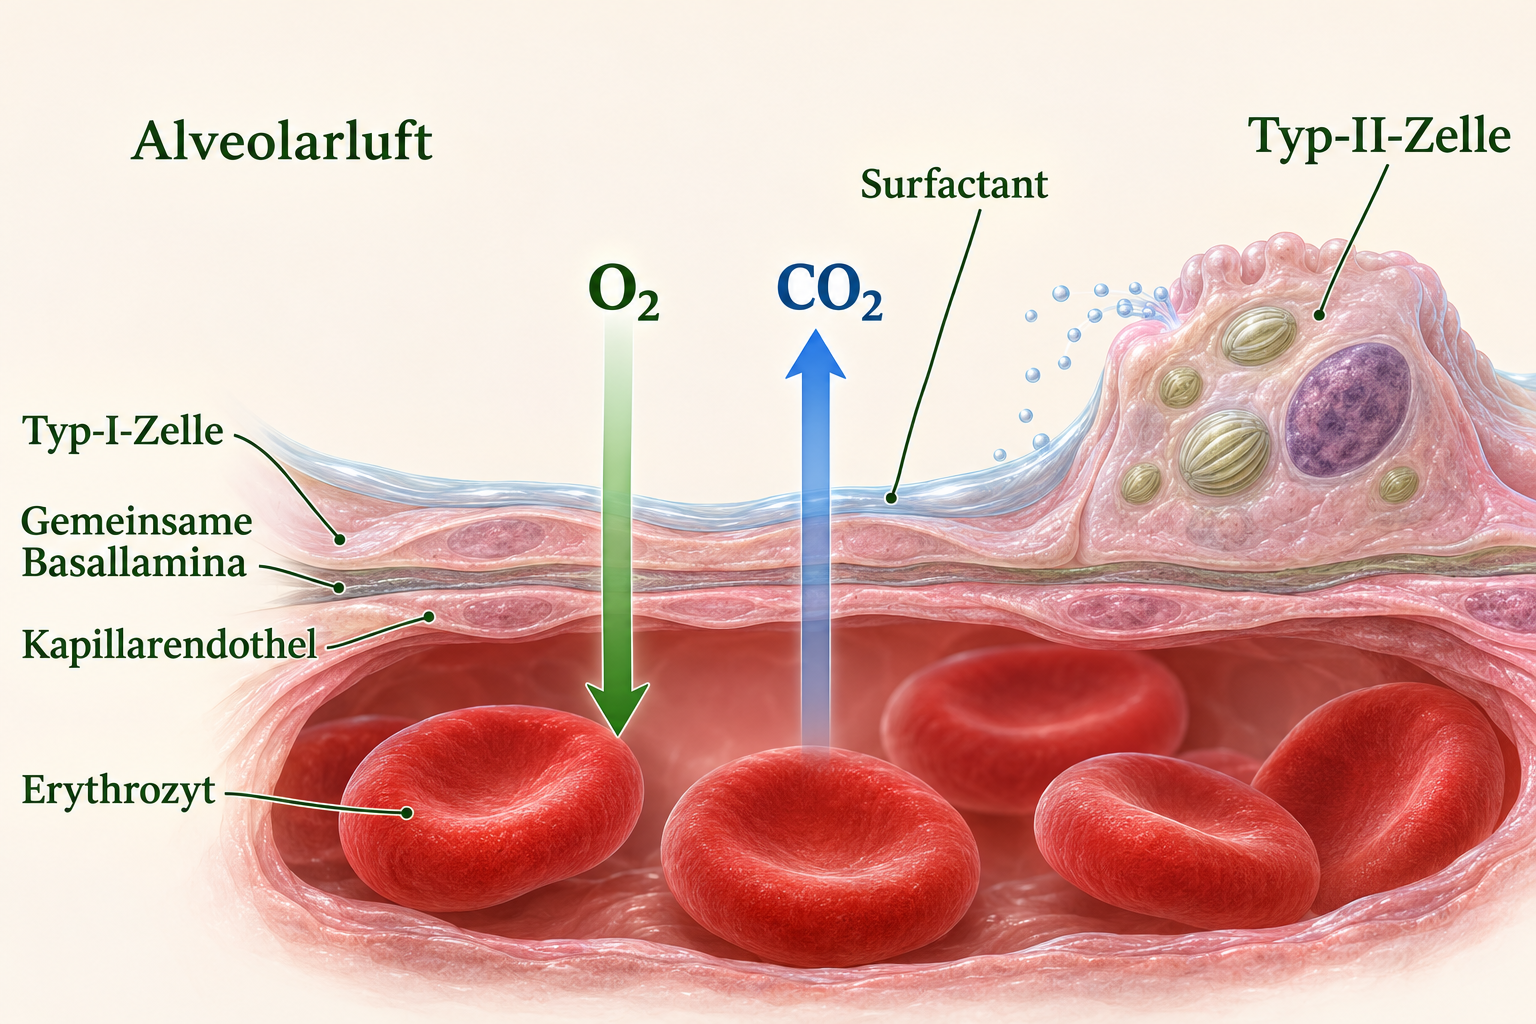
Die gemeinsame Wand zweier Alveolen enthält ein dichtes kapilläres Netz. Auf beiden Luftseiten bedeckt Alveolarepithel das Septum; im Blutraum bilden Endothelzellen eine eigene kontinuierliche Auskleidung. Das dazwischenliegende Interstitium enthält unter anderem Fasern und stromale Zellen. Innerhalb dieser Wand wechseln dünne Austauschabschnitte mit kräftigeren Bereichen, die Zellkerne und mehr Stützgewebe aufnehmen. [7][11]
An der dünnen Seite liegen die Ausläufer von Typ-I-Alveolarzellen und Kapillarendothel sehr dicht zusammen. Ihre Basallaminae können verschmelzen. Der Diffusionsweg durch Gewebe verkürzt sich damit auf wenige äußerst dünne Schichten. In dickeren Abschnitten bleibt ein deutlicherer interstitieller Raum zwischen den beiden Basallaminae. Diese regionalen Unterschiede gehören zum normalen Septenbau. [7]
Elastische und kollagene Fasern sind über Septen, Alveoleneingänge und größere Gerüstanteile miteinander verbunden. Sie verteilen Zugkräfte, unterstützen die Rückstellung und begrenzen übermäßige Ausdehnung. Eine Alveole arbeitet dadurch in einem zusammenhängenden Gewebeverband. Ihre Nachbarn, die Lungenoberfläche und die offenen Luftwege beeinflussen, wie sich das lokale Volumen beim Atmen verändert. [11]
Typ-I- und Typ-II-Zellen besitzen verschiedene Schwerpunkte
Typ-I-Alveolarzellen bilden sehr flache, ausgedehnte Zellfortsätze. Mit diesen dünnen Platten bedecken sie den weitaus größten Teil der alveolären Oberfläche. Der Zellkern liegt in einem dickeren Abschnitt. Die Form ist für kurze Diffusionswege geeignet, während Zellkontakte die Kontinuität der Luftseite sichern. Im histologischen Schnitt erscheint daher nur ein kleiner Teil einer solchen Zelle vollständig. [7][12]
Typ-II-Alveolarzellen sind kompakter und häufig kubisch. Ihr Zytoplasma enthält Lamellarkörperchen, in denen Bestandteile des Surfactants verpackt sind. Sekret gelangt zur Alveolaroberfläche, während verbrauchtes Material wieder aufgenommen und verarbeitet werden kann. Die Verteilung beider Zelltypen erzeugt ein Mosaik aus sehr dünnen Austauschflächen und sekretorisch ausgestatteten Zellen. [7]
Typ-II-Zellen bilden außerdem einen wichtigen Ausgangspunkt der epithelialen Erneuerung. Bei Reparaturvorgängen können sie sich vermehren und zum Ersatz von Alveolarzellen beitragen. Der Erhalt der Oberfläche erfordert dabei eine abgestimmte Differenzierung und intakte Kontakte zu Nachbarzellen sowie zur extrazellulären Matrix. Zellbestand, Barrierefunktion und mechanische Umgebung stehen dadurch in engem Zusammenhang. [11]
Surfactant stabilisiert die Luft-Flüssigkeits-Grenze
Eine dünne Flüssigkeitsschicht bedeckt die alveoläre Zelloberfläche. An ihrer Grenze zur Luft wirken zwischenmolekulare Kräfte als Oberflächenspannung. Surfactant enthält vor allem Lipide und spezifische Proteine. Seine oberflächenaktiven Bestandteile ordnen sich an dieser Grenzfläche an und vermindern die Spannung. Die Lunge benötigt dadurch weniger Druckänderung, um ihre Austauschregion auszudehnen. [9][11]
Beim kleiner werdenden Lungenvolumen ändern sich Anordnung und Wirkung des Films. Die Absenkung der Oberflächenspannung stabilisiert besonders niedrige Volumina. Gemeinsam mit dem Fasergerüst unterstützt das einen offenen, funktionsfähigen Alveolarraum während der Ausatmung. Die mechanische Stabilität entsteht aus dem Zusammenspiel von Oberflächenfilm, Gewebeverbindungen und der Druckdifferenz über der Lunge. [9]
Die Oberfläche befindet sich in einem Stoffkreislauf: Typ-II-Zellen synthetisieren, speichern und sezernieren Surfactantbestandteile, nehmen Material wieder auf und recyceln es. Alveolarmakrophagen beteiligen sich am Abbau. Einige Surfactantproteine beeinflussen zudem die Erkennung von Partikeln und Erregern. Damit treffen an derselben Grenzfläche mechanische und immunologische Aufgaben zusammen. [11]
Der Weg eines Sauerstoffmoleküls
Gesundheitskapitel
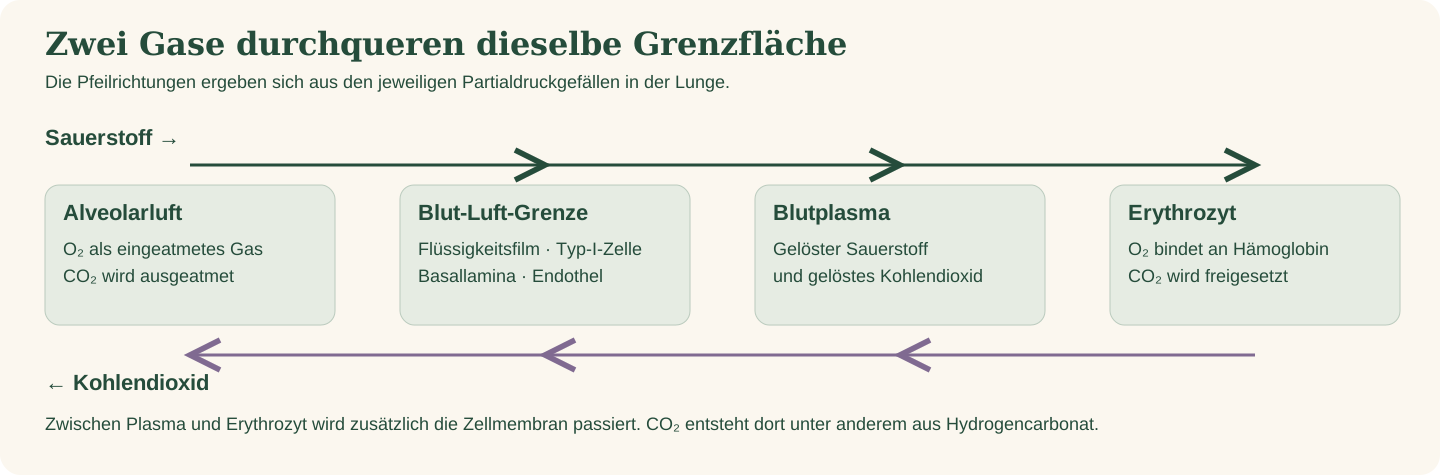
Sauerstoff befindet sich zunächst gasförmig im Alveolarraum. Für den Übertritt löst er sich im Oberflächenfilm und durchquert das Alveolarepithel. Es folgen Basallamina beziehungsweise dünnes Interstitium und die Endothelzelle. Nach dem Eintritt ins Plasma gelangt Sauerstoff über die Erythrozytenmembran in die rote Blutzelle und bindet überwiegend an Hämoglobin. [4][5][7]
Ein Ruhebeispiel auf Meereshöhe macht das Gefälle greifbar: In gut belüfteter Alveolarluft kann der Sauerstoffpartialdruck etwa 104 mmHg betragen, im ankommenden gemischtvenösen Blut etwa 40 mmHg. Sauerstoff diffundiert zur Blutseite. Für CO₂ stehen ungefähr 45 mmHg im ankommenden Blut etwa 40 mmHg in der Alveole gegenüber. Seine bessere Löslichkeit ermöglicht den wirksamen Austausch bei diesem kleineren Gefälle. Höhenlage, Ventilation, Stoffwechsel und Erkrankungen verändern diese Orientierungswerte. [4]
Das antreibende Gefälle betrifft den Partialdruck. Dieser beschreibt den Druckanteil eines Gases im Gasgemisch beziehungsweise den zu seiner gelösten Konzentration gehörenden Gasdruck. Im ankommenden gemischtvenösen Blut liegt der Sauerstoffpartialdruck unter dem der belüfteten Alveole. Die Diffusion verschiebt Sauerstoff deshalb zur Blutseite, bis sich die örtlichen Partialdrücke annähern. [4]
Währenddessen bewegen sich die Erythrozyten durch die Kapillaren. Bindung an Hämoglobin nimmt einen großen Teil des eintretenden Sauerstoffs auf. Die Blutströmung führt oxygeniertes Blut ab und bringt neues Blut an die Austauschfläche. Für den Gesamtablauf sind somit die Eigenschaften der Membran, die verfügbare Blutmenge und die Verweilzeit in der kapillären Passage miteinander verbunden. [5][20]
Welche Größen die Diffusion beeinflussen
Ein größeres Partialdruckgefälle und mehr nutzbare Austauschfläche fördern die übertragene Gasmenge. Eine längere Diffusionsstrecke verringert sie. Diese Beziehungen werden im Fickschen Diffusionsgesetz zusammengefasst: Transfer hängt von Fläche, Dicke, gasabhängiger Diffusionsfähigkeit und Druckgefälle ab. Kohlendioxid besitzt andere physikalische Lösungs- und Diffusionseigenschaften als Sauerstoff und kann bei einem wesentlich kleineren Partialdruckgefälle wirksam ausgetauscht werden. [4]
Die Austauschfläche kann sich funktionell und strukturell verändern. Gefäßrekrutierung und die regionale Füllung der Kapillaren beeinflussen den Blutkontakt. Der Verlust von Septen beim Emphysem verkleinert die verfügbare Grenzfläche. Eine Verdickung der Gewebeschichten oder Flüssigkeitsansammlung vergrößert dagegen den Weg. Aus ähnlichen Symptomen können dadurch unterschiedliche örtliche Transportprobleme entstehen. [9][11]
Belastung erhöht die Anforderung an die Sauerstoffaufnahme und verändert Blutfluss sowie Ventilation. Entscheidend ist dann, wie viel wirksame Austauschkapazität verfügbar bleibt, während Blut die Kapillaren passiert. Eine Beschreibung der Membran allein erfasst diesen zeitlichen Zusammenhang nur teilweise. Die Funktion lässt sich am besten aus Luftseite, Gewebeweg und durchströmender Blutseite gemeinsam ableiten. [4][21]
Belüftung und Durchblutung müssen regional zusammenfinden
Alveoläre Ventilation bezeichnet die Frischgaszufuhr bis zur Austauschregion. Perfusion ist der Blutfluss durch ihre Gefäße. Das Verhältnis V̇A/Q̇ stellt beide Ströme für eine Region gegenüber. Verschiedene Lungenabschnitte erhalten unterschiedliche Anteile von Luft und Blut. Körperlage, Schwerkraft, Gewebeverformung und Gefäßverteilung tragen zu dieser räumlichen Ungleichheit bei. [4][21]
Bei einem niedrigen Verhältnis erreicht relativ wenig Frischgas die vorhandene Blutmenge. Der Sauerstoffpartialdruck dieser Region fällt und ihr Kohlendioxidpartialdruck steigt. Bei einem hohen Verhältnis steht relativ viel Belüftung einer geringen Perfusion gegenüber. Welche Mischung schließlich in den Lungenvenen ankommt, ergibt sich aus den Beiträgen aller durchbluteten Austauschgebiete. [4][22]
Örtlich niedriger alveolärer Sauerstoff kann kleine Lungenarterien zur Verengung anregen. Diese hypoxische pulmonale Vasokonstriktion lenkt einen Teil des Blutflusses zu besser belüfteten Gebieten um. Bei einer großflächigen Sauerstoffarmut betrifft die Reaktion viele Gefäße gleichzeitig und kann den Widerstand des gesamten Lungenkreislaufs erhöhen. Die räumliche Ausdehnung des Auslösers verändert somit den Gesamteffekt. [22]
Totraum und Shunt beschreiben zwei unterschiedliche Grenzfälle
Im leitenden Atemweg liegt anatomischer Totraum: Das eingeatmete Gas nimmt dort am Transport teil, erreicht in diesem Atemzug aber keine alveoläre Austauschfläche. Alveolärer Totraum betrifft belüftete Alveolen, deren Blutkontakt für den Gasaustausch fehlt oder stark vermindert ist. Zusammen ergeben beide Komponenten den physiologischen Totraum. [3][9]
Ein alveolärer Shunt beschreibt den Gegenfall: Blut durchströmt ein Gebiet ohne wirksame Belüftung. Sein Sauerstoffgehalt bleibt näher am ankommenden venösen Zustand. Wenn es sich mit Blut gut ventilierter Regionen mischt, sinkt die gemeinsame Oxygenierung. Regionale Minderbelüftung, unterschiedlich schwere V̇A/Q̇-Störungen und vollständiger Shunt bilden physiologisch unterscheidbare Zustände. [21][22]
Diese Begriffe helfen, Erkrankungsmechanismen geordnet zu lesen. Eine unterbrochene arterielle Zufuhr kann Austauschfläche bei erhaltener Ventilation funktionell ungenutzt lassen. Ein flüssigkeitsgefüllter oder kollabierter, weiterhin perfundierter Luftraum vermindert dagegen die Oxygenierung des durchfließenden Blutes. Zusätzlich können Diffusionsstrecke und Gesamtventilation verändert sein. Mehrere Mechanismen können in derselben Lunge nebeneinander auftreten. [10][22]
Hämoglobin verbindet Partialdruck und Sauerstoffgehalt
Der Sauerstoffpartialdruck hängt mit dem physikalisch gelösten Sauerstoff zusammen. Die Sauerstoffsättigung beschreibt den besetzten Anteil der Hämoglobin-Bindungsstellen. Der Sauerstoffgehalt eines Blutvolumens hängt wesentlich von der Hämoglobinkonzentration und deren Sättigung ab. Diese drei Größen beantworten unterschiedliche Fragen zur Aufnahme und zum Weitertransport. [5]
Die Bindungskurve des Hämoglobins ist S-förmig, weil die Besetzung einer Untereinheit die weiteren Bindungen beeinflusst. Im Gewebe verschieben beispielsweise erhöhte Temperatur, mehr Kohlendioxid und ein niedrigerer pH das Verhältnis zugunsten der Sauerstoffabgabe. An der Lunge ermöglichen hohe alveoläre Sauerstoffpartialdrücke eine weitgehende Beladung, sofern Ventilation, Diffusion und Perfusion zusammenwirken. [5]
Die Verbindung zum Blut erklärt, weshalb die Austauschleistung auch außerhalb des Lungengewebes beeinflusst wird. Eine veränderte Hämoglobinmenge verändert die Transportkapazität. Ein veränderter Herzzeitvolumenstrom verändert den Gastransport pro Zeit und die kapilläre Passage. Die Erythrozytenseite verfolgt Form, Membran und Hämoglobin der beteiligten Blutzellen weiter. [5][20][21]
Kohlendioxid wird vor dem Ausatmen zurückverwandelt
Der größte Teil des aus den Geweben aufgenommenen Kohlendioxids reist als Hydrogencarbonat zur Lunge. In den Körperkapillaren entsteht es überwiegend in Erythrozyten durch die von Carboanhydrase beschleunigte Reaktion von Kohlendioxid und Wasser. Hydrogencarbonat kann über einen Anionenaustauscher im Austausch gegen Chlorid ins Plasma gelangen. Weitere Anteile des Kohlendioxids bleiben gelöst oder binden an Proteine. [5]
In den Lungenkapillaren gelangt Hydrogencarbonat aus dem Plasma zurück in die Erythrozyten. Aus Hydrogencarbonat und Wasserstoffionen entsteht wieder Kohlendioxid über das Kohlensäure-System. Das Gas diffundiert aus der Zelle über Plasma und Blut-Luft-Grenze in die Alveole. Die Ausatmung erneuert die Luft und führt es aus dem Körper ab. [5]
Die Oxygenierung von Hämoglobin begünstigt dabei die Abgabe von Kohlendioxid und Wasserstoffionen. Dieser Zusammenhang gehört zum Haldane-Effekt. Er koppelt die Sauerstoffaufnahme an die Kohlendioxidabgabe im Lungenkapillargebiet. Die Verbindung zwischen Kohlendioxid, Hydrogencarbonat und pH macht die Lunge zugleich zu einem Organ der kurzfristigen Säure-Basen-Regulation. [5]
Eine trockene Austauschstrecke braucht aktiven Flüssigkeitshaushalt
Im gesunden Septum bleiben alveoläre Flüssigkeit, Interstitium und Blutplasma kontrolliert voneinander getrennt. Endothel, Epithel und ihre Zellverbindungen bestimmen gemeinsam den Durchtritt von Flüssigkeit und gelösten Stoffen. Druckverhältnisse und Gewebeabfluss wirken ebenfalls mit. Schon die räumliche Trennung dünner Austauschstellen von tragenden, dickeren Septenanteilen unterstützt eine große wirksame Oberfläche. [7][11]
Zur Flüssigkeitsräumung trägt gerichteter Natriumtransport durch das Alveolarepithel bei. Natrium wird an der Luftseite aufgenommen und mithilfe der Natrium-Kalium-ATPase an die Gewebeseite weitergegeben; Wasser folgt dem entstehenden osmotischen Gefälle. Experimente an frisch entfernten menschlichen Lungen zeigten, dass die Hemmung dieser Transportwege die Flüssigkeitsräumung deutlich vermindert. Die Austauschfläche wird somit durch Barriereeigenschaften und fortlaufenden epithelialen Transport funktionsfähig gehalten. [32]
Ein Lungenödem vermehrt Flüssigkeit im Interstitium und gegebenenfalls im Alveolarraum. Dadurch können sich Diffusionsstrecke und Belüftung verändern. Bei entzündlicher Schädigung der Grenzschichten kann zusätzlich die Durchlässigkeit steigen. Eine Fibrose verändert die Gewebematrix und ihre Dehnbarkeit. Der jeweilige Mechanismus beeinflusst somit zugleich Austausch, Flüssigkeitsverteilung und Atemarbeit. [9][11]
Alveolarmakrophagen nehmen Material von der Oberfläche auf und wirken an lokalen Abwehrreaktionen mit. Für die Austauschfunktion ist eine abgestimmte Antwort bedeutsam: Partikel und Zellreste werden beseitigt, während Epithel und Endothel kontinuierlich erhalten werden müssen. Die alveoläre Grenzfläche ist damit ein lebendes, aktiv unterhaltenes Gewebe. [7][11]
Wie eine DLCO-Messung die Transferleistung betrachtet
Die Diffusionskapazität für Kohlenmonoxid wird als DLCO oder Transferfaktor TLCO bezeichnet. Eine definierte kleine Testmenge des Gases wird eingeatmet, und ihre Aufnahme aus dem Alveolarraum in das Blut wird anhand der Gaszusammensetzung ermittelt. Kohlenmonoxid bindet stark an Hämoglobin. Das Verfahren verbindet dadurch die Überwindung der Grenzschichten mit der anschließenden Blutbindung. [20]
In die Messgröße gehen mehrere Eigenschaften ein: die wirksam belüftete Austauschregion, Membranleitfähigkeit, kapilläres Blutvolumen und die Hämoglobinverfügbarkeit. Auch die Verteilung des Testgases beeinflusst, welche Lungenanteile während der Untersuchung erfasst werden. Eine Einatem-Gasverdünnung bildet ungleichmäßig oder schlecht erreichbare Regionen anders ab als eine Volumenmessung, die auch eingeschlossenes Gas berücksichtigt. [16][20]
Für die Einordnung werden deshalb Lungenvolumina, Spirometrie, Hämoglobin und weitere Befunde gemeinsam betrachtet. Die Atemmechanik erklärt die Druck- und Strömungsseite dieser Untersuchungen. Die Übersicht zu Atemwegen und Lunge ordnet den Austauschraum wieder in den gesamten Luft- und Gefäßweg ein. [15][16][20]
Diese Zusammenhänge vertiefen
Quellen und Weiterlesen
- OpenStax: Anatomy and Physiology 2e, 22.3 The Process of Breathing Kapitel22.3: Pulmonary Ventilation; Respiratory Volumes and Capacities; Ventilation Control Centers.
- OpenStax: Anatomy and Physiology 2e, 22.4 Gas Exchange Kapitel22.4: Partial Pressures of Gases; Ventilation and Perfusion; External Respiration.
- OpenStax: Anatomy and Physiology 2e, 22.5 Transport of Gases Kapitel22.5: Oxygen Transport; Carbon Dioxide Transport; Bicarbonate Buffer; Haldane Effect.
- Columbia University: Histology Laboratory, Lab 11 Respiratory System Lab11: Tabelle zum Wandaufbau und Einteilung in leitenden und respiratorischen Abschnitt.
- Columbia University: Respiratory System Micrographs Lab11: Beschreibungen von Trachea, terminalen Bronchiolen, alveolären Zelltypen und dünner/dicker Blut-Luft-Grenze.
- Carbrey J, Jakoi E: Introductory Human Physiology, Respiratory System Physiology. Duke University Introductory Human Physiology, Respiratory System Physiology, PDF-S.1–8: Atembewegung, Druck-Volumen-Beziehung, Surfactant und Atemwegswiderstand.
- Kandathil A, Chamarthy M (2018): Pulmonary vascular anatomy & anatomical variants Cardiovasc Diagn Ther8(3):201–207. DOI10.21037/cdt.2018.01.04. Abschnitte Pulmonary arteries, Pulmonary veins und Bronchial arteries/veins.
- Knudsen L, Ochs M (2018): The micromechanics of lung alveoli: structure and function of surfactant and tissue components Histochem Cell Biol150:661–676. DOI10.1007/s00418-018-1747-9. The structural components for gas exchange; Function under normal conditions.
- University of Leeds: Histology Guide, Respiratory portion Respiratory portion: Functions of the Respiratory Portion; Alveoli.
- Ochs M et al. (2004): The number of alveoli in the human lung Am J Respir Crit Care Med169(1):120–124. DOI10.1164/rccm.200308-1107OC. Abstract der stereologischen Originalstudie an sechs erwachsenen Lungen.
- Graham BL et al. (2019): Standardization of Spirometry 2019 Update. ATS/ERS Technical Statement Am J Respir Crit Care Med200:e70–e88. DOI10.1164/rccm.201908-1590ST. Messgrößen, Akzeptabilität und Wiederholbarkeit, besonders e78–e82.
- Bhakta NR et al. (2023): ERS/ATS technical statement: standardisation of the measurement of lung volumes, 2023 update Eur Respir J62:2201519. DOI10.1183/13993003.01519-2022. PDF-S.2–5: Definitionen und Unterteilung von Lungenvolumina; Verfahren zur FRC-Messung.
- Graham BL et al. (2017): ERS/ATS standards for single-breath carbon monoxide uptake in the lung Eur Respir J49:1600016. DOI10.1183/13993003.00016-2016. Background; Determinants of carbon monoxide uptake.
- Hopkins SR (2020): Ventilation/Perfusion Relationships and Gas Exchange: Measurement Approaches Compr Physiol10:1155–1205. DOI10.1002/cphy.c180042. Abstract: regionale Zuordnung von Frischgaszufuhr und kapillärem Blutfluss.
- Petersson J, Glenny RW (2014): Gas exchange and ventilation–perfusion relationships in the lung Eur Respir J44:1023–1041. DOI10.1183/09031936.00037014. V′A/Q′ mismatch and vascular tone; Hypoxic pulmonary vasoconstriction.
- Sakuma T et al. (1994): Alveolar fluid clearance in the resected human lung Am J Respir Crit Care Med150(2):305–310. DOI10.1164/ajrccm.150.2.8049807. Experiment an frisch reseziertem menschlichem Lungengewebe: Natriumaufnahme und Na,K-ATPase als Beiträge zur Flüssigkeitsräumung.