Auf einen Blick
- Nervenfasern aus Substantia nigra und ventralem Tegmentum erreichen unterschiedliche Zielgebiete im Vorderhirn. [2]
Wie Dopamin die Verarbeitung einer Zielzelle verändert
Eine Nervenzelle empfängt ständig Signale aus verschiedenen Quellen. Dopamin bindet an G-Protein-gekoppelte Rezeptoren und verändert darüber intrazelluläre Signalwege. Dadurch können sich Erregbarkeit, Reaktionsbereitschaft und synaptische Plastizität verändern. Für die Wirkung sind Rezeptortyp, Zelltyp und der aktuelle Zustand der Schaltung bedeutsam. [1] [2]
Diese Art der Signalübertragung heißt Neuromodulation. Sie verändert die Bedingungen, unter denen ein Zellverband eingehende Informationen verarbeitet. Eine Projektion kann viele verzweigte Axonabschnitte besitzen; in ihren Zielgebieten erfolgt Freisetzung an örtlich organisierten Stellen. Die Wirkung hat damit sowohl einen anatomischen Verteilungsweg als auch eine mikroskopische räumliche Ordnung. [2]
Von Tyrosin zu Dopamin und in das Vesikel
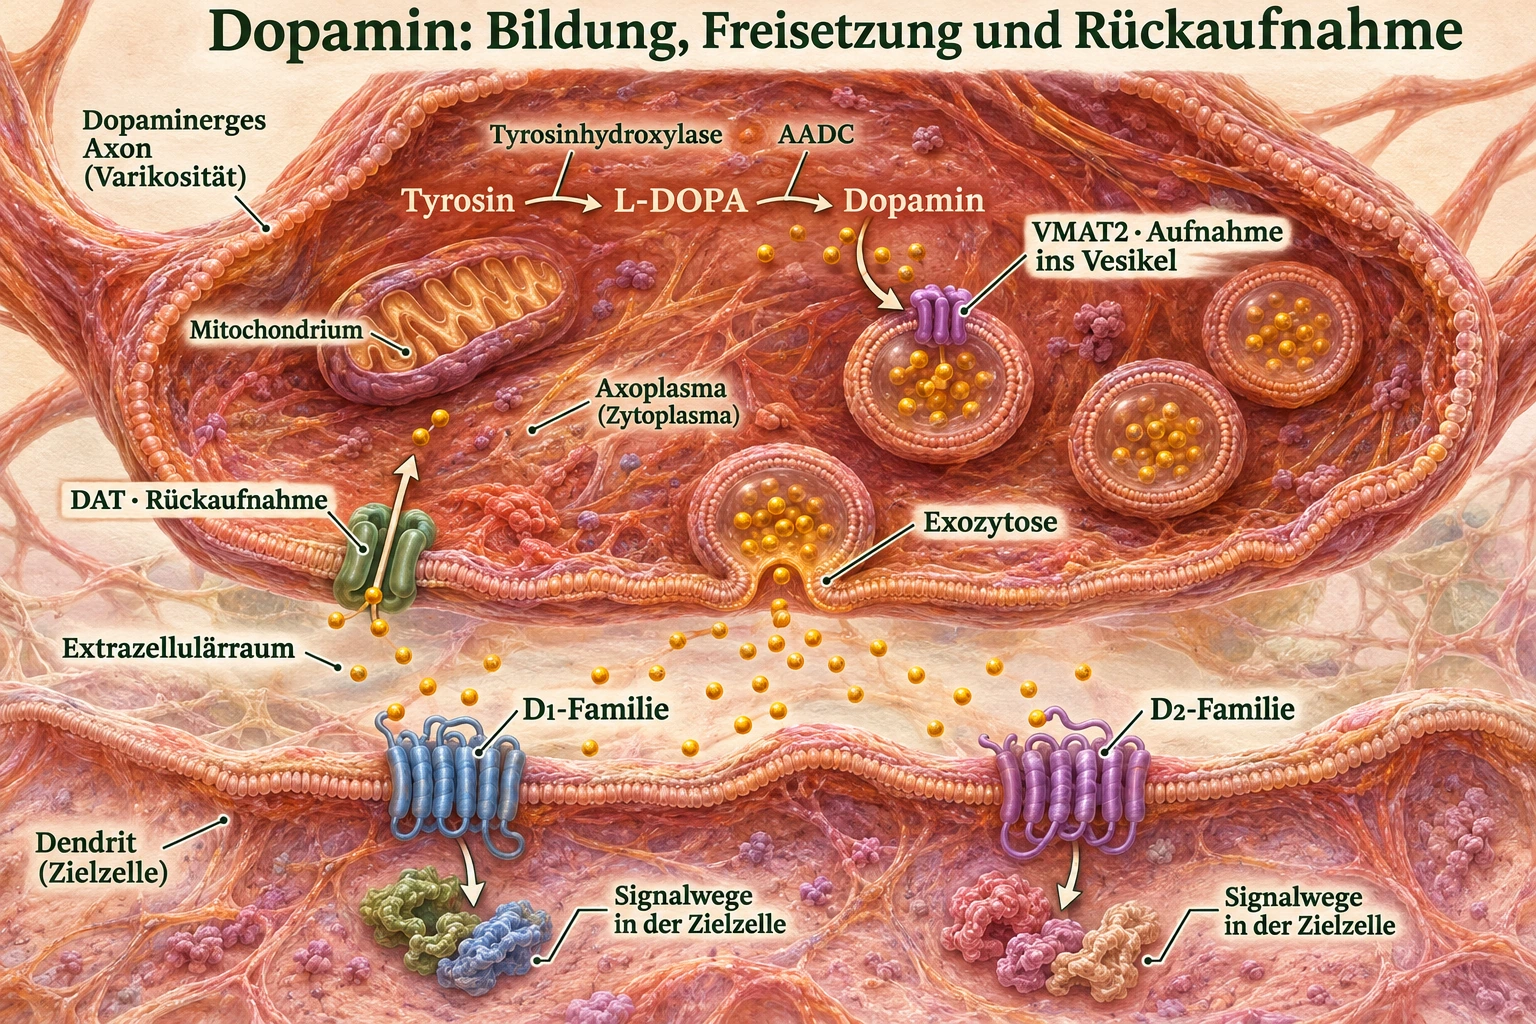
Die Synthese beginnt mit der Aminosäure L-Tyrosin. Die Tyrosinhydroxylase bildet daraus L-DOPA. Anschließend entsteht durch die aromatische L-Aminosäure-Decarboxylase, kurz AADC, Dopamin. Beide Reaktionsschritte gehören zum Stoffwechsel der dopaminergen Zelle. Der Weg verbindet die Verfügbarkeit eines Ausgangsstoffs mit enzymatisch kontrollierter Herstellung. [1] [10]
Der vesikuläre Monoamintransporter VMAT2 nimmt Dopamin aus dem Zytosol in Vesikel auf. In diesen membranumhüllten Bläschen steht es für die Freisetzung bereit. Bei einer Exozytose verschmilzt eine Vesikelmembran mit der äußeren Zellmembran und gibt Inhalt an den Extrazellulärraum ab. In der Tafel sind Syntheseort, Transport in das Vesikel und Öffnung zur Gewebeumgebung nacheinander zu verfolgen. [1] [2]
Gesundheitskapitel
D1- und D2-Familie: Rezeptoren mit verschiedenen Signalwegen
Zu den D1-ähnlichen Rezeptoren gehören D1 und D5, zu den D2-ähnlichen D2, D3 und D4. Alle fünf sind G-Protein-gekoppelte Rezeptoren. D1-ähnliche Rezeptoren erhöhen in vielen Zellzusammenhängen die Bildung des intrazellulären Botenstoffs cAMP; D2-ähnliche Rezeptoren können sie über andere G-Proteine vermindern. Die nachfolgende Antwort hängt von den Proteinen und Ionenkanälen der jeweiligen Zelle ab. [1] [10]
Dopaminrezeptoren befinden sich auch an dopaminergen Zellen selbst. Solche Autorezeptoren nehmen örtlich freigesetztes Dopamin wahr und beteiligen sich an der Rückkopplung von Herstellung und Freisetzung. Rezeptoren auf empfangenden Zellen und Autorezeptoren bilden daher unterschiedliche Angriffspunkte innerhalb derselben Signalumgebung. [4]
DAT: Rückaufnahme und örtliche Begrenzung des Signals
Der Dopamintransporter DAT sitzt in der Membran dopaminerger Axone und nimmt extrazelluläres Dopamin in die Zelle zurück. Damit verändert er, wie lange und in welcher Konzentration Dopamin an Rezeptoren verfügbar ist. Zurückaufgenommenes Dopamin kann erneut in Vesikel gelangen oder weiter verstoffwechselt werden. [3]
Auch die Menge von DAT an der Zelloberfläche wird reguliert. Transporter können in die Membran eingebaut und durch Endozytose wieder entfernt werden. Die Zelloberfläche ist damit ein veränderlicher Ort der Signalregulation. Herstellung, Vesikelbeladung, Freisetzung und Rückaufnahme wirken im zeitlichen Verlauf zusammen. [3]
Weitere Zellen des Striatums beeinflussen die Freisetzung unmittelbar an den Axonabschnitten. Dazu gehören cholinerge Schaltungen und verschiedene lokale Botenstoffe. Diese örtlichen Mechanismen verändern Zeitpunkt und Ausmaß des Signals zusätzlich zu der Aktivität der Zellkörper im Mittelhirn. [4]
Drei große Projektionswege aus dem Mittelhirn
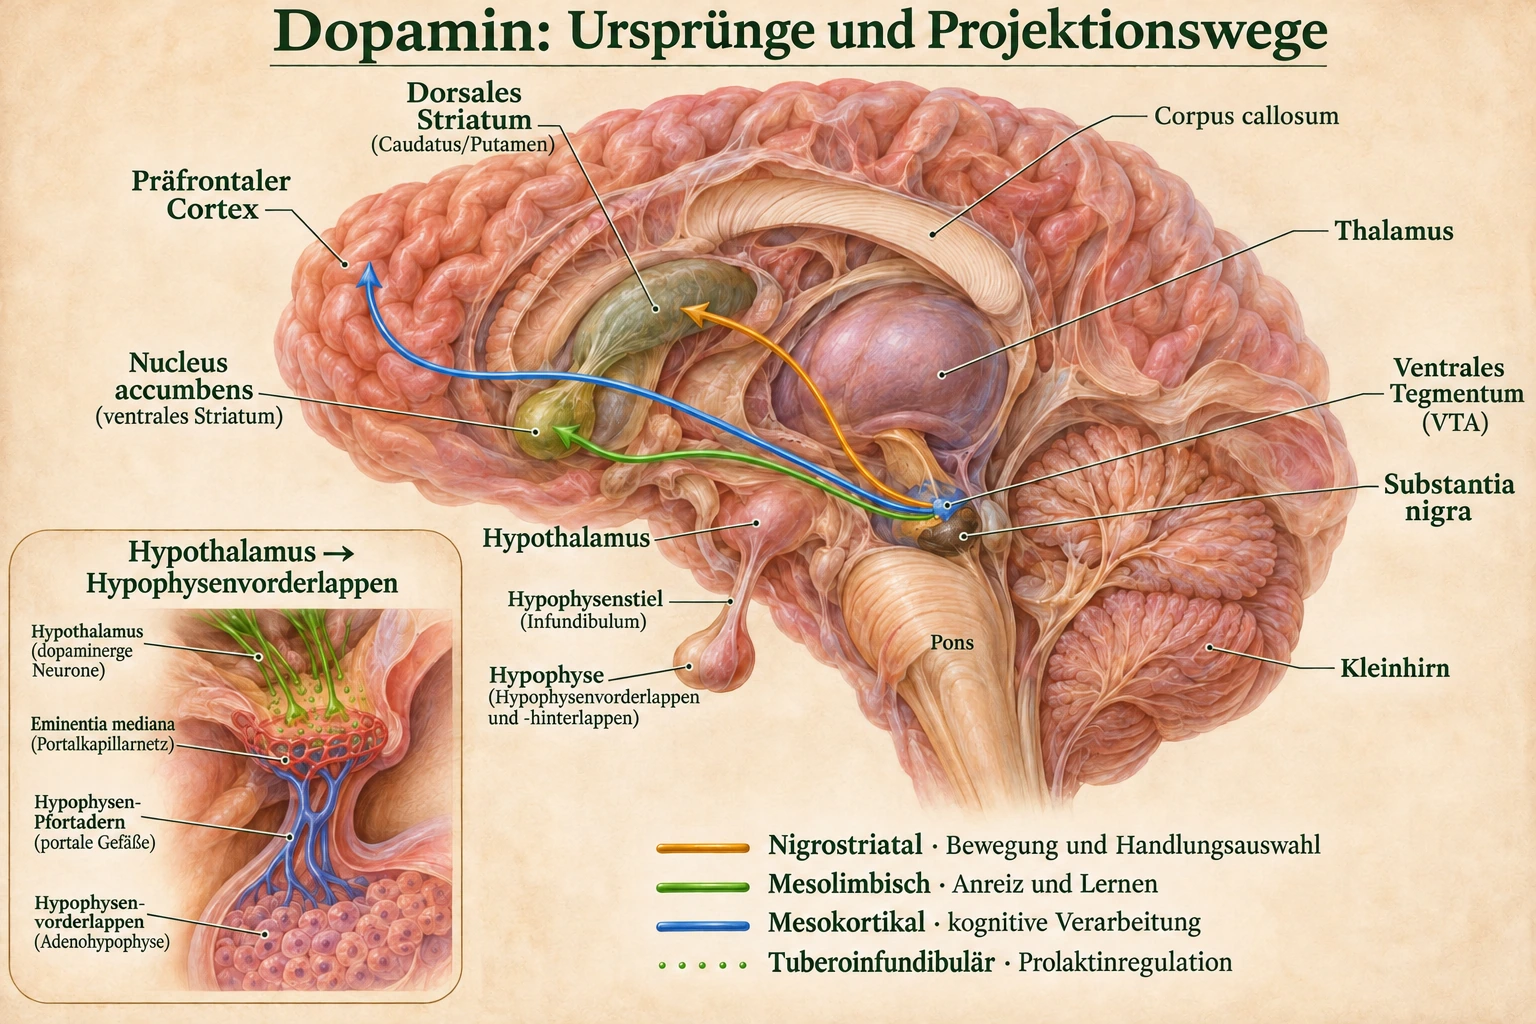
Die Substantia nigra, Pars compacta (kompakter Anteil der schwarzen Substanz), liegt im Mesencephalon (Mittelhirn). Von dort ziehen dopaminerge Axone in das dorsale Striatum, zu dem Nucleus caudatus (Schweifkern) und Putamen (Schalenkern) gehören. Dieser nigrostriatale Weg beteiligt sich an Handlungsauswahl und Bewegungssteuerung in den Basalganglienschleifen. [2] [12]
Die Area tegmentalis ventralis, VTA (ventrales Tegmentum), liegt ebenfalls im Mittelhirn. Ihre Projektionen zum ventralen Striatum einschließlich Nucleus accumbens werden als mesolimbischer Weg bezeichnet. Projektionen zum präfrontalen Cortex heißen mesokortikal. Zielregion und lokale Verschaltung bestimmen, wie die dopaminerge Modulation mit Lernen, Anreizverarbeitung und kognitiven Aufgaben zusammenhängt. [2] [12]
Gesundheitskapitel
Ein weiterer Weg führt zur Prolaktinregulation
Tuberoinfundibuläre dopaminerge Neurone haben ihre Zellkörper im Nucleus arcuatus (Bogenkern) des Hypothalamus. Ihre Axone erreichen die Eminentia mediana (mittlere Erhebung an der Hypothalamusbasis). Dort wird Dopamin in ein Kapillarnetz abgegeben. Über Hypophysen-Pfortadergefäße gelangt es zum Hypophysenvorderlappen. [5]
An laktotropen Zellen aktiviert Dopamin D2-Rezeptoren und hemmt die Prolaktinfreisetzung. Dieser neuroendokrine Weg verbindet einen neuronalen Ausgangspunkt mit einem Transportabschnitt im Blut und einer hormonellen Zielzelle. Die vergrößerte Einfügung der Tafel zeigt deshalb Kapillaren und Portalgefäße zwischen Nervenendigungen und Vorderlappenzellen. [5]
Kurze Signaländerungen, länger verlaufende Aktivität
Bei der Beschreibung dopaminerger Aktivität werden phasische und tonische Vorgänge unterschieden. Phasisch bezeichnet kurze, ereignisbezogene Änderungen; tonisch beschreibt eher anhaltende Aktivitäts- oder Konzentrationsverhältnisse. Für ihre Messung werden je nach Fragestellung elektrische Ableitungen, chemische Proben oder optische Sensoren eingesetzt. [2] [6]
In einer tierexperimentellen Untersuchung von 2019 wurden VTA-Zellaktivität und Dopaminfreisetzung im Nucleus accumbens während derselben Entscheidungsaufgabe verglichen. Belohnungsankündigungen veränderten beide Signale. Die örtliche Freisetzung spiegelte zusätzlich laufend veränderliche Belohnungserwartungen wider. Der Vergleich zeigt, wie Zellkörperaktivität und lokale Freisetzungsregulation zusammen zum Signal am Zielort beitragen. [9]
Belohnungsvorhersagefehler: Erwartung trifft Ergebnis
Ein Belohnungsvorhersagefehler beschreibt die Differenz zwischen erwartetem und tatsächlichem Ergebnis. In klassischen Tierexperimenten stieg die phasische Aktivität vieler Dopaminneurone bei einer unerwarteten Belohnung an. Mit dem Lernen verlagerte sich die Antwort auf den vorhersagenden Reiz. Eine schlechter als erwartete Belohnung ging mit einer verminderten Aktivität zum erwarteten Zeitpunkt einher. [6]
Der Begriff Fehler bezeichnet hier eine Abweichung der Vorhersage. Ein überraschend gutes Ergebnis ergibt einen positiven, ein schlechteres einen negativen Wert. Ein vollständig erwartetes Ergebnis liegt nahe der bisherigen Vorhersage. So kann Erfahrung die Bewertung eines Reizes oder einer Handlung bei späteren Entscheidungen verändern. [6]
Auch Humanstudien untersuchen diesen Lernprozess. Pessiglione und Kollegen verbanden 2006 eine Lernaufgabe mit pharmakologischer Veränderung dopaminerger Funktion und fMRT. Die beobachteten striatalen Vorhersagefehlersignale und Entscheidungen unterschieden sich zwischen den Wirkstoffbedingungen. Die Untersuchung verknüpfte damit ein rechnerisches Lernmodell mit messbarem Verhalten und Bildgebung. [7]
Anreiz, Genuss und die Bereitschaft zu Aufwand
Die Forschung unterscheidet beim Belohnungsgeschehen unter anderem Anreizmotivation, Genuss und Lernen. Mit „wanting“ wird der motivationale Zug einer Belohnung bezeichnet, mit „liking“ deren angenehme Wirkung beim Erleben. Mesolimbische Dopaminsysteme sind besonders mit der Anreizkomponente verknüpft. Diese begriffliche Aufteilung hilft, das Aufsuchen einer Belohnung und ihre tatsächliche Erfahrung getrennt zu untersuchen. [8]
Geistige Anstrengung lässt sich beispielsweise als Wahl zwischen einer leichteren, geringer bezahlten und einer schwierigeren, höher bezahlten Aufgabe untersuchen. Eine Studie von 2020 verband solche Entscheidungen mit striataler Dopaminsynthesekapazität und pharmakologischen Bedingungen. Die Ergebnisse brachten die Gewichtung erwarteten Nutzens und Aufwands mit dopaminerger Funktion in Zusammenhang. [11]
Messort, Zeitfenster und untersuchte Funktion
Eine Dopaminmessung erhält ihre Bedeutung durch Ort und Methode. Im Gehirn werden beispielsweise lokale Konzentrationsänderungen oder die Verfügbarkeit bestimmter Rezeptoren untersucht. Eine Blutprobe erfasst dagegen ein peripheres Kompartiment. Die Blut-Hirn-Schranke begrenzt den Übertritt des Dopamins aus dem Blut in das Zentralnervensystem. [10]
Für eine Forschungsfrage werden deshalb passende Endpunkte gewählt: eine Bewegungsantwort, die Wahl einer Aufgabe, ein Lernverlauf oder die Prolaktinfreisetzung. Die zugehörigen Messungen geben Auskunft über jeweils bestimmte Vorgänge. Anatomischer Weg, Rezeptorausstattung und Zeitverlauf liefern den Zusammenhang, in dem ein Ergebnis verständlich wird. [2] [5] [7]
Medizinische Bezeichnungen in diesem Kapitel
- Mesencephalon (Mittelhirn)
- Substantia nigra (schwarze Substanz)
- Pars compacta (kompakter Anteil)
- Nucleus caudatus (Schweifkern)
- Putamen (Schalenkern)
- Area tegmentalis ventralis (ventrales Tegmentum)
- Nucleus accumbens (Accumbenskern)
- Nucleus arcuatus (Bogenkern)
- Eminentia mediana (mittlere Erhebung an der Hypothalamusbasis)
- Adenohypophysis (Hypophysenvorderlappen)
- Vesicula (Bläschen)
- Exozytose (Abgabe durch Membranverschmelzung)
Von den Botenstoffen zu den verbundenen Schaltungen
Die Basalganglien erklären die Schleifen der Handlungsauswahl. Die synaptische Übertragung vertieft Rezeptoren und zelluläre Kommunikation. Die Gürtelrinde verbindet Bewertung mit zielgerichtetem Handeln. In Hypothalamus und Hypophyse lässt sich der neuroendokrine Transportweg weiterverfolgen.
Locus coeruleus: Noradrenalin und Aufmerksamkeit vertieft die Lage eines noradrenergen Kerngebiets, seine Projektionswege und die Wirkung an den Zielzellen.
Quellen und Weiterlesen
- Valerie Hedges / Michigan State University: Neurotransmitters – Catecholamines Introduction to Neuroscience. Synthese, vesikulärer Transport und Dopaminrezeptoren. Abgerufen am 08.11.2026.
- Liu, Goel und Kaeser (2021): Spatial and temporal scales of dopamine transmission Nature Reviews Neuroscience 22:345–358. DOI 10.1038/s41583-021-00455-7. Räumliche Organisation, Varikositäten und zeitliche Signale. Abgerufen am 08.11.2026.
- Bu, Farrer und Khoshbouei (2021): Dynamic control of the dopamine transporter in neurotransmission and homeostasis npj Parkinson’s Disease 7:22. DOI 10.1038/s41531-021-00161-2. DAT und regulierte Membranverfügbarkeit. Abgerufen am 08.11.2026.
- Nolan et al. (2020): Direct dopamine terminal regulation by local striatal microcircuitry Journal of Neurochemistry 155:475–493. Örtliche Kontrolle der Freisetzung im Striatum. DOI 10.1111/jnc.15034. Abgerufen am 08.11.2026.
- Current Review of the Function and Regulation of Tuberoinfundibular Dopamine Neurons (2024) International Journal of Molecular Sciences 25:110. Hypothalamischer Ursprung, Portalkreislauf und D2-Wirkung auf laktotrope Zellen. DOI 10.3390/ijms25010110. Abgerufen am 08.11.2026.
- Schultz (1998): Predictive reward signal of dopamine neurons Journal of Neurophysiology 80:1–27. Phasische Antworten in tierexperimentellen Lernaufgaben. DOI 10.1152/jn.1998.80.1.1. Abgerufen am 08.11.2026.
- Pessiglione et al. (2006): Dopamine-dependent prediction errors underpin reward-seeking behaviour in humans Nature 442:1042–1045. Instrumentelles Lernen, pharmakologische Manipulation und striatale fMRT-Signale. DOI 10.1038/nature05051. Abgerufen am 08.11.2026.
- Berridge und Robinson (2016): Liking, wanting, and the incentive-sensitization theory of addiction American Psychologist 71:670–679. Anreizmotivation, Genuss und Sensitivierung. DOI 10.1037/amp0000059. Abgerufen am 08.11.2026.
- Mohebi et al. (2019): Dissociable dopamine dynamics for learning and motivation Nature 570:65–70. DOI 10.1038/s41586-019-1235-y. Tierexperimenteller Vergleich von VTA-Aktivität und Dopaminfreisetzung im Nucleus accumbens. Abgerufen am 08.11.2026.
- StatPearls: Dopamine Abschnitt Mechanism of Action: Synthese, Rezeptorfamilien und Blut-Hirn-Schranke. Abgerufen am 08.11.2026.
- Westbrook et al. (2020): Dopamine promotes cognitive effort by biasing the benefits versus costs of cognitive work Science 367:1362–1366. Aufgabenwahl und Dopaminsynthesekapazität. DOI 10.1126/science.aaz5891. Abgerufen am 08.11.2026.
- FIPAT / IFAA: Terminologia Anatomica, 2. Auflage TA2, 2019. Anatomische Bezeichnungen für Mittelhirn, Striatum und Hypothalamus. Abgerufen am 08.11.2026.