Cholin erreicht die Nervenendigung
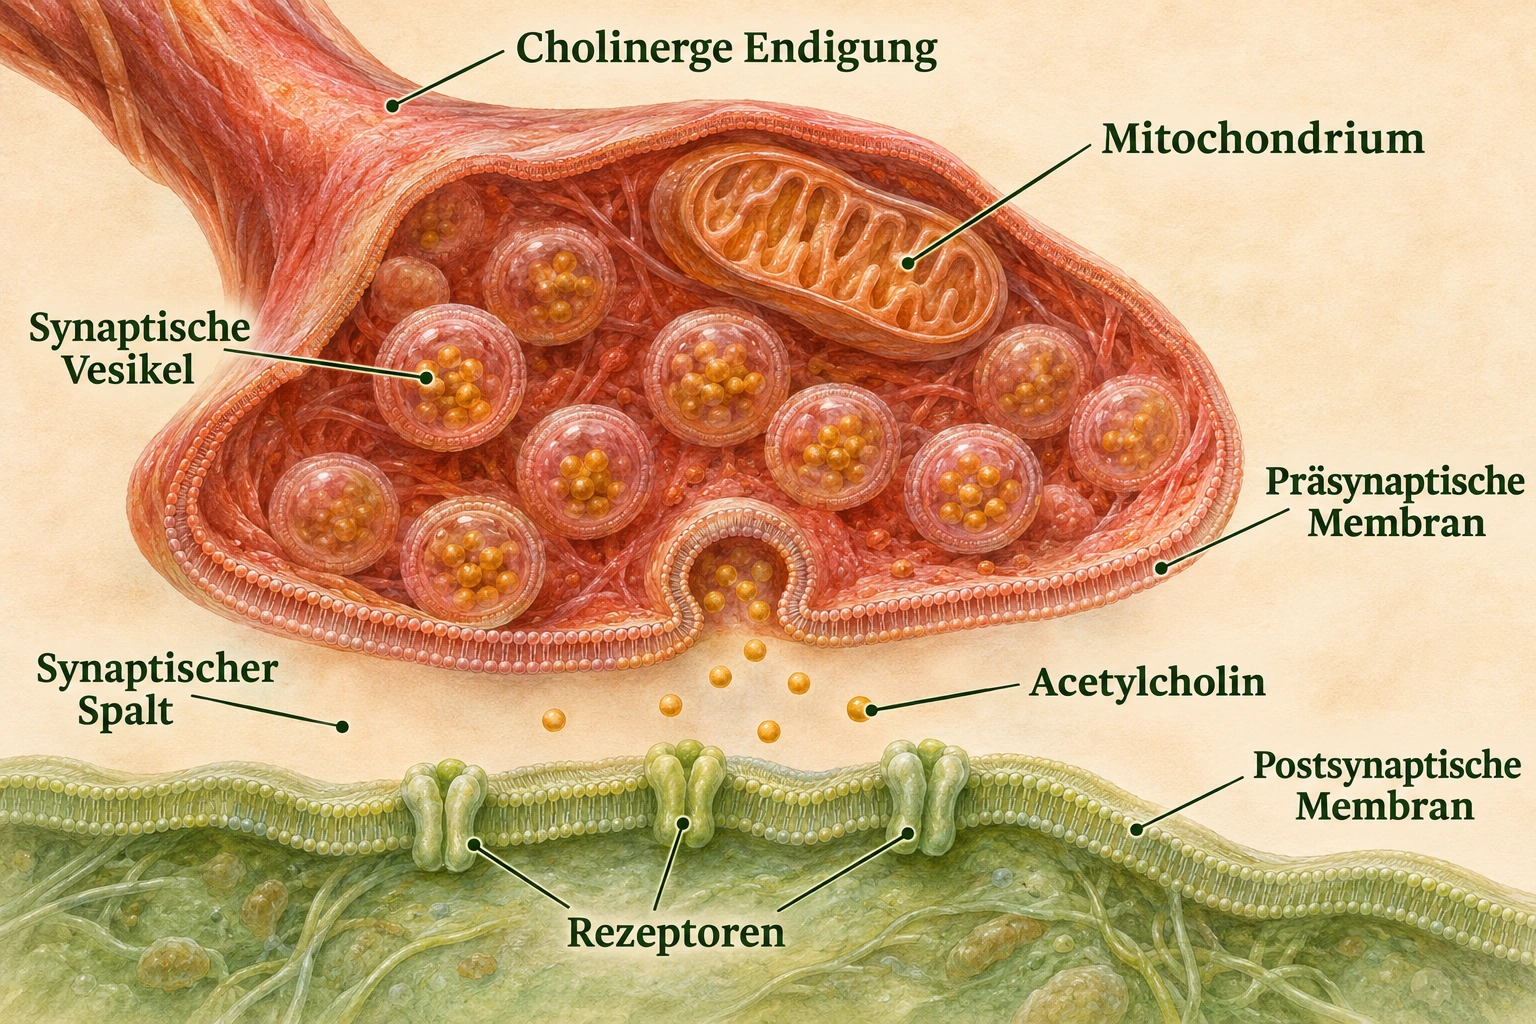
Cholin gehört zu den Ausgangsstoffen für Acetylcholin. Der hochaffine Cholintransporter CHT, codiert durch das Gen SLC5A7, befördert es aus dem Extrazellulärraum in die Nervenzelle. Dabei ist der Transport an Natrium- und Chloridionen gekoppelt. Die Aufnahme versorgt den intrazellulären Bildungsweg mit neuem Ausgangsstoff. [2]
Dieser Schritt begrenzt wesentlich, wie rasch neues Acetylcholin gebildet werden kann. Er verbindet das Angebot außerhalb der Endigung mit dem Stoffwechsel im Zytosol (löslichen Zellraum). Nach der Spaltung freigesetzten Acetylcholins kann Cholin erneut über diesen Weg aufgenommen werden. [2]
Für den Ablauf lassen sich drei Orte unterscheiden: der Extrazellulärraum mit verfügbarem Cholin, das Transportprotein in der Zellmembran und das Zytosol als Zielraum. Die Kopplung an Ionen macht den Transport zu einem Vorgang, der von den Bedingungen beider Membranseiten abhängt. Der Stoffnachschub gehört damit zur laufenden Funktion der Endigung. [2]
Cholinacetyltransferase bildet den Botenstoff
Das Enzym Cholinacetyltransferase, kurz ChAT, überträgt eine Acetylgruppe von Acetyl-CoA auf Cholin. Die Reaktion im Zytosol liefert Acetylcholin und freies Coenzym A. Ausgangsstoffe, Enzym und Reaktionsprodukt lassen sich dadurch als getrennte Bestandteile desselben Bildungswegs verfolgen. [1]
Die Bezeichnung cholinerg beschreibt Nervenzellen und ihre Signalübertragung mit Acetylcholin. In Gewebeuntersuchungen wird ChAT als Merkmal cholinerger Nervenzellen verwendet. Der Nachweis des Enzyms hilft, entsprechende Zellgruppen und ihre Fortsätze anatomisch zuzuordnen. [10]
Ein Protonengradient bereitet die Speicherung vor
Vesiculae synapticae (synaptische Bläschen) speichern den Botenstoff in einem eigenen membranbegrenzten Innenraum. Eine vakuoläre Protonenpumpe in der Vesikelmembran verbraucht ATP und transportiert Protonen in diesen Raum. Dadurch wird das Vesikelinnere angesäuert. [3]
Der Aufbau dieses Gradienten kostet Energie. Er schafft zugleich die Voraussetzungen für den nachfolgenden Transport von Acetylcholin in das Vesikel. ATP-Verbrauch und Botenstoffspeicherung sind damit über die Eigenschaften der Vesikelmembran gekoppelt. [3]
Der Vesikelinnenraum ist vom Zytosol durch eine Lipidmembran getrennt. Der gerichtete Protonentransport verändert deshalb die Bedingungen innerhalb eines kleinen eigenen Kompartiments. Für die Energiebilanz bedeutet das: Bereits die Vorbereitung eines speicherfähigen Vesikels benötigt ATP-Umsatz, bevor sein Inhalt später ausgeschüttet wird. [3]
VAChT belädt die Vesikel
Der vesikuläre Acetylcholintransporter VAChT wird durch das Gen SLC18A3 codiert. Er nutzt den Protonengradienten für den Austausch: Acetylcholin gelangt aus dem Zytosol in den Vesikelinnenraum, während Protonen in die Gegenrichtung transportiert werden. Das beschriebene Verhältnis beträgt zwei Protonen pro Acetylcholin. [4]
CHT und VAChT arbeiten somit an zwei verschiedenen Membranen. CHT bringt Cholin durch die Zellmembran. VAChT verlagert das bereits gebildete Acetylcholin durch die Vesikelmembran. Diese räumliche Abfolge verbindet Aufnahme, Synthese und Speicherung. [4]
Beim Beladen wirken Pumpe und Austauscher zusammen. Die Protonenpumpe baut den Unterschied zwischen innen und außen auf. VAChT nutzt einen Teil dieses Unterschieds, während Protonen aus dem Vesikel zurückgelangen. So kann ein Membransystem Energie aus ATP zunächst in einen Gradienten und anschließend in die Speicherung eines Botenstoffs übertragen. [4]
Calcium verbindet Ankunft und Ausschüttung
Eine elektrische Erregung kann an der Endigung spannungsabhängige Calciumkanäle öffnen. Einströmende Calciumionen koppeln die ankommende Aktivität an den Fusionsapparat bereitstehender Vesikel. Deren Membran verschmilzt mit der präsynaptischen Zellmembran; der Vesikelinhalt erreicht den Extrazellulärraum. [5]
An einer synaptischen Kontaktstelle liegt zwischen sendender und empfangender Membran der synaptische Spalt. Acetylcholin erreicht dort passende Rezeptoren. Freisetzungsort, Abstand zur Zielmembran und Rezeptorausstattung gehören zu den räumlichen Bedingungen der Übertragung. [5]
Am Fusionsvorgang wirken Membranproteine des SNARE-Komplexes und calciumempfindliche Proteine wie Synaptotagmin mit. Der Vorgang verbindet zwei Ereignisse auf verschiedenen Ebenen: einen Ionenstrom durch die Zellmembran und die Öffnung eines gespeicherten Botenstoffvorrats zum Außenraum. Die Membran des Vesikels wird dabei Teil der präsynaptischen Membran. [5]
Gesundheitskapitel
Acetylcholinesterase beendet das Signal
Acetylcholinesterase, kurz AChE, spaltet Acetylcholin mithilfe von Wasser in Cholin und Acetat. Das Enzym wirkt im Extrazellulärraum, unter anderem im synaptischen Spalt. Membranverankerte Formen besitzen ihre katalytische Seite außerhalb der Zelle. [6]
Der Abbau verändert das Angebot an aktivem Botenstoff für die Rezeptoren. Mit der Wiederaufnahme des entstehenden Cholins schließt sich ein Stoffkreislauf: Aus einem freigesetzten Molekül wird wieder ein verfügbarer Baustein für die nächste Synthese. [6]
In der beschriebenen Reaktion werden Acetylcholin und Wasser als Ausgangsstoffe umgesetzt; Cholin und Acetat verlassen sie als Produkte. Damit endet die Verfügbarkeit des jeweiligen Acetylcholinmoleküls für eine erneute Rezeptorbindung. Für den Verlauf eines Signals sind somit Freisetzung und enzymatischer Abbau miteinander verbunden. [6]
Nikotinische Rezeptoren öffnen Ionenkanäle
Nikotinische Acetylcholinrezeptoren sind ligandengesteuerte Ionenkanäle. Fünf Proteinuntereinheiten bilden den Rezeptor; jede Untereinheit besitzt vier membranüberspannende Abschnitte. Die Bindung eines passenden Liganden verändert den Kanalzustand. Durch den geöffneten Kanal können Kationen entsprechend den elektrochemischen Bedingungen strömen. [7]
Die Kombination der Untereinheiten beeinflusst die Eigenschaften des Rezeptors. An der erwachsenen motorischen Endplatte besteht der typische Rezeptor aus zwei α1-Untereinheiten sowie β1, δ und ε. Im Nervensystem kommen unter anderem α4β2- und α7-haltige Rezeptoren vor. Calciumdurchlässigkeit und pharmakologische Empfindlichkeit unterscheiden sich zwischen den Formen. [7]
Damit liegt eine direkte Verbindung zwischen chemischer Bindung und Ionenstrom vor. Zur Einordnung eines Versuchs gehört deshalb die Frage, welcher Rezeptortyp an welcher Zellmembran untersucht wurde. [7]
Ein α7-Rezeptor kann aus fünf gleichen α7-Untereinheiten zusammengesetzt sein. Andere Formen kombinieren unterschiedliche Untereinheiten. α9/α10-haltige Rezeptoren sind besonders mit Haarzellen des Hör- und Gleichgewichtsorgans verbunden. Die Rezeptorfamilie reicht dadurch von der motorischen Endplatte über zentrale Netzwerke bis zu spezialisierten Sinneszellen. [7]
Muskarinische Rezeptoren verändern Signalwege
Muskarinische Acetylcholinrezeptoren gehören zu den G-Protein-gekoppelten Rezeptoren. Die fünf Subtypen heißen M1 bis M5. Nach Bindung des Botenstoffs beeinflussen sie intrazelluläre Signalwege und darüber beispielsweise Enzyme oder Ionenkanäle. [8]
M1, M3 und M5 koppeln bevorzugt an Gq/11-Proteine. M2 und M4 koppeln bevorzugt an Gi/o-Proteine. Welche Antwort daraus entsteht, hängt von den nachgeschalteten Strukturen der jeweiligen Zelle ab. Derselbe Botenstoff kann dadurch an verschiedenen Orten unterschiedliche Vorgänge beeinflussen. [8]
Auch die räumliche Verteilung der Subtypen und ihre Wechselwirkung mit weiteren Signalen bestimmen die Netzwerkantwort. Rezeptorklasse, Zelltyp und aktuelle Aktivität bilden daher gemeinsam den funktionellen Zusammenhang. [8]
Cholinerge Zellgruppen im Gehirn
Das basale Vorderhirn enthält mehrere cholinerge Zellgruppen. Dazu gehören das Septum mediale (mediale Septumgebiet), Teile des diagonalen Bandes von Broca und der cholinerge Anteil des Nucleus basalis Meynert (Meynert-Basalkerns). Ch1 bezeichnet die Septumgruppe; Ch2 und Ch3 die vertikalen beziehungsweise horizontalen Anteile des Bandes, Ch4 den cholinergen Basalkernanteil. Der Nucleus basalis besitzt beim Menschen eine ausgedehnte, heterogene Organisation mit kompakten und dazwischenliegenden Zellen. [9]
Weitere Gruppen liegen im Truncus encephali (Hirnstamm): Die cholinergen Zellanteile des Nucleus tegmentalis pedunculopontinus (pedunculopontinen Tegmentumkerns) und des Nucleus tegmentalis laterodorsalis (laterodorsalen Tegmentumkerns) bilden Ch5 und Ch6. Ihre Projektionen erreichen besonders den Thalamus (Sehhügel). Im Striatum (Streifenkörper) befinden sich außerdem lokal verschaltete cholinerge Interneurone (Schaltneuronen). [9]
Die Zuordnung von Zielgebieten stützt sich auf unterschiedliche Methoden. Menschliches Gewebe zeigt Zellgruppen und Faserverteilungen; viele gezielte Projektionsnachweise stammen aus Tracerexperimenten an nichtmenschlichen Primaten. Besonders die Beziehungen von Septum und diagonalem Band zum Hippocampus sowie des basalen Vorderhirns zur Großhirnrinde werden in diesem anatomischen Rahmen untersucht. [9]
Cholinerge Fasern verteilen sich ungleich
Eine Untersuchung menschlichen Hirngewebes verglich ChAT-haltige Fasern in 35 unterschiedlich aufgebauten Rindenregionen. In allen untersuchten Gebieten und Schichten fanden sich entsprechende Axone. Ihre Dichte unterschied sich jedoch deutlich zwischen funktionellen Bereichen. [10]
Limbische und paralimbische Regionen zeigten eine dichtere cholinerge Versorgung als primäre sensorische Rindenfelder. Auch innerhalb einzelner Verarbeitungsfolgen bestanden Unterschiede. Solche Verteilungsmuster beschreiben, wo ein neuromodulierendes Signal anatomisch ansetzen kann. [10]
Der anatomische Befund ergänzt deshalb die Frage nach der ausgeschütteten Botenstoffmenge um den Ort ihrer möglichen Wirkung. Für eine konkrete Funktion kommen anschließend die lokalen Rezeptoren und die Aktivität der beteiligten Zellen hinzu. [10]
Ein relevantes Signal erkennen
In einem Rattenversuch kündigte ein kurzer Lichtreiz späteres Futter an. Die Tiere hatten gelernt, auf diesen Hinweis zu reagieren. Forscher erfassten im medialen präfrontalen Kortex (mittleren vorderen Stirnhirnbereich) schnelle Veränderungen des cholinergen Signals. Dazu verwendeten sie Elektroden, die Cholin aus dem Acetylcholinabbau elektrochemisch erfassten. [11]
Erkannte Hinweise gingen mit kurzen Signaländerungen einher. Die zeitlichen Muster vor einem Reiz unterschieden sich zwischen später erkannten und verpassten Hinweisen. Langsamere Veränderungen über Minuten zeigten einen weiteren Zusammenhang mit der Aufgabenbearbeitung. Eine beidseitige Verringerung cholinerger Eingänge in diesem Kortexgebiet beeinträchtigte die Hinweiserkennung. [11]
Die Studie macht zwei Zeitebenen unterscheidbar: den Verlauf während einer Aufgabenphase und die kurze Antwort auf ein einzelnes wichtiges Ereignis. Beide gehören zur Verarbeitung in einem bereits trainierten Netzwerk. [11]
Die motorische Großhirnrinde diente als weiterer Messort. Dort zeigten sich langsamere aufgabenbezogene Veränderungen, während die schnelle Antwort auf erkannte Hinweise an das untersuchte präfrontale Gebiet gebunden war. Auch die Wirkung einer örtlichen cholinergen Deafferenzierung, also einer Verminderung zuführender cholinerger Fasern, hing vom betroffenen Gebiet ab. [11]
Visuelle Verarbeitung gezielt verändern
Eine weitere Untersuchung verwendete wache, kopffixierte Mäuse. Die Tiere unterschieden vertikale und horizontale bewegte Gitter. Mithilfe lichtempfindlicher Proteine konnten Forscher cholinerge Nervenzellen gezielt aktivieren oder hemmen. Die Lichtpulse dauerten fünf Sekunden. [12]
Bei 18 Mäusen verbesserte die Aktivierung im basalen Vorderhirn die Unterscheidungsleistung. Versuche mit zwölf Mäusen zeigten auch eine Verbesserung durch die Aktivierung cholinerger Axone im primären visuellen Kortex V1 (ersten Sehrindenfeld), besonders bei geringeren Bildkontrasten. Eine Hemmung cholinerger Vorderhirnzellen verschlechterte die Leistung bei sechs Tieren. [12]
Gemessen wurde die Unterscheidbarkeit der Reize anhand von Treffern und Fehlalarmen. Die Gruppen und Eingriffe erlauben eine gezielte Zuordnung des kurzfristigen cholinergen Einflusses auf diese visuelle Aufgabe. Der Experimentator kannte die Gruppenzuordnung; die Methoden berichten zudem Ausschlusskriterien für unzureichende Ausgangsleistung. [12]
Wie gelernte Zeitbeziehungen aktualisiert werden
Ratten können lernen, dass verschiedene Lichtreize Wasser nach unterschiedlichen Verzögerungen ankündigen. Dabei bilden Nervenzellen in V1 zeitliche Aktivitätsmuster aus. Eine Studie verglich sechs Tiere mit lokal verminderten cholinergen Eingängen und sieben Kontrolltiere. Nach dem Vertauschen der Reiz-Belohnungsbeziehungen aktualisierten sich die neuronalen Zeitmuster besonders in der Kontrollgruppe; bei verminderter cholinerger Versorgung blieb die frühere Zuordnung erhalten. [13]
Ein getrennter Versuchsteil verwendete akute Sehrindenschnitte junger Mäuse. Wiederholte elektrische Reize wurden mit verzögerten Pulsen von Carbachol, einem cholinergen Rezeptoragonisten, gepaart. Nach einer Auswaschphase reichten die ausgelösten Antwortzüge ungefähr bis zu den zuvor gepaarten Zeitpunkten. Getestet wurden eine halbe, eine und eineinhalb Sekunden. [13]
Die Befunde zeigen cholinerge Beteiligung an einer bestimmten Form neuronaler Plastizität: der Anpassung einer zeitlichen Erwartung. Gewebeschnitt und lernendes Tier erschließen dabei verschiedene Ebenen des Vorgangs. [13]
In einem zusätzlichen Zwei-Eingang-Versuch wurde nur einer von zwei elektrischen Reizwegen mit Carbachol gepaart. Die nachfolgende Antwortverlängerung war an den konditionierten Eingang gebunden. Diese Eingangsabhängigkeit macht deutlich, wie eine neuromodulatorische Wirkung mit der zuvor aktiven Verbindung zusammenwirken kann. [13]
Der Anschluss an Muskeln und Organe
Im peripheren Nervensystem wirkt Acetylcholin an mehreren aufeinanderfolgenden Stationen. Präganglionäre Nervenzellen sowohl des Sympathikus als auch des Parasympathikus setzen Acetylcholin frei. Ihre Zielzellen in autonomen Ganglien (Nervenzellknoten) besitzen nikotinische Rezeptoren. [14]
Postganglionäre parasympathische Fasern verwenden ebenfalls Acetylcholin; an den Zielorganen wirken muskarinische Rezeptoren. Auch die sympathische Versorgung der Schweißdrüsen nutzt cholinerge Übertragung. Diese Beispiele verbinden den Botenstoff mit der Regulation innerer Organe und der Wärmeabgabe. [14]
Die beteiligten Strukturen vertiefen
Die Grundlagen der synaptischen Übertragung führen von der elektrischen Erregung zur Zellantwort. Der Locus coeruleus ergänzt das Bild um noradrenerge Signalwege. Unter Dopamin und autonomes Nervensystem lassen sich weitere Verbindungen verfolgen.
Quellen und Weiterlesen
- Reactome: Cho is acetylated to AcCho by CHAT Homo sapiens, Synthesereaktion im Zytosol. Abgerufen am 10.11.2026.
- Reactome: SLC5A7 cotransports Cho, Cl-, Na+ from extracellular region to cytosol Homo sapiens, Natrium-/Chlorid-abhängiger hochaffiner Cholintransport. Abgerufen am 10.11.2026.
- Reactome: Re-acidification of acetylcholine transport vesicles Homo sapiens, Protonenpumpe der Vesikelmembran. Abgerufen am 10.11.2026.
- Reactome: Loading of acetylcholine in synaptic vesicles Homo sapiens, vesikulärer Acetylcholintransport. Abgerufen am 10.11.2026.
- Reactome: Release of acetylcholine at the synapse Homo sapiens, calciumabhängige Freisetzung und Vesikelfusion. Abgerufen am 10.11.2026.
- Reactome: AcCho is hydrolyzed to Cho and acetate by ACHE Homo sapiens, extrazelluläre Acetylcholinspaltung. Abgerufen am 10.11.2026.
- Alexander et al. (2025): The Concise Guide to PHARMACOLOGY 2025/26: Ion channels British Journal of Pharmacology 182:S152–S241. Nikotinische Acetylcholinrezeptoren, S175–S178. Abgerufen am 10.11.2026.
- Alexander et al. (2025): The Concise Guide to PHARMACOLOGY 2025/26: G protein-coupled receptors Abschnitt Acetylcholine receptors (muscarinic), M1–M5. Abgerufen am 10.11.2026.
- Geula et al. (2025): Organization of the basal forebrain cholinergic system in the human brain Handbook of Clinical Neurology 211:11–21. Menschliche Histologie und Projektionssysteme. Abgerufen am 10.11.2026.
- Mesulam et al. (1992): Differential cholinergic innervation within functional subdivisions of the human cerebral cortex: A choline acetyltransferase study Journal of Comparative Neurology 318:316–328. DOI 10.1002/cne.903180308. Abgerufen am 10.11.2026.
- Parikh et al. (2007): Prefrontal acetylcholine release controls cue detection on multiple time scales Neuron 56:141–154. Rattenversuch zur Hinweiserkennung. Abgerufen am 10.11.2026.
- Pinto et al. (2013): Fast modulation of visual perception by basal forebrain cholinergic neurons Nature Neuroscience 16:1857–1863. Optogenetische Eingriffe bei Mäusen. Abgerufen am 10.11.2026.
- Chubykin et al. (2013): A cholinergic mechanism for reward timing within primary visual cortex Neuron 77:723–735. Rattenaufgabe und akute Mausschnittversuche. Abgerufen am 10.11.2026.
- Betts et al.: Divisions of the Autonomic Nervous System Anatomy and Physiology 2e, Kapitel 15.1, Abschnitt Chemical Signaling in the Autonomic Nervous System. Abgerufen am 10.11.2026.